Mostrando entradas con la etiqueta Evolucion convergente. Mostrar todas las entradas

lunes, 30 de mayo de 2016

EVOLUCIÓN CONVERGENTE - Una genial coincidencia

La vida en todas sus formas es la mayor y más fascinante muestra del poder creativo de la naturaleza. Basta contemplar eso que nos rodea y que está vivo para darnos cuenta de la diversidad en que se presenta este misterioso fenómeno: multitud de especies, cada una con sus características.

Aunque también hemos de admitir que la vida a menudo parece emplear las mismas “formas”. ¿Quién no se ha quedado admirado al contemplar la similitud de rasgos entre especies alejadas filogenéticamente, o incluso pertenecientes a reinos diferentes? Por ejemplo, si en lo que animales extintos se refiere, la siempre formidable defensa del dinosaurio Ankylosaurus magniventris con su cola terminada en mazo y la terrible coincidencia con el armadillo gigante del Pleistoceno Doedicurus clavicaudatus que también poseía una defensa similar. Este fenómeno en el que la naturaleza parece “reciclar ideas” de una especie a otra recibe el nombre de evolución convergente.


Figura 1: A la izquierda Ankylosaurus magniventris dinosaurio del Cretácico Superior (Ilustración de Todd Marshall)  y la derecha Doedicurus clavicaudatus, armadillo gigante perteneciente a la megafauna del Pleistoceno (Ilustración de Aaron Marsh).

 ¿Pero qué  #$@! es la evolución convergente?

Evolución convergente es como se denomina al proceso evolutivo a partir del cual dos organismos filogenéticamente separados han originado estructuras similares. Esta evolución ha ocurrido en cada rama filogenética de manera independiente, siendo el fenómeno en términos cotidianos una “curiosa coincidencia” dada por mutaciones genéticas y la selección natural. Casi todos los ejemplos de convergencia se pueden interpretar en términos de adaptación a condiciones similares, sea el medio ambiente de los organismos o su forma de vida como puede ser la adaptación a la alimentación.

En mi segundo entrada pudimos ver una convergencia para la adaptación en la alimentación entre la nutria-oso Kolponomos y los felinos dientes de sable a la hora de morder. (VEASE La nutria oso que mordía como un dientes de sable). [Tedford RH, Barnes LG, Ray CE (1994)]. Pese a tener una dieta distinta desarrollaron mecanismos similares. 

Otro ejemplo de convergencia en la alimentación que todo fan de los dinosaurios conoce es el que existe entre los dientes de Carcharodontosaurus saharicus y el Gran Tiburón Blanco. Dos expertos cazadores que pese a ser de ecosistemas muy distintos, probablemente poseerían un método de caza muy similar, asestando un mordisco a la presa con sus dientes aserrados lo suficientemente letal como para que se desangre y muera. [Sereno P.C.,Dutheil D.B, Iarochene.M, Larsson H. C. E, Lyon G. H, Magwene P. M, Sidor C. A, Varricchio D. J, and Wilson J. A. (1996)]. Como veis cuando la evolución perfecciona un método la conserva incluso cuando el autor ha desaparecido. 
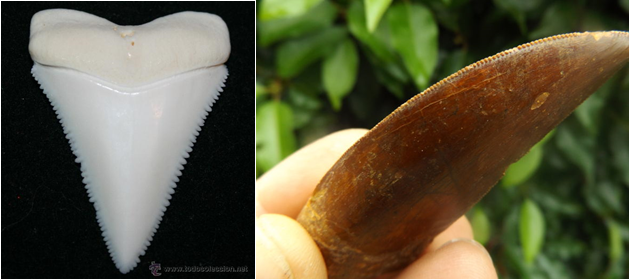

Figura 3: Diente de Carcharodon carcharias (izquierda) y diente de Carcharodontosaurus saharicus (derecha). Los nombres no son casualidad Carcharodontosurus significa “Reptil diente de tiburón” en honor a esta convergencia. Ambos dientes están muy comprimidos, bastante serrados y son ciertamente menos asimétricos que los de otros terópodos.

Otro tipo de evolución convergente tratado en mis entradas es la que puede surgir a la hora de relacionarse con individuos. Ya sea de una misma especies; como vimos en mi primer artículo con el bóvido Rusingoryx atopocranion y los Hadrosauridae con cresta, que poseían una cámara de resonancia para emitir sonidos similares (VEASE Una cabra y un dinosaurio en la misma canción)[Evans D.C (2010)(2006)(2011), Faith J.T, (2011) Frey R, Volodin I, Volodina E (2007)] O también con otras especies como pasaba entre las extintas crisopas Kalligrammatidae y mariposas modernas y su estrecha relación con las plantas. (VEASE Vuela vuela linda mariposa) [Doludenko MP, Orlovskaya ER. (1976), Harris TM (1973), Peñalver E (2012), CC Labandeira. (2014)& (2010)]

La evolución convergente va más allá de los animales más complejos y podemos encontrar casos incluso a nivel molecular; Por ejemplo se ha documentado que existen secuencias de genes y proteínas similares en diferentes especies, que sin ser el producto de una transferencia genética horizontal, son similares. Eso amigos, es evolución convergente.

Caracteres Homólogos y Análogos

Cuando dos especies comparten un carácter, como las alas en murciélagos y pterosaurios (Figura 4), puede ser por una de dos razones: o el carácter estaba presente en el antepasado común de las dos especies y éstas lo comparten simplemente porque lo han heredado (caracteres homólogos); o el carácter no se encontraba en el antepasado común, sino que se ha adquirido por evolución convergente (en este caso se habla de caracteres análogos).

Es importante saber distinguir entre caracteres homólogos y análogos al reconstruir la filogenia o la diversificación evolutiva. Se supone que dos especies tienen un parentesco próximo si se parecen mucho; pero esta hipótesis sólo es válida si el parecido responde a homología, no a analogía o convergencia. 


Figura 4: A la derecha reconstrucción de Ornithostoma ingens por S.W. Williston, a la derecha reconstrucción de Pteropus vampyrus (Zorro volador)  por William Dwight.


A veces es posible detectar la convergencia examinando los caracteres con detalle. Las alas de pterosaurios y murciélagos son superficialmente parecidas, incluso sus estructuras internas son muy similares, ambas son estructuras óseas lo que les da un parentesco lejano (Ambos son vertebrados amniotas) pero si profundizamos, las alas están sujetas por huesos diferentes en pterosaurios y murciélagos; los huesos de las alas en pterosaurios corresponden a los del cuarto dedo mientras que en el caso del murciélago, corresponden a los dedos dos a cinco. Por esto último ambas estructuras son caracteres análogos y es un ejemplo de evolución convergente. Además estas evidencias nos pueden dibujar una filogenia o una diversificación evolutiva.

Como habréis podido observar todos estos estudios solo se encaminan a comprender la historia evolutiva de las especies de nuestro planeta ¿Qué mecanismos llevan a dos organismos sin ninguna relación aparente a pensar en la misma idea para el mismo problema? Esto es a lo que hemos llamado evolución convergente. Hay que tener en cuenta que este tipo de evolución solo hace más complejo determinar las relaciones filogenéticas entre especies. Es común confundir casos de evolución convergente con evolución paralela, ya que un carácter que a priori es análogo de especies no emparentadas,  puede ser en realidad un carácter de dos especies que simplemente han evolucionado de forma paralela. Raramente se puede diferenciar la evolución paralela de la convergente en casos reales, porque la diferencia se refiere a estados ancestrales de los caracteres, que por lo general son desconocidos.


La evolución es CAOS

Este es el final del camino que emprendimos

Como broche final solo os diré que la evolución es bella. Como dijo el Dr. Ian Malcom en Jurassic Park “La vida se abre camino” y ¡de qué manera! , su complejidad y a la par sencillez no hace otra cosa que aumentar el ansia de los científicos por entender cómo funciona. Me ha encantado hacer estos artículos aunque he de reconocer que ha sido frustrante a la hora de buscar uno acorde a mis objetivos. A la hora de elegir el tema de mis entradas sin duda quería un tema no muy específico, que me permitiera tocar varios tipos de organismos. Quería hablar tanto de dinosaurios como de pequeños invertebrados. Aquí finaliza de momento mi paso por este blog de Paleontología y Evolución. 

Saludos y ha sido un placer informarles sobre el apasionante mundo de la paleontología.

Para saber más…

Obviamente mientras deambulaba buscando artículos encontré artículos de años anteriores de ejemplos muy curiosos de evolución convergente y claro como tenían que ser ejemplos actuales me quede con las ganas. Aun así aprovecho este rincón final para compartir esos artículos tan interesantes:

- Convergent Evolution in AquaticTetrapods: Insights from an Exceptional Fossil Mosasaur ; Un Nuevo mosasaurio con una morfología hidrodinámica semejante a la vista en peces y delfines.
- Convergent evolution of genomicimprinting in plants and mammals ; Evolución convergente a nivel de genoma entre plantas y mamíferos
- The Mentality of Crows: Convergent Evolution of Intelligence in Corvids and Apes; Cuervos y simios con la mismas herramientas cognitivas
- A bizarre Jurassic maniraptoran theropod with preserved evidence of membranous wings; Un dinosaurio desarrolla alas con membranas semejantes a los murciélagos.

REFERENCIAS
  • BlogEvolución convergente y divergente
  • Blog Palaeos La historia de la vida en la Tierra ( http://palaeos-blog.blogspot.com.es/2011/06/evolucion-convergente-de-vertebrados.html )
  • Doludenko MP, Orlovskaya ER. (1976) Jurassic floras ofthe Cordillera Karatau, southern Kazakhstan. Paleontology 19, 627-640 .openurl GeoRef
  • Evans D.C (2010), Cranial anatomy and systematics of Hypacrosaurus altispinus, and a comparative analysis of skull growth in lambeosaurine hadrosaurids (Dinosauria: Ornithischia) Zool. J. Linn. Soc, 159, pp. 398–434
  • Evans D.C, (2006) Nasal cavity homologies and cranial crest function in lambeosaurine dinosaurs Paleobiology, 32 , pp. 109–125
  • Sereno P.C.,Dutheil D.B, Iarochene.M, Larsson H. C. E, Lyon G. H, Magwene P. M, Sidor C. A, Varricchio D. J, and Wilson J. A. (1996). "Predatory dinosaurs from the Sahara and the Late Cretaceous faunal differentiation." Science, 272: 986–991.
  • Tedford RH, Barnes LG, Ray CE. (1994) The early Miocene littoral ursoid carnivoran Kolponomos: systematics and mode of life. In Contributions in marine mammal paleontology honoring  FrankC. Whitmore Jr. (eds A Berta, TA Demere), pp. 11 –32. San Diego, CA: Proceedings of the San Diego Society of Natural History.

domingo, 8 de mayo de 2016

Vuela vuela linda mariposa

Si pensamos en los insectos más bonitos que hayamos visto sin duda pensamos en las mariposas, su elegancia y espectáculo con cada aleteo seguro que ha encandilado a más de uno. Pues de estas bellezas es de lo que hablaremos en este artículo. Como es de esperar, si habéis seguido mis entradas en este blog de paleontología y evolución, me centraré en un nuevo ejemplo de evolución convergente entre nuestras lindas mariposas y las extintas crisopas del Mesozoico. 


Las extintas crisopas de las que os hablo pertenecen a la familia Kalligrammatidae del orden Neuroptera,  de mediados del Mesozoico. Entraron en el registro fósil hace 165 millones de años (Ma) y desaparecieron 45 Ma más tarde, en cambio nuestras mariposas modernas pertenecen al orden Lepidoptera y se originaron probablemente hace 80-70 Ma, mucho después de que Kalligrammatidae se extinguiera. Nuevos fósiles bien conservados de Kalligrammatidae, en el noreste de China, han desentrañado una sorprendente variedad de características morfológicas y ecológicas similares a la familia Papilionoidea actual. Aquí huele a evolución convergente que tira “pa tras”.

Trazando la evolución del linaje de Kalligrammatidae descubrimos que estas crisopas extintas han evolucionado de forma convergente a las mariposas modernas en un estilo de alimentación similar. Esto es importante, teniendo en cuenta que este linaje vivió en un periodo de tiempo en el que las plantas con flores todavía no habían aparecido. 

Nuestro artículo origen fue publicado el 3 de febrero del año 2016 en la revista Royal Society B (Volumen 283) The evolutionary convergence of mid-Mesozoic lacewings and Cenozoic butterflies realizado por Conrad C. Labandeira, Qiang Yang, Jorge A. Santiago-Blay, Carol L. Hotton, Antónia Monteiro, Yong-Jie Wang, Yulia Goreva, ChungKun Shih, Sandra Siljeström, Tim R. Rose, David L. Dilcher, Dong Ren.

¿Qué va antes la flor o la mariposa?

A pesar de que las mariposas son quizás el grupo más icónico de los insectos polinizadores, sus primeros fósiles como tal, se producen en el límite Paleoceno-Eoceno, hace 56 Ma. Los estudios moleculares de varios rangos familiares  sugieren un origen Cretácico tardío entorno a los 80-70 Ma, considerablemente después de la radiación de las angiospermas (Plantas con flores) en el Cretácico medio hace 125-100 Ma. [Boggs CL, Watt WB, Ehrlich PR. (2003), Braby MF, Vila R, Pierce NE. (2006), H Wahlberg (2009)].

Las mariposas modernas se caracterizan por un conjunto distintivo de rasgos, como el comportamiento diurno, piezas bucales tubulares o patrones de  manchas y placas en las alas [Boggs CL, Watt WB, Ehrlich PR. (2003),Monteiro (2008), Borrell J, Krenn HW. (2006)]. Estas características se presentaron en el origen del clado, durante el Cretácico superior y Paleógeno hace 80-23 Ma, conduciendo a la diversificación de los dos grupos de mariposas modernas; Lepidoptera y Papilionoidea  [Wheat CW (2007)]. Entonces… ¿Este estereotipo presente en las mariposas, esta únicamente asociado a las angiospermas O estos caracteres provienen de antiguos linajes de insectos no relacionados con las angiospermas? Intentaremos responder a esta preguntas en esta entrada.

A continuación se presenta Kalligrammatidae o crisopas kalligrammatid, un clado de insectos extintos originarios casi en su totalidad de Eurasia. Estos insectos tenían grandes envergaduras, de hasta 160 mm, y se encuentran entre los más grandes de mediados del Mesozoico. Kalligrammatidae se incluye dentro de Myrmeleontiformia un suborden importante que abarca las actuales hormigas león, owlflies y crisopas de alas sedosas, entre otros insectos.[Yang Q, Zhao YY, Ren D. (2009), Bechly G, Makarkin VN. (2016), Fang SW (2010)]


Figura 1. Crisopa de alas verdes actual.

Todo el material examinado de Kalligrammatidae se originó a partir de depósitos lacustres de grano fino, a menudo carbonosos en Asia Central y el este asiático [Wang WL (1989) ,Wang XL (2005)]. El depósito más antiguo es Daohugou, de la Formación Jiulongshan, Mongolia Interior corresponde al último Calloviense del Jurásico medio. Mientras que el depósito más joven, la formación Yixian de la provincia de Liaoning en el noreste de China, consiste en varios sitios separados en tiempo y espacio. Estos sitios abarcan fechas que van desde 128,2 Ma hasta 121,6 Ma [Zhou ZH, Barrett PM, Hilton J. (2003), CC Swisher III. Et al. (2002)]. La última crisopa kalligrammatidae conocida se encontró en la Formación Crato - superior del noreste de Brasil hace 120 Ma.


Figura 2. Diversidad estructural de Kalligrammatidae. Las muestras son del Jurásico medio-tardío y Cretácico temprano de  Jiulongshan y Yixian en China. ( A ) Kalligramma circularia; ( B ) Affinigramma myrioneura; ( C ) A. myrioneura; ( D ) Kallihemerobius feroculus; ( E ) Oregramma aureolusa; ( F ) Ithigramma multinervia; ( G ) Abrigramma calophleba; ( H ) Kalligramma brachyrhyncha; y ( i ) Oregramma illecebrosa. (I - k) Vistas laterales de la estructura de las alas en diferentes especies.

DISCUSIÓN –  Evolución convergente entre insectos alados

A partir de un análisis filogenético agrupamos los géneros en cinco subtipos distintos, tres de los cuales son subfamilias (Figura 3). El clado basal Sophogrammatinae y cuatro clados derivados que incluyen Kalligrammatinae, con cuatro géneros relacionados, Kallihemerobiinae con seis géneros, la familia Meioneurinae que comprende un único género (Meioneurites) [Grimaldi DA, Angel MS. (2005)] y por último Oregrammatinae que consiste en tres géneros, incluyendo probablemente el género más derivado (Oregramma) .


Figura 3.Contexto filogenético de las manchas de las alas y manchas oculares a mediados del Mesozoico en Kalligrammatidae (b-f), con comparaciones a lepidópteros modernos (g-k).

Para el estudio de la estructura y la morfología de las crisopas extintas Kalligrammatidae se han seguido procedimientos experimentales específicos en seis sub-estudios diferentes que corresponden a seis características que comparten con mariposas modernas. Estos estudios son:

A) Análisis de pigmentación de las manchas oculares de las alas.

La evolución de las manchas oculares probablemente se originó a principios del clado Kalligrammatidae, en un el linaje hermano con Sophogrammatinae ya que éste no las desarrolló (Figura 3). Los cuatro clados Kalligrammatidae derivados de este linaje exhiben una variedad de patrones y ausencias puntuales en las manchas situadas en las alas. El tipo más complejo de mancha ocular se produce tarde en tres linajes separados;  Oregrammatinae, Kallihemerobiinae y Kalligrammatinae (Figura 3), lo que sugiere que estas manchas oculares derivan de otras más simples, una transición que probablemente pasó varias veces. Estos patrones son similares a los cambios propuestos actualmente en mariposas modernas Nymphalidae, es decir, estos patrones han seguido una evolución convergente con Kalligrammatidae  [Oliver JC, Beaulieu JM, Skin WH, Monteiro A (2014), Kodandaramaiah U. (2009)].

B) Análisis geoquímico de melanina en las manchas oculares.

Otro punto de convergencia es la posible presencia de melanina en el centro de la mancha ocular del ala, como se indica por nuestros análisis geoquímicos de carbono (Figura 4). Estos análisis revelaron también un aumento significativo en el contenido de carbono en la zona más oscura de la mancha ocular. Las abundancias relativas de carbono y la posible presencia de melanina en Kalligrammatidae podrían coincidir con la distribución de los pigmentos en Nymphalidae modernos [Oliver JC, Beaulieu JM, Skin WH, Monteiro.A (2014)].


Figura 4.Microestructura de los tres tipos de alas anteriores en kalligrammatidae donde se puede ver la mancha ocular y sus escamas cuticulares en el ala.

C) Estudio de las placas en las alas.

Las placas de las alas son otra característica convergente que ocurre entre Kalligrammatidae y Lepidoptera actual, aunque hay diferencias de detalle. El clado basal Sophogrammatinae carecía de estas placas en las alas. La distribución del tipo de las placas  indica que éstas se originaron en los cuatro linajes derivados de Kalligrammatidae (Figura 3). En comparación, con los lepidópteros existentes, las placas surgen principalmente de la superficie de membranas y venas de menor importancia, pero a menudo están ausentes en las venas principales.

D) Estudio de la estructura bucal.

Las Piezas bucales de Kalligrammatidae y Papilionoidae moderna, ofrecen otro notable ejemplo de evolución convergente. Las piezas bucales en Kalligrammatidae han evolucionado a partir de un estado de masticación hasta un método más derivado que consiste en el uso de un largo probóscide. Esta especie de trompa, en Kalligrammatidae, está presente en todos los clados excepto en Sophogrammatinae basal.
Muchos insectos extintos y modernos tienen una larga trompa [Borrell J, Krenn HW (2006), Labandeira CC. (2010), Ren D (2009) & (1989], pero los probóscides de Kalligrammatidaes más derivados tienen un parecido especial a los de los lepidópteros modernos [Krenn HW, NP Kristensen. (2000)].

E) Análisis sobre el polen como principal fuente de alimentación.

Es probable que existiera una asociación entre las extintas crisopas y las gimnospermas de aquella época, muy similar a la coexistencia actual entre mariposas y angiospermas. Diversas evidencias apoyan esta asociación, incluyendo granos de polen de gimnospermas encontrados en la proximidad de los insectos y un aparato bucal diseñado para el sondeo y alimentación de dicho fluido. Además de la simultánea evolución de las plantas gimnospermas. Esta especialización de características estructurales terminó con la extinción de Kalligrammatidae y las plantas de las que se aprovechaban. Además coincidió con la expansión ecológica de las primeras angiospermas durante el Cretácico medio hace 125-90 Ma [Friis EM, Crane PR, Pedersen KR. (2011)]. 


CONCLUSIÓN FINAL – Pasamos de un capullo con dudas a una mariposa con respuestas.

Sin duda alguna podemos decir que existe una notable evolución convergente entre el clado Kalligrammatidae y Papilionoidea actual. Esta convergencia entre ambos linajes, se basa en la posible presencia de melanina, manchas oculares simples o complejas, placas en las alas, piezas bucales con un largo probóscide, alimentación de estilo similar y una asociación compleja con las plantas de su entorno. Estas importantes convergencias aparecieron varias veces en el tiempo y en el espacio, presumiblemente bajo presiones selectivas similares.
Aunque la comprensión de la ecología en clados de insectos de mediados del Mesozoico es escasa [Grimaldi DA, Angel MS. (2005)], nuestro nuevo estudio en Kalligrammatidae ahora establece 20 géneros y 51 especies válidas de insectos asociados a plantas. Kalligrammatidae son el clado principal más diverso y comprende la tercera parte de los insectos recientemente reconocidos en Eurasia.

Atendiendo a nuestra pregunta formulada al principio de este artículo de si las características presentes en mariposas modernas están únicamente asociadas a las angiospermas (plantas con flor), o provienen de antiguos linajes de insectos, a partir de esta nueva evolución convergente con Kalligrammatidae, claramente existe una renovación de las mismas características, por parte de mariposas modernas, a la hora de relacionarse con las plantas. El origen de estos insectos de “larga trompa” [CC Labandeira. (2010)] se llevó a cabo en un mundo dominado por diversas gimnospermas jurásicas. Los datos fósiles sugieren que la desaparición, durante el Cretácico medio, de muchas gimnospermas preexistentes llevó a la extinción de sus asociados insectos, incluyendo Kalligrammatidae. Curiosamente, este clado fue reemplazado por las mariposas de forma convergente, 60 Ma más tarde. [Doludenko MP, Orlovskaya ER. (1976), Harris TM (1973), Peñalver E (2012), CC Labandeira. (2014)& (2010)]

REFLEXIÓN PROPIA

¿Porqué he elegido este artículo? Llegamos a nuestra última entrada sobre ejemplos de evolución convergente, antes de mi artículo final de  recopilación.

Este artículo elegido quería que fuera especial y como no, que fuese un ejemplo claro y muy marcado de convergencia. Estaba yo frustrado buscando uno a mi medida cuando de pronto me topé con estas crisopas extintas, y lo vi claro, un ejemplo de evolución convergente en invertebrados sería ideal para ponerle el broche final a mis estudios sobre evolución convergente.


He de confesar que mientras hacia el articulo no podía dejar de pensar en el gusano de la película BICHOS de Pixar que deseaba algún día convertirse en UNA LINDA MARRRIPOSA

Hasta aquí mi tercera entrada en el blog. Un saludo! y hasta la próxima...

REFERENCIAS

martes, 29 de marzo de 2016

La nutria oso que mordía como un dientes de sable

Una nueva convergencia evolutiva 

La transición de la vida de un ambiente marino a uno terrestre se produjo al menos dos veces en el clado Carnívora, concretamente en pinnípedos. Entre carnívoros marinos actuales, la morsa (Odobenus rosmarus) y la nutria de mar (Enhydra lutris) están particularmente bien adaptadas a alimentarse de invertebrados marinos de concha dura, en entornos cercanos a la costa. Sin embargo, estos dos comedores de moluscos utilizan diferentes estrategias de alimentación: Por ejemplo las morsas utilizan la alimentación por succión para extraer las partes blandas, mientras que las nutrias marinas rompen las partes duras utilizando sus manos y/o herramientas de roca. Actualmente no se han descrito más mecanismos de alimentación para los mamíferos que consumen este tipo de alimentos, y en el registro fósil, pocas especies se han mantenido tan enigmáticas en su ecología y comportamiento de alimentación como los mamíferos moluscívoros [Nowak RM. (1999), Ewer RF (1973), Berta A, Sumich JL, Kovacs KM ( 2015)].

Uno de estos enigmas de la paleontologia es el género; Kolponomos, representado por dos especies; K. clallamensis y K. newportensis. Estos mamíferos extintos se han reconstruido como animales similares a la nutria actual. Su combinación única de esqueleto y rasgos dentales, indican que las especies Kolponomos probablemente no posean análogos cercanos vivos para su estrategia de alimentación [Tedford RH, Barnes LG, Ray CE. (1994)] ¿Estamos ante un nuevo ejemplo de evolución convergente?

Nuestro artículo origen fue publicado el 2 Marzo de 2016 en la revista royal society (Volumen 283) A unique feeding strategy of the extinct marine mammal Kolponomos: convergenceon sabretooths and sea otters  Z. Jack Tseng, Camille Grohé, John J. Flynn.

Crisis de identidad en Kolponomos.

Todas las muestras de Kolponomos fueron encontradas en depósitos marinos del Mioceno temprano (Entre 23 y 16 m.a) a lo largo de la costa del Pacífico de Oregon, Washington y posiblemente Alaska. Junto a los restos fósiles de Kolponomos de ha encontrado una diversa fauna de moluscos, que incluyen géneros de almejas y mejillones, también encontrados hoy dentro de los rangos geográficos de la nutria de mar. Por tanto podemos aventurarnos a decir, que tanto Kolponomos como las nutrias de mar actuales, poseen una dieta similar basada en moluscos bivalvos. Pese a esto, se sabe muy poco de las relaciones filogenéticas de Kolponomos, además del estilo de vida y su posible estrategia de alimentación [Tedford RH, Barnes LG, Ray CE. (1994), Jacobs LL, Fiorillo AR, Nishida Y. (2009)].


Figura 1: Kolponomos clallamensis ¿con apariencia de  Oso, de  nutria o de ambos? (Paleoilustration by Roman Uchytell)

La dentición en las especies de Kolponomos superficialmente se parece a la de las nutrias marinas. De hecho, todas las muestras dentales, referidas a K. newportensis, exhiben un desgaste excesivo. Además ningún esmalte permanece en la superficie oclusal, ya que esta se compone de grandes espacios rodeados por paredes de esmalte, como en las nutrias de mar actuales. Los dientes en K. clallamensis no están tan sumamente desgastados, pero poseen cúspides redondeadas simples en los dientes molares, recordando a las nutrias de mar. [Tedford RH, Barnes LG, Ray CE (1994)]

En este artículo, nuestro objetivo será analizar la posible estrategia de alimentación de Kolponomos a partir de la anatomía y biomecánica de las mandíbulas del cráneo. En concreto, se prueba un nuevo mecanismo basado en el utilizado por felinos dientes de sable, teniendo así un nuevo ejemplo de evolución convergente entre Kolponomos y Machairodontinae.

Una nueva forma de morder

La secuencia de alimentación propuesta para Kolponomos se puede dividir en dos; Primero la captura o movilización de la presa por un método de “palanca” y segundo la trituración o masticación. Varios aspectos de la anatomía del cráneo de Kolponomos exhiben una semejanza con adaptaciones implicadas en el modelo llamado 'canino cizalla-mordida' de los depredadores dientes de sable. [Akersten WA (1985), Turner A, Anto´n M, Salesa MJ, Morales J. (2011), Anto´n M (2014)]

El método de “palanca” consiste en utilizar la parte anterior de la mandíbula como si fuera un ancla, hincando  la parte del  'mentón' en el fondo y haciendo un movimiento de arrastre que desaloje los moluscos firmemente adheridos al sustrato marino. Esto es ayudado por una potente musculatura del cuello. Tras el éxito en la captura de la presa y su transporte hacia el interior de la boca, posiblemente ayudándose de la lengua, Kolponomos utilizaría sus molares para aplastar la cascara dura. Una conducta de alimentación similar a las nutrias de mar modernas. [Ewer RF (1973), Estes JA (1980), Hall KR, Schaller GB (1964), Calkins DG (1978)]


Figura 2: Restauración del cráneo de Kolponomos newportensis por el artista Roman Yevseyev.

A continuación, con las predicciones sobre la biomecánica mandibular esperada y la forma en que Kolponomos podría haber triturado las partes duras de los moluscos antes de comerlos realizamos simulaciones de elementos finitos (FE) biomecánicos y análisis de morfometría geométrica mandibular.(Figura 3)

¿Realmente eran capaces de morder y masticar así ?

Simulaciones de biomecánica mandibular y de elementos finitos FE: Para corroboras nuestra secuencia de alimentación para Kolponomos procedemos a realizar simulaciones del uso de los dientes inferiores y la mandíbula anterior. Los resultados se muestran en mapas de color que nos indican la distribución de tensión VM (von Mises) en la mandíbula.


Figura 3: Mapas de color de tension VM de las simulaciones de biomecánica mandibular, realizadas en Panthera pardus (leopardo actual), Smilodon fatalis, Kolponomos newportensis, Ursus arctos (oso pardo), Enhydra lutris (nutria marina), Lontra canadensis (nutria de rio), Canis lupus (lobo actual).

En vista lateral (Figura 3a), a la hora de usar la mandíbula como un ancla, tanto en Kolponomos como en Smilodon se observa que los valores de presión VM no son altos y que la mandíbula aguantaría el arrastre por el sustrato. A diferencia de las dos nutrias (Lontra y Enhydra) que poseen valores altos de tensión VM en la zona anterior de la mandíbula.

En una vista posterior del cráneo (Figura 3b) en Kolponomos, se interpreta, que la aplicación de fuerza para aplastar presas de cáscara dura con ayuda del sustrato, seria facilitada por la musculatura del músculo oblicuo; capitis superior. Las regiones de unión asociados con la mordedura son similares en Smilodon y Kolponomos.

Por último, en vista lateral, (Figura 3c) se mide la fuerza de mordedura de aplastamiento con el primer molar y como era de esperar, Kolponomos posee valores de presión VM bajos además de diferencias visuales en comparación con las nutrias actuales, con una distribución mayor  de la tensión VM.

DISCUSIÓN - Recopilemos datos y corroboremos hipótesis 

A partir del análisis de datos de simulación de tensión MV, se demostró que Kolponomos y Smilodon comparten mandíbulas con una biomecánica similar, sobre todo en rigidez y distribuciones de tensión (Figura 3). Ambos géneros también son similares en la forma de la mandíbula. Aunque es distinto el comportamiento de captura de presas, ambos  presentan una biomecánica mandibular consistente, con un punto anterior que actúa como pivote estable durante la mordida. Este apoyo en la captura de presas, podríamos denominarlo; “canino palanca-mordida” para Kolponomos y “canino cizalla-mordida” para Smilodon. Todo esto apoya la hipótesis de que existe una  convergencia entre Kolponomos y Machairodontinae, en la estructura de la mandíbula y su función como mecanismo de captura de presas

Figura 4: Modelos de estrés en la mandíbula inferior de Kolponomos newportensis (izquierda) frente a Smilodon Fatalis durante la mordedura. (J. Tseng, C. Grohe, J. Flynn, 2016)

Además simulaciones de mordeduras de trituración, vistas en las seis especies, muestran que la mandíbula de Kolponomos es mucho más rígida que las dos nutrias, a la hora de romper las conchas de los moluscos. En este sentido, la mandíbula de Kolponomos se más parece al oso pardo en características biomecánicas, y al mismo tiempo, el oso pardo y Kolponomos también se parecen a Smilodon en tener mandíbulas relativamente rígidas, en lugar de exhibir la combinación de baja rigidez y alta ME (Eficacia mecánica) observada en nutrias de mar (Figura 3c).

En Kolponomos la apófisis mastoides agrandada proporciona una gran áreas para la fijación del musculo oblicuo, y también al estar extendido supone un impulso añadido a la hora de flexionar la cabeza. Esta extensión de la apófisis mastoide es mucho mayor en Smilodon y Kolponomo, en relación con otros carnívoros, lo que indica mayor movimiento para el musculo que trabaja para extender la cabeza. [Anto´n M, Salesa MJ, Pastor JF, Sanchez IM, Fraile S, Morales J (2004), Davis DD (1964)] 

CONCLUSIÓN FINAL

Los resultados de la simulación, junto con los aspectos de la anatomía funcional músculo-esquelético, ofrecen la base para inferir una nueva y única secuencia de alimentación para Kolponomos basado en la captura de presas con un anclaje inicial del incisivo inferior entre la presa y el sustrato, seguido por el cierre de la boca [Tedford RH, Barnes LG, Ray CE (1994)]. Por último, el aplastamiento de la concha de la presa, se consigue con la trituración en la dentición molar, muy similar en nutrias actuales, pero Kolponomos lo logra con una mayor rigidez mandibular.

También debemos recalcar que los datos biomecánicos estructurales analizados, no se opone a la succión de las partes blandas durante la captura de presas por Kolponomos, similar a las morsas de hoy en día. Esto pudo haber sido posible, dada la convergencia observada en adaptaciones de succión de alimentación en muchos subtipos diferentes de vertebrados marinos [Berta A, Sumich JL, Kovacs KM. (2015), Ferry-Graham LA, Lauder GV (2001)]. Esta capacidad sólo nos indicaría un sistema de alimentación altamente complejo y digno de mayor investigación.

Para terminar, la comprensión de las adaptaciones de alimentación semi-acuáticas en los mamíferos fósiles, también puede ser ayudado por los análisis comparativos de otros taxones, como la extinta morsa Gomphotaria pugnax que también se ha planteado la hipótesis de que adaptase estrategias de alimentación similares a Kolponomos. [Tedford RH, Barnes LG, Ray CE. (1994)]

REFLEXIÓN PROPIA


¿Que por que he elegido este articulo ? Como habéis podido leer, cuando la naturaleza perfecciona una característica la conserva, aunque el autor haya desaparecido. En este caso la característica de morder del felino dientes de sable se ha mantenido hasta Kolponomos, incluso cuando ambos animales no se alimenten de lo mismo. Si funciona a la evolución le vale, y por ello esta es PERFECTA Y EFICAZ. Esta propiedad de la evolución es la convergencia evolutiva o evolución convergente, y de ejemplos a lo largo de la historia es de lo que quiero hacer mis entradas  porque me parece fascinante como mecanismos tan complejos puede unir especies tan distintas. 


Hasta aquí mi segundo blog. Un saludo! y hasta la próxima mis lectores.


REFERENCIAS 
  • Akersten WA. (1985) Canine function in Smilodon (Mammalia; Felidae; Machairodontinae). Contrib. Sci. 356, 1 – 22.
  • Anto´n M. (2014) Sabertooth, 268. Bloomington, IN: Indiana University Press.
  • Berta A, Sumich JL, Kovacs KM. (2015) Marinemammals: evolutionary biology, 738. Waltham, MA: Academic Press.
  • Calkins DG. (1978) Feeding behavior and major preyspecies of the sea otter, Enhydra lutris, in Montague Strait, Prince William Sound, Alaska. Fishery Bull. 76, 125 – 131.
  • Estes JA. (1980) Enhydra lutris. Mammal. Species 133, 1 – 8. (doi:10.2307/3503844)
  • Ewer RF. (1973) The carnivores, 494. Ithaca, NY: Cornell University Press.
  • Hall KR, Schaller GB. (1964) Tool usingbehavior of the California sea otter. J. Mammal. 45, 287 – 298. (doi:10.2307/1376994)
  • Jacobs LL, Fiorillo AR, Nishida Y. (2009) Mid-cenozoicmarine mammals from Alaska. In Papers on geology, vertebrate paleontology, and biostratigraphy in Honor of Michael O. Woodburne (ed. LB Albright III),pp. 171 – 184. Flagstaff, AZ: Museum of Northern Arizona Bulletin.
  • Nowak RM. (1999) Walker’s carnivores of the world, 313. Baltimore, MD: The Johns Hopkins University Press.
  • Tedford RH, Barnes LG, Ray CE. (1994) The early Miocene littoral ursoid carnivoran Kolponomos: systematics and mode of life. In Contributions in marine mammal paleontology honoring  FrankC. Whitmore Jr. (eds A Berta, TA Demere), pp. 11 –32. San Diego, CA: Proceedings of the San Diego Society of Natural History.
  • Turner A, Anto´n M, Salesa MJ, Morales J. (2011) Changing ideas about the evolution and functional morphology of Machairodontinefelids. Estudios Geologicos 67, 255 – 276. (doi:10.3989/egeol. 40590.188)


jueves, 3 de marzo de 2016

Una cabra y un dinosaurio en la misma canción

El paleontólogo le debe mucho al registro fósil, este es muy amplio y nos proporciona mucho más de lo que cabría esperar. Un ejemplo de ello es la llamada evolución convergente.
- Pero, ¿qué es la evolución convergente? + Me alegro que me hagas esa pregunta:
- La evolución convergente, podríamos definirla, según el aburrido de Wikipedia, como ¨el  desarrollo de estructuras similares en organismos  no emparentados, resultado de la adaptación a ambientes similares y/o formas de vida semejantes¨. Para los mortales se trata del desarrollo en organismos que evolutivamente no tienen nada que ver, como puede ser un murciélago y  un pterosaurio, pero que, por un motivo u otro, ya sea adaptarse a un nuevo clima o simplemente ser el más ¨guay¨ de la manada, poseen estructuras con la misma función, en este caso sus alas. Convergencia al fin y al cabo es llegar al mismo punto o la misma idea desde caminos distintos.

El artículo origen fue publicado el 4 de Febrero de 2016 en la revista Current Biology (Volumen 26) Unexpected Convergent Evolution of Nasal Domes between Pleistocene Bovids and Cretaceous Hadrosaur Dinosaurs por: 
Haley D. O’Brien, J. Tyler Faith, Kirsten E. Jenkins, Daniel J. Peppe, Thomas W. Plummer,
Zenobia L. Jacobs, Bo Li, Renaud Joannes-Boyau, Gilbert Price, Yue-xing Feng, Christian A. Tryon

Conozcamos a nuestro protagonista

Nuestra historia comienza en la isla de Rusinaga(Kenia), donde recientes excavaciones de yacimientos del Pleistoceno tardío (2,59 m.a) han descubierto un conjunto de fósiles pertenecientes a un bóvido parecido a los Ñus modernos, cuyo nombre científico es Rusingoryx atopocranion. El material fragmentario encontrado de estos nuevos ejemplares revela crestas nasales huecas, algo nunca visto antes en mamíferos, ¿Impresionante verdad? [Estes R.D, (1991)] Para colmo, estas cavidades se asemejan bastante a las ya conocidas en los dinosaurios ¨pico de pato¨ llamados hadrosaurios. Con el uso de este material,  tanto adulto como juvenil, y con las imágenes de tomografía computerizada, vamos a investigar esta INESPERADA convergencia  desde un punto de vista  morfológico, evolutivo y funcional.

Figura 1: Ilustración de nuestro Rusingoryx atopocranion posando una cálida tarde de verano en la estepa del Pleistoceno tardío. (Todd S. Marshall, www.marshalls-art.com )

ANÁLISIS MORFOLÓGICO– Estas cabras son unas ¨copiotas¨ -

En el cráneo en el individuo adulto (KNM-RU-52572), la parte frontal, el nasal y los elementos pre-maxilares forman una prominente cúpula nasal ósea. El conjunto de huesos situado antes de llegar a la dentadura está completamente cerrado e impide el paso de orificios nasales internos. Por ello, la vía respiratoria que discurre por la peculiar cúpula nasal,  pasa a su vez por encima de los senos nasales sin llegar a conectarse con ellos, lo que nos da una vía nasal que entra por la faringe, realiza un curva en forma de “S” y luego (Figura 2) desciende de forma recta por gran parte del rostro del animal. 
Figura 2: Este análisis puede parecer complejo así que adjunto este esquema realizado por mí para ayudar a comprender esta parte anatómica. (Modificado de INFOGRAPHIC de Haley O'Brien, 2016)

Esta morfología en Rusingoryx es muy interesante a nivel evolutivo y anatómico, pues no se ha observado previamente en ningún taxón de mamíferos. El análogo más cercano en cambio, es el tracto nasal de los dinosaurios hadrosaurios con cresta.[Evans D.C (2010)(2006)(2011), Faith J.T, (2011) Frey R, Volodin I, Volodina E (2007)].
Además de los individuos maduros, el conjunto a estudiar contiene un cráneo completo de un individuo juvenil (KNM-RU-59434), de una edad aproximada de 12 a 16 meses. Este cráneo, al igual que en el de los adultos, lleva una especie de cresta, originada por la cúpula nasal que le recorre gran parte de la cara. La principal diferencia con un cráneo adulto es que esta cresta es menos voluminosa por lo que podemos deducir que el cambio de forma de la cresta es un rasgo de maduración en Rusingoryx. En estos aspectos, el conjunto de cambios entre juveniles y adultos aparentes en Rusingoryx atopocranion, muestra notables similitudes con el desarrollo de la cresta en  hadrosaurios. [Evans D.C, Ridgely R, Witmer L.M (2009)]

Figura 3. Similitudes morfológicas entre la cúpula nasal
de bóvidos Alcelaphine y dinosaurios Hadrosaurios crestados (Report de Haley O'Brien, 2016).

ANÁLISIS EVOLUTIVO – Dime como creciste y te diré a quién te pareces –

Para evaluar la trayectoria evolutiva de la adquisición de la bóveda nasal, usaremos un análisis filogenético de Alcelaphinae que es la subfamilia a la que pertenece Rusingoryx. El alcefalino más primitivo de nuestro árbol filogenético será Megalotragus isaaci, el cual posee una bóveda nasal diminuta; el siguiente en la serie será Megalotragus kattwinkeli que demuestra que la elaboración de la morfología de la cresta se lleva a cabo por la extensión de los huesos de la cara y los senos laterales, y para terminar la familia tenemos al verdadero protagonista de la historia Rusingoryx atopocranion. Como era de esperar vamos a comparar la morfología craneal, a medida que avanzamos en el árbol filogenético de Alcelaphinae, con esa misma morfología en el árbol filogenético en Hadrosaurios con cresta. Este último árbol contará con la participación de Aralosaurustuberiferus, Tsiantaosaurus spinorhinus y Parasaurolophus walkeri de más antiguo a más moderno respectivamente (66 m.a Cretacico superior)[Faith J.T, (2011)]

Y al igual que vimos en nuestro análisis morfológico, estos cambios evolutivos de la cresta van a ser similares en ambos linajes. Además cabe destacar que ambas familias no solo esta separadas filogenéticamente sino también temporalmente con 30 millones de años de diferencia.

Figura 4: Análisis filogenético de Alcelaphinae vs Hadrosaurios (Modificado de Report de Haley O'Brien, 2016)

ANÁLISIS FUNCIONAL – ¿Y para qué sirve tanta parafernalia? –

Debido a que tanto la  cúpula y el tracto nasal son estructuras nuevas dentro de los mamíferos actuales, las comparaciones directas con éstos son totalmente imposibles.
Basándonos en que Rusingoryx, al igual que su primo moderno el Ñu africano, le encantaba vivir en pastizales abiertos, sus estructuras funcionales van a estar orientadas principalmente a factores vitales para una especie de este tipo de hábitat. Aquí plantearemos 3 funciones que sin duda Rusingoryx debió haber tenido para adaptarse a la estepa del Pleistoceno. Estas funciones curiosamente en realidad era de esperar se han planteado también en los domos nasales de Hadrosaurios, lo que nos da otro campo de comparación entre estos dos grupos.

1. Termorregulación

En mamíferos, la termorregulación craneal se logra a través de evaporación en las mucosas en  la concha nasal. Poseer una concha nasal mayor en la tráquea podría haber favorecido el almacenamiento de agua respiratoria y a su vez podría haber sido beneficioso para la termorregulación del animal. Sin embargo, la morfología intercraneal de Rusingoryx no es coherente con esta hipótesis pues aunque los cornetes internos dejan pasar el aire no sería suficiente para el enfriamiento del animal.[Garstang M, Larom D, Raspet R, Lindeque M(1995)]

2. Cortejo y combate

A simple vista, nunca mejor dicho, una función posible para la cúpula nasal de Rusingoryx pudo ser la realización de señales de cortejo, o directamente para el combate entre machos,  generalmente con los cuernos. Esto es común hoy en día en Bisontes americanos ya que poseen un cráneo grueso que amortigua los golpes de los rivales ¿Así que por qué no ocurre igual en Rusingoryx? Por desgracia, estudios revelan que la bóveda nasal no tiene la resistencia suficiente para aguantar el golpe de otro macho, además de la posición de los cuernos que no favorece el uso de la bóveda a la hora del enfrentamiento.[Garstang M, Larom D, Raspet R, Lindeque M(1995)] 

3. Vocalización

Por último, otro medio de señalización intra e interespecifica (Relación del individuo tanto con otros de su misma especia como con los de una diferente) que implica la bóveda nasal es la vocalización y en este caso hay numerosos detalles morfológicos que apoyan a ésta como función de la bóveda de Rusingoryx. La configuración muscular es sugerente de una capacidad excepcional para levantar la laringe hacia el tracto nasal. Además, los grandes senos maxilares y palatales pueden haber amplificado la salida vocal actuando como cámaras de resonancia. Los modelos acústicos para la producción de la onda armónica  sugieren que la bóveda nasal de Rusingoryx podría ser capaz de propagar los sonidos de entre 248 y 746 Hz, es decir de tono muy bajo teniendo en cuenta que la mayoría de los mamíferos lo hacen alrededor de 1,100 Hz. Lo más sorprendente es la coincidencia casi total entre las frecuencias de resonancia de Rusingoryx y hadrosaurios con cresta.[Fitch W.T (1997)(2000)]

Esto es muy útil en animales que forman manadas como los grandes dinosaurios herbívoros o Rusingoryx, una comunicación eficiente a largas distancias, en particular a través de vocalizaciones infrasónicas, puede ayudar en la hora de evitar depredadores o la señalización intraespecífica.


Todo llega a su fin…

Llegamos al final de nuestro primer artículo de 3 que conformaran la serie, más uno adicional recopilando lo mejor de los anteriores. En este capítulo hemos viajado al pleistoceno tardío para conocer a un bóvido que tenía complejo de dinosaurio. Cada día me asombra mas todo lo que se puede saber de un animal extinto solo por unos cuantos restos, es algo que admiro sinceramente de la paleontología. Como diría mi profesora de estratigrafía ¿NO OS PARECE EMOCIONAAAANTE ??? Con esto me despido…
Hasta la próxima mis lectores.

NUESTROS PROTAGONISTAS

Hadrosaurios: llegados desde el mismísimo Mesozoico colonizaron todos los continentes, obviamente este artículo también. (dinosapiens.es)

Rusingoryx atopocranion: El don juan de esta historia. Siempre en nuestros corazones. (Ilustración por Hodari Nundu)

REFERENCIAS
  • Estes R.D (1991), Behavior Guide to African Mammals University of California Press
  • Evans D.C (2010), Cranial anatomy and systematics of Hypacrosaurus altispinus, and a comparative analysis of skull growth in lambeosaurine hadrosaurids (Dinosauria: Ornithischia) Zool. J. Linn. Soc, 159, pp. 398–434
  • Evans D.C, (2006) Nasal cavity homologies and cranial crest function in lambeosaurine dinosaurs Paleobiology, 32 , pp. 109–125
  • Evans D.C, Ridgely R, Witmer L.M (2009), Endocranial anatomy of lambeosaurine hadrosaurids (Dinosauria: Ornithischia): a sensorineural perspective on cranial crest function Anat. Rec. (Hoboken), 292, pp. 1315–1337
  • Faith J.T, (2011) Choiniere J.N, Tryon C.A, Peppe D.J, Fox D.L,(2011) Taxonomic status and paleoecology of Rusingoryx atopocranion (Mammalia, Artiodactyla), an extinct Pleistocene bovid from Rusinga Island, Kenya Quat. Res., 75, pp. 697–707
  • Fitch W.T (1997), Vocal tract length and formant frequency dispersion correlate with body size in rhesus macaques J. Acoust. Soc. Am., 102, pp. 1213–1222
  • Fitch W.T (2000), The phonetic potential of nonhuman vocal tracts: comparative cineradiographic observations of vocalizing animals Phonetica, 57, pp. 205–218
  • Frey R, Volodin I, Volodina E (2007), A nose that roars: anatomical specializations and behavioural features of rutting male saiga J. Anat., 211, pp. 717–736
  • Garstang M, Larom D, Raspet R, Lindeque M(1995), Atmospheric controls on elephant communication J. Exp. Biol., 198 pp. 939–951