viernes, 4 de marzo de 2016

¡Bienvenido amigo!

Demos la bienvenida a un nuevo miembro de la paleontología

Artículo: Serrano-Brañas, C.I., Torres-Rodriguez, E., Reyes-Luna, P.C., Gonzalez-Ramírez, I. y González-León, C. (2016). A new ornithomimid dinosaur from the Upper Cretaceous Packard Shale formation (Cabullona Group) Sonora, Mexico. Cretaceous Research 58. 49-62.


       Empecemos por lo importante: ¡Se ha descubierto una nueva especie y                 género de dinosaurio!  

     Los restos fósiles han sido hallados al NE del estado de Sonora, situado al NO      del país de México (Figura 1). Geológicamente, se encuentra dentro de la gran      cuenca continental de Cabullona (de unos 80 km de longitud y 30 km de                   ancho), formada durante el Cretácico superior. Su relleno sedimentario es de          origen fluvial y lacustre, tiene una potencia de unos 4 km de espesor y data                    entre 80-70 m.a     (Gonzalez-León et al., 2014).

       Figura 1. Mapa de situación geográfica de la zona
 de descubrimiento de los restos fósiles
 (modificado de: Serrano-Brañas, et     al., 2016).

       
La sección tipo de la unidad Cabullona se encuentra en los afloramientos situados al sur de la ciudad de Naco (al N de Sonora, justo en la frontera con EEUU). Esta sección, consta desde la base de las siguientes formaciones: “Corral de En medio” (limos), “Camas Sandstone” (intercalación de arenas co capas de toba), “Packand Shale” (pizarras) y “Lomas Coloradas” (intercalación de conglomerado, arenas y capas de tobas) (Taliaferro, 1933) (Figura 2). Los fósiles se han encontrado en la formación de pizarras.
Figura 2. Columna estratigráfica tipo de la unidad Cabullona (Serrano-Brañas, et al., 2016)

Los restos fósiles encontrados han sido clasificados como una nueva especie de Ornitomímído, pertenecientes a su vez al infraorden Ornithomimosaurio. Estos, son dinosaurios terópodos celurosaurianos que se caracterizan por tener una estructura ligera, una talla entre media y grande, ser cursoriales (es decir, con extremidades aptas para correr) y tener las extremidades anteriores más bien largas, entre otros detalles.

Vivieron en el hemisferio norte durante el Cretácico y son comunes en las faunas de dinosaurios de Norteamérica y Asia. En la Figura 3 se pueden ver algunos de los géneros de Ornithomimosaurio existentes para que os hagáis una idea de la clase de dinosaurio del que se está hablando.
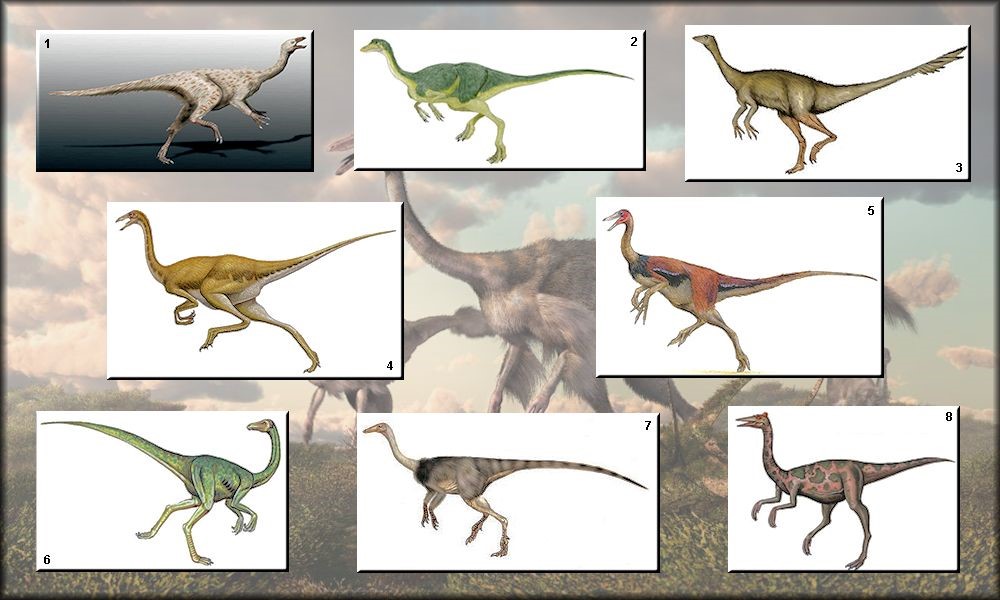

Figura 3. Ilustraciones de los diferentes géneros de Ornitomimosaurio (Google).


El nombre que se la ha otorgado a esta nueva especie es Tototlmimus packardensis, por lo que su clasificación taxonómica sería la siguiente:

  •       Superorden: Dinosauria
  •       Orden: Saurischia
  •       Suborden: Theropoda
  •    Infraorden: Ornithomimosauria
  •    Familia: Ornithomimidae
  •    Género: Tototlmimus packardensis

Y ahora…la pregunta que todos os estaréis haciendo: ¿Cómo han conseguido los paleontólogos clasificarlo con tanta exactitud? Pues bien, resulta que nuestro amigo Tototlmimus packardensis, tiene unas características en sus patas que nadie más posee. Estas diferencias con los otros géneros de Ornitomímidos se hacen visibles sobre todo en los metatarsos y en las articulaciones de las extremidades posteriores:

- Tiene una fina articulación ginglimoide en el metatarso III. Este tipo de articulaciones son las que permiten el movimiento en un solo eje transversal (tipo bisagra), como por ejemplo nuestro codo. Este tipo de articulación no se ha visto en ningún género de Ornitomímido, puesto que las articulaciones no ginglimoides son especialmente importantes en los taxones cursoriales (que corren).

-  Presenta una articulación distintiva entre los metatarsos, donde el extremo distal de los metatarsos II y IV están en contacto directo con la parte distal del metatarso III.

-  Las caras media y lateral del metatarso III tienen la forma de los metatarsos II y IV, por lo que todos los extremos distales se mueven juntos cuando se articulan.

-  Las garras de las extremidades posteriores son asimétricas y estrechas, con surcos superficiales (poco profundos) en sus caras media y lateral.

-  En la planta de las patas, tiene surcos profundos, cerca del final de la articulación.

Todas estas características tan detalladas, pueden sonar un poco a chino, pero tranquilidad, en la Figura 4 se pueden comprobar  visualmente las diferencias entre los metatarsos del resto de géneros de Ornitomímido y los de Tototlmimus packardensis (letra g).


Figura 4. Comparación de los metatarsos de los distintos géneros de Ornitomímido (Serrano-Brañas, et al., 2016).


Una vez recopilada toda esta información, se puede ir deduciendo donde situarlo dentro de un cladograma, haciendo un estudio filogenético.

Los autores del artículo realizaron una primera clasificación más general utilizando los principales taxones de los celurosaurios. La matriz utilizada tiene 74 entradas y 292 caracteres y es el resultado de unir las especies descubiertas hasta en dos artículos diferentes entre 2007 y 2010  (Makovicky et al., 2010 y Turner et al., 2007). Este método confirmó que Tototlmimus packardensis debía incluirse dentro del infraorden de los Ornitomimosaurios.

Por otro lado con el fin de estudiar más profundamente  la relación entre Tototlmimus packardensis y otros ornitomímidos, se ha realizado un estudio filogenético más específico. Para ello se utilizó otra matriz, esta vez con 13 entradas y 41 caracteres (Kobayashi and Lü, 2003 y Makovicky et al., 2010). Fueron seleccionados 11 taxones de  Ornitomimosaurios y de este estudio se obtuvieron dos nuevos cladogramas (Figuras 5 y 7). En estos se observa una politomía (un nodo sin bifurcación, también se les llama “nodos sin resolver”) entre los géneros Struthiomimus, Ornithomimus, Sinornithomimus y Tototlmimus, como causa de la existencia de dos posibles posiciones para Tototlmimus packardensis.


Figura 5. Primer cladograma de clasificación de Tototlmimus packardensis
(Serrano-Brañas, et al., 2016).

El primer cladograma (Figura 5) solo muestra que Tototlmimus está posicionado dentro de los Ornitomímidos en base a la condición de arctometatarsaliano, es decir que la parte proximal de su metatarso medio está presionado entre los metatarsos circundantes (Figura 6).


          Figura 6. A la izquierda extremidad de Tyrannosaurus (arctometatarsaliano).
           A la derecha extremidad de Allosaurus (NO arctometatarsaliano).


El segundo cladograma (Figura 7) es más informativo, puesto que muestra la correspondencia de Tototlmimus packardensis a un ornitomímido derivado del encontrado en el “clado Norteamericano” propuesto por Kobayashi y Lü (2003).


Figura 7. Segundo cladograma de clasificación del Tototlmimus packardensis
(Serrano-Brañas, et al., 2016).

    En resumen, se puede decir que se ha descrito a nuestro amigo Tototlmimus packardensis como un         nuevo género y especie de ornitomímido en el Cretácico superior del sur de América del Norte. A           pesar de la limitada información de diagnóstico del holotipo y teniendo un único ejemplar conocido,       este posee un conjunto de características particulares que le hacen único entre el resto de                         ornitomímidos conocidos de Norteamérica y Asia.

BIBLIOGRAFÍA


  • Gonzalez-León, C. M., Solari, L., Madhavaraju, J., & Villanueva-Amadoz, U. (2014). Evolution of the late cretaceous (Campanian) cabullona Basin in Sonora: Regional stratigraphy and UePb geochronology. En Convención  Nacional Memorias (pp. 22e23). Sociedad Geologica Mexicana.
  • Kobayashi, Y., & Lü, J. C. (2003). A new ornithomimid dinosaur with gregarious habits from the Late Cretaceous of China. Acta Palaeontologica Polonica, 48(2), 235-259.
  • Kobayashi, Y., & Barsbold, R. (2004). Phylogeny or Ornithomimosauria and its paleobiogeographic implications. In Proceedings of the 19 Th international Congress of zoology, Beijing, China, 23-27 August 2004 (pp. 50-52). Beijing, China: China Zoological Society.
  • Makovicky, P. J., Li, D., Gao, K.-Q., Lewin, M., Erickson, G. M., & Norell, M. A. (2010). A giant ornithomimosaur from the Early Cretaceous of China. Proceedings of the Royal Society, 277,191 198.
  • Taliaferro, N. L. (1933). An occurrence of Upper Cretaceous sediments in northern Sonora, Mexico. Journal of Geology, 41,12-37.
  • Turner, A. H., Pol, D., Clarke, J. A., Erickson, G. M., & Norrell, M. A. (2007). A basal dromaeosaurid and size evolution preceding avian flight. Science, 317, 1378-1381.
  • Xu, L., Kobayashi, Y., Lü, J., Lee, Y. N., Liu, Y., Tanaka, K., et al. (2011). A new ornithomimid dinosaur with Northamerican affinities from the Late Cretaceous Quipa Formation in Henan Province of China. Cretaceous Research, 32, 213-222.


jueves, 3 de marzo de 2016

¿MAMÍFEROS EN EL JURÁSICO MEDIO?

Solemos pensar que en la era Mesozoica, la era de los grandes saurios, pertenecía en definitiva únicamente a ellos, pero no.

A lo largo del periodo Jurásico, empezó a diversificarse la subclase theria madre que ya terminaría de definirse y tomar mayor relevancia durante el Cretácico, hace unos 120 millones de años aproximadamente. Estos son una subclase de mamíferos caracterizada por que el embrión se desarrolla en el útero materno en vez de en el interior de huevos, e incluye a los que más tarde serán los placentarios, o la infraclase placentalia, (como ciervos, elefantes, tigres, etc) y marsupiales, o infraclase marsupialia, (como los canguros y koalas). 
También dio lugar a otra infraclase más, trituberculata, ya extinta.

En este articulo publicado en enero de 2016 en la revista Palaeontology (volumen 59, páginas 155–169):


Y es que si es verdad que estos primeros mamíferos jurásicos eran de pequeño tamaño y vivían a la "sombra" de los grandes dinosaurios. Tendrían un aspecto algo similar al de ratones o comadrejas actuales.

Gran Bretaña presenta un gran número de fósiles de esta primera diversificación en este periodo clave en la evolución hacia mamíferos más complejos. Esta franja temporal geológica se conoce como Bathoniense, edad englobada dentro del Jurásico medio. (Imagen 1).

Imagen 1.1: la Tabla Cronoestratigráfica Internacional, que recoge los distintos tiempos geológicos donde se ve una zona azul que es la perteneciente al Jurásico, se muestra abajo en detalle.

Imagen 1.2: en detalle la edad Bathoniense.

El hallazgo de la isla de Skye (imagen 2) en Escocia de un fragmento de mandíbula de uno de estos pequeños bichejos fue muy importante porque permitió modificar y completar el árbol filogenético, ya que ayudó a definir a una especie, Palaeoxonodon ooliticus (Close et al., 2016), de forma mas completa. Hasta ahora solo se conocía su  existencia por un diente aislado.

El hallazgo en cuestión es una mandíbula inferior izquierda de 11.6 mm de largo por 1.66 mm de ancho (en su zona más ancha). (Imagen 3) 

Imagen 2: El Dr. Roger Close trabajando en yacimiento donde se obtuvo el fósil, bonito lugar de trabajo, ¿no?

Imagen 3: pequeña mandíbula de Palaeoxonodon ooliticus (Close et al., 2016).

Al ser tan pequeño resulta bastante complicado su estudio, además que cuando un fósil tan delicado se encuentra incluido en una roca lo mejor es evitar sacarlo ya que podría romperse, y esto complicaba la observación de la mandíbula por el interior, así que estos científicos se las ingeniaron para poder manipular este fósil sin dañarlo.

Para ello lo que hicieron fue, siguiendo el método de Schultz y Martin, 2014, utilizar las nuevas tecnologías de impresión 3D y crear una réplica exacta del fósil en cuestión... ¡pero 20 veces más grande que el original! Hecho de poliamida sintético, claro.

Necesitaron realizar un escaneo de la roca que contenía el fósil y digitalizarla (Imagen 4) donde ya además consiguieron ver el interior de la mandíbula y el detalle de los dientes.
Después solo tuvieron que pasar los datos necesarios a la impresora y el resultado fue increíble. (Imagen 5) Todo esto se llevo a cabo mediante i.materialise.


Imagen 4: digitalización de la mandíbula.

Imagen 5: resultado final tras la impresión 3D.

Una vez pudiendo manejar el "fósil" tranquilamente realizaron un exhaustivo estudio sobre la dentición llegando a la conclusión de que era 4.1.5.5. ¿Qué significa esto? Pues que esta compuesta por cuatro incisivos, un canino, cinco premolares y cinco molares. 

¿Cómo saben esa proporción si solo once dientes en el fósil mientras que 4+1+5+5 son quince? Bla, bla, bla, mucha terminología científica y observaciones de las distintas morfologías de los dientes que sí tenían (Imagen 6). Distintas características encontradas en la corona, cuello y raiz de cada diente (Imagen 7), la toma de medidas numéricas para cada uno, así como la observación de otras especies fósiles cercanamente emparentadas llevaron al Dr. Close y su equipo de científicos a esa conclusión; aunque no se descartan otras proporciones.

Imagen 6: Separación de los dientes de la mandíbula digitalmente.
Imagen 7: detalles de las características observadas en cada diente.

Y ahora te estarás preguntando cómo puede un fósil tan pequeño ser tan relevante para conocer el origen de los mamíferos actuales.
Bien, pues examinando la morfología de la mandíbula con los dientes hallada observamos características que no concuerdan con otros géneros descritos completamente sino que posee características similares a unos y otros, por ello se determina que es de un género distinto.

Como conclusión tras el estudio a fondo de esta mandíbula se determina que Palaeoxonodon es un taxón hermano de Amphitherium ya que poseen una dentición similar (Clemens, 2001).  En lo que no se terminan de poner de acuerdo es en la colocación respecto a otros géneros, con lo cual hay varias interpretaciones (Imagen 8.1 y 8.2).


Imagen 8.1: Análisis de parsimonia según la matriz de Zhou et al. (2013).
Imagen 8.2: Análisis de parsimonia según la matriz de Rougier et al. (2011).

Pero al final en lo que parece que sí están de acuerdo es en que el género Palaexonodon ooliticus (Close et al., 2016) se encuentra en la base de la diversificación de la subclase de los therians.


¡Así que tened cuidado y no infravaloréis lo que hay a vuestra sombra, que cualquier día ellos podrían dominar la Tierra! 


Referencias:
  • Butler, 1990. Early trends in the evolution of tribosphenic molars. Biological Reviews, 65, 529–552, -& Clemens, W. A. 2001. Dental morphology of the Jurassic holotherian mammal Amphitherium, with a discussion of the evolution of mammalian post-canine dental formulae. Palaeontology, 44, 1–20.
  • Clemens, W. A. 1986. On Triassic and Jurassic mammals. 237–246. In PADIAN, K. (ed.). The beginning of the age of dinosaurs. Cambridge University Press.
  • Close, R. A., Friedman, M., Lloyd, G. T. & Benson, R. B. J. 2015a. Evidence for a mid-Jurassic adaptive radiation in mammals. Current Biology, 25 (16), 2137–2142. doi:10.1016/j.cub.2015.06.047. -Davis, B. M., Walsh, S., Wolniewicz, A. S., Friedman, M. & Benson, R. B. J. 2015b. Data from: A lower jaw of Palaeoxonodon from the Middle Jurassic of the Isle of Skye, Scotland, sheds new light on the diversity of British stem therians. Dryad Digital Repository. doi:10.5061/ dryad.52582
  • Gaetano, L. C. & Rougier, G. W. 2011. New materials of Argentoconodon fariasorum (Mammaliaformes, Triconodontidae) from the Jurassic of Argentina and its bearing on triconodont phylogeny. Journal of Vertebrate Paleontology, 31, 829–843.
  • Schultz, J. A. & Martin, T. 2014. Function of pretribosphenic and tribosphenic mammalian molars inferred from 3D animation. Naturwissenschaften, 101, 771–781. doi:10.1007/ s00114-014-1214-y
  • Zhou, C.-F., Wu, S., Martin, T. & Luo, Z.-X. 2013. A Jurassic mammaliaform and the earliest mammalian evolutionary adaptations. Nature, 500, 163–167.

Una cabra y un dinosaurio en la misma canción

El paleontólogo le debe mucho al registro fósil, este es muy amplio y nos proporciona mucho más de lo que cabría esperar. Un ejemplo de ello es la llamada evolución convergente.
- Pero, ¿qué es la evolución convergente? + Me alegro que me hagas esa pregunta:
- La evolución convergente, podríamos definirla, según el aburrido de Wikipedia, como ¨el  desarrollo de estructuras similares en organismos  no emparentados, resultado de la adaptación a ambientes similares y/o formas de vida semejantes¨. Para los mortales se trata del desarrollo en organismos que evolutivamente no tienen nada que ver, como puede ser un murciélago y  un pterosaurio, pero que, por un motivo u otro, ya sea adaptarse a un nuevo clima o simplemente ser el más ¨guay¨ de la manada, poseen estructuras con la misma función, en este caso sus alas. Convergencia al fin y al cabo es llegar al mismo punto o la misma idea desde caminos distintos.

El artículo origen fue publicado el 4 de Febrero de 2016 en la revista Current Biology (Volumen 26) Unexpected Convergent Evolution of Nasal Domes between Pleistocene Bovids and Cretaceous Hadrosaur Dinosaurs por: 
Haley D. O’Brien, J. Tyler Faith, Kirsten E. Jenkins, Daniel J. Peppe, Thomas W. Plummer,
Zenobia L. Jacobs, Bo Li, Renaud Joannes-Boyau, Gilbert Price, Yue-xing Feng, Christian A. Tryon

Conozcamos a nuestro protagonista

Nuestra historia comienza en la isla de Rusinaga(Kenia), donde recientes excavaciones de yacimientos del Pleistoceno tardío (2,59 m.a) han descubierto un conjunto de fósiles pertenecientes a un bóvido parecido a los Ñus modernos, cuyo nombre científico es Rusingoryx atopocranion. El material fragmentario encontrado de estos nuevos ejemplares revela crestas nasales huecas, algo nunca visto antes en mamíferos, ¿Impresionante verdad? [Estes R.D, (1991)] Para colmo, estas cavidades se asemejan bastante a las ya conocidas en los dinosaurios ¨pico de pato¨ llamados hadrosaurios. Con el uso de este material,  tanto adulto como juvenil, y con las imágenes de tomografía computerizada, vamos a investigar esta INESPERADA convergencia  desde un punto de vista  morfológico, evolutivo y funcional.

Figura 1: Ilustración de nuestro Rusingoryx atopocranion posando una cálida tarde de verano en la estepa del Pleistoceno tardío. (Todd S. Marshall, www.marshalls-art.com )

ANÁLISIS MORFOLÓGICO– Estas cabras son unas ¨copiotas¨ -

En el cráneo en el individuo adulto (KNM-RU-52572), la parte frontal, el nasal y los elementos pre-maxilares forman una prominente cúpula nasal ósea. El conjunto de huesos situado antes de llegar a la dentadura está completamente cerrado e impide el paso de orificios nasales internos. Por ello, la vía respiratoria que discurre por la peculiar cúpula nasal,  pasa a su vez por encima de los senos nasales sin llegar a conectarse con ellos, lo que nos da una vía nasal que entra por la faringe, realiza un curva en forma de “S” y luego (Figura 2) desciende de forma recta por gran parte del rostro del animal. 
Figura 2: Este análisis puede parecer complejo así que adjunto este esquema realizado por mí para ayudar a comprender esta parte anatómica. (Modificado de INFOGRAPHIC de Haley O'Brien, 2016)

Esta morfología en Rusingoryx es muy interesante a nivel evolutivo y anatómico, pues no se ha observado previamente en ningún taxón de mamíferos. El análogo más cercano en cambio, es el tracto nasal de los dinosaurios hadrosaurios con cresta.[Evans D.C (2010)(2006)(2011), Faith J.T, (2011) Frey R, Volodin I, Volodina E (2007)].
Además de los individuos maduros, el conjunto a estudiar contiene un cráneo completo de un individuo juvenil (KNM-RU-59434), de una edad aproximada de 12 a 16 meses. Este cráneo, al igual que en el de los adultos, lleva una especie de cresta, originada por la cúpula nasal que le recorre gran parte de la cara. La principal diferencia con un cráneo adulto es que esta cresta es menos voluminosa por lo que podemos deducir que el cambio de forma de la cresta es un rasgo de maduración en Rusingoryx. En estos aspectos, el conjunto de cambios entre juveniles y adultos aparentes en Rusingoryx atopocranion, muestra notables similitudes con el desarrollo de la cresta en  hadrosaurios. [Evans D.C, Ridgely R, Witmer L.M (2009)]

Figura 3. Similitudes morfológicas entre la cúpula nasal
de bóvidos Alcelaphine y dinosaurios Hadrosaurios crestados (Report de Haley O'Brien, 2016).

ANÁLISIS EVOLUTIVO – Dime como creciste y te diré a quién te pareces –

Para evaluar la trayectoria evolutiva de la adquisición de la bóveda nasal, usaremos un análisis filogenético de Alcelaphinae que es la subfamilia a la que pertenece Rusingoryx. El alcefalino más primitivo de nuestro árbol filogenético será Megalotragus isaaci, el cual posee una bóveda nasal diminuta; el siguiente en la serie será Megalotragus kattwinkeli que demuestra que la elaboración de la morfología de la cresta se lleva a cabo por la extensión de los huesos de la cara y los senos laterales, y para terminar la familia tenemos al verdadero protagonista de la historia Rusingoryx atopocranion. Como era de esperar vamos a comparar la morfología craneal, a medida que avanzamos en el árbol filogenético de Alcelaphinae, con esa misma morfología en el árbol filogenético en Hadrosaurios con cresta. Este último árbol contará con la participación de Aralosaurustuberiferus, Tsiantaosaurus spinorhinus y Parasaurolophus walkeri de más antiguo a más moderno respectivamente (66 m.a Cretacico superior)[Faith J.T, (2011)]

Y al igual que vimos en nuestro análisis morfológico, estos cambios evolutivos de la cresta van a ser similares en ambos linajes. Además cabe destacar que ambas familias no solo esta separadas filogenéticamente sino también temporalmente con 30 millones de años de diferencia.

Figura 4: Análisis filogenético de Alcelaphinae vs Hadrosaurios (Modificado de Report de Haley O'Brien, 2016)

ANÁLISIS FUNCIONAL – ¿Y para qué sirve tanta parafernalia? –

Debido a que tanto la  cúpula y el tracto nasal son estructuras nuevas dentro de los mamíferos actuales, las comparaciones directas con éstos son totalmente imposibles.
Basándonos en que Rusingoryx, al igual que su primo moderno el Ñu africano, le encantaba vivir en pastizales abiertos, sus estructuras funcionales van a estar orientadas principalmente a factores vitales para una especie de este tipo de hábitat. Aquí plantearemos 3 funciones que sin duda Rusingoryx debió haber tenido para adaptarse a la estepa del Pleistoceno. Estas funciones curiosamente en realidad era de esperar se han planteado también en los domos nasales de Hadrosaurios, lo que nos da otro campo de comparación entre estos dos grupos.

1. Termorregulación

En mamíferos, la termorregulación craneal se logra a través de evaporación en las mucosas en  la concha nasal. Poseer una concha nasal mayor en la tráquea podría haber favorecido el almacenamiento de agua respiratoria y a su vez podría haber sido beneficioso para la termorregulación del animal. Sin embargo, la morfología intercraneal de Rusingoryx no es coherente con esta hipótesis pues aunque los cornetes internos dejan pasar el aire no sería suficiente para el enfriamiento del animal.[Garstang M, Larom D, Raspet R, Lindeque M(1995)]

2. Cortejo y combate

A simple vista, nunca mejor dicho, una función posible para la cúpula nasal de Rusingoryx pudo ser la realización de señales de cortejo, o directamente para el combate entre machos,  generalmente con los cuernos. Esto es común hoy en día en Bisontes americanos ya que poseen un cráneo grueso que amortigua los golpes de los rivales ¿Así que por qué no ocurre igual en Rusingoryx? Por desgracia, estudios revelan que la bóveda nasal no tiene la resistencia suficiente para aguantar el golpe de otro macho, además de la posición de los cuernos que no favorece el uso de la bóveda a la hora del enfrentamiento.[Garstang M, Larom D, Raspet R, Lindeque M(1995)] 

3. Vocalización

Por último, otro medio de señalización intra e interespecifica (Relación del individuo tanto con otros de su misma especia como con los de una diferente) que implica la bóveda nasal es la vocalización y en este caso hay numerosos detalles morfológicos que apoyan a ésta como función de la bóveda de Rusingoryx. La configuración muscular es sugerente de una capacidad excepcional para levantar la laringe hacia el tracto nasal. Además, los grandes senos maxilares y palatales pueden haber amplificado la salida vocal actuando como cámaras de resonancia. Los modelos acústicos para la producción de la onda armónica  sugieren que la bóveda nasal de Rusingoryx podría ser capaz de propagar los sonidos de entre 248 y 746 Hz, es decir de tono muy bajo teniendo en cuenta que la mayoría de los mamíferos lo hacen alrededor de 1,100 Hz. Lo más sorprendente es la coincidencia casi total entre las frecuencias de resonancia de Rusingoryx y hadrosaurios con cresta.[Fitch W.T (1997)(2000)]

Esto es muy útil en animales que forman manadas como los grandes dinosaurios herbívoros o Rusingoryx, una comunicación eficiente a largas distancias, en particular a través de vocalizaciones infrasónicas, puede ayudar en la hora de evitar depredadores o la señalización intraespecífica.


Todo llega a su fin…

Llegamos al final de nuestro primer artículo de 3 que conformaran la serie, más uno adicional recopilando lo mejor de los anteriores. En este capítulo hemos viajado al pleistoceno tardío para conocer a un bóvido que tenía complejo de dinosaurio. Cada día me asombra mas todo lo que se puede saber de un animal extinto solo por unos cuantos restos, es algo que admiro sinceramente de la paleontología. Como diría mi profesora de estratigrafía ¿NO OS PARECE EMOCIONAAAANTE ??? Con esto me despido…
Hasta la próxima mis lectores.

NUESTROS PROTAGONISTAS

Hadrosaurios: llegados desde el mismísimo Mesozoico colonizaron todos los continentes, obviamente este artículo también. (dinosapiens.es)

Rusingoryx atopocranion: El don juan de esta historia. Siempre en nuestros corazones. (Ilustración por Hodari Nundu)

REFERENCIAS
  • Estes R.D (1991), Behavior Guide to African Mammals University of California Press
  • Evans D.C (2010), Cranial anatomy and systematics of Hypacrosaurus altispinus, and a comparative analysis of skull growth in lambeosaurine hadrosaurids (Dinosauria: Ornithischia) Zool. J. Linn. Soc, 159, pp. 398–434
  • Evans D.C, (2006) Nasal cavity homologies and cranial crest function in lambeosaurine dinosaurs Paleobiology, 32 , pp. 109–125
  • Evans D.C, Ridgely R, Witmer L.M (2009), Endocranial anatomy of lambeosaurine hadrosaurids (Dinosauria: Ornithischia): a sensorineural perspective on cranial crest function Anat. Rec. (Hoboken), 292, pp. 1315–1337
  • Faith J.T, (2011) Choiniere J.N, Tryon C.A, Peppe D.J, Fox D.L,(2011) Taxonomic status and paleoecology of Rusingoryx atopocranion (Mammalia, Artiodactyla), an extinct Pleistocene bovid from Rusinga Island, Kenya Quat. Res., 75, pp. 697–707
  • Fitch W.T (1997), Vocal tract length and formant frequency dispersion correlate with body size in rhesus macaques J. Acoust. Soc. Am., 102, pp. 1213–1222
  • Fitch W.T (2000), The phonetic potential of nonhuman vocal tracts: comparative cineradiographic observations of vocalizing animals Phonetica, 57, pp. 205–218
  • Frey R, Volodin I, Volodina E (2007), A nose that roars: anatomical specializations and behavioural features of rutting male saiga J. Anat., 211, pp. 717–736
  • Garstang M, Larom D, Raspet R, Lindeque M(1995), Atmospheric controls on elephant communication J. Exp. Biol., 198 pp. 939–951