domingo, 26 de junio de 2016

Mamíferos, aves y arácnidos.

¡Parece que llegamos al final de nuestro paso por este blog!

He centrado el hilo conductor de mis tres entradas de este blog en nuevas especies descubiertas este último año que han resultado importantes para poder comprender como han ido evolucionando las especies hasta nuestros días, sobre todo en sus individuos más basales. Por ello, cada una de las entradas estaba enfocada en una clase de animal distinto:


Aunque los dinosaurios sean los reyes del Mesozoico, hay que destacar las dos importantes diversificaciones de mamíferos (una en el Jurásico y otra en el Cretácico). En esta entrada hablo del estudio de una pequeña mandíbula de uno de los mamíferos más basales el cual ha ayudado a obtener más información sobre las primeras diversificaciones de la clase de los mamíferos y el origen de estos.


¿Dinosaurios con plumas? ¿Aves? Temas bastante estudiados actualmente y de los que se siguen obteniendo datos. La especie de la que hablo en esta entrada, Chongmingia zhengi (Wang, et. al., 2016), es otro eslabón al que han clasificado como posiblemente el segundo más antiguo después del famoso Archaeopterix (Archaeopterix lithographica (Meyer, 1861)). Con lo cual este da información de estos primeros pajarillos basales.


En esta tercera entrada hablo de Idmonarachne brasieri (Garwood et al., 2016) un arácnido del Carbonífero que no llega a ser considerado aun una araña, pero ya posee alguna característica de estas, con lo cual ha dado bastante información de la evolución de estos arácnidos.


Como veis cada blog de una clase de animal distinto (mamíferos, aves y artrópodos), pero todas las clases animales son importantes para reconstruir la historia de la vida, una tarea paleontológica que considero de gran importancia y quizá por ello los tres artículos sobre los que he escrito despertaron mi interés lo suficiente como para escribir sobre ellos.


¡Esto es todo!


Referencias:


-Hermann von Meyer (1861) Archaeopteryx litographica und Pterodactylus von Solenhofen. N. Jhb. Mineralogie, Geognosie, Geologie und Petrefakten-Kunde : V + 678 - 679

-Min Wang, Xiaoli Wang, Yan Wang & Zhonghe Zhou. (2016) A new basal bird from China with implications for morphological diversity in early birds. Scientific Reports.

-Russell J. Garwood, Jason A. Dunlop, Paul A. Selden, Alan R. T. Spencer, Robert C. Atwood, Nghia T. Vo & Michael Drakopoulos (2016) Almost a spider: a 305-million-year-old fossil arachnid and spider origins.  Proceedings of the Royal Society B (volumen 283, publicación 1827).


viernes, 10 de junio de 2016

LA HUELLA MARCA EL FINAL

Bueno queridos amigos, aquí acaba esta maravillosa etapa en la que os he ido contando diferentes formas de obtener datos sobres las icnitas.

Recapitulando un poco, aquí tenéis un breve resumen de los artículos y lo que expresa cada uno:

El primero, que trataba sobre unas huellas encontradas en Navarra, que pertenecían a la Formación Lerín. Estas huellas pertenecían a Uvaichnites riojana, y este artículo se basaba principalmente en la identificación de la especie y los diferentes métodos que se utilizaron para su determinación.


Huellas de Uvaichnites riojana pertenecientes al primer artículo.

Este primer artículo se basa en la descripción de estas huellas y en la atribución a una especie concreta. Lo que se observa es que es un artículo el cual se hace un estudio de nuevas huellas y con el que se mejora la descripción del artículo original. Además para mí tienen un toque especial porque las huellas son de la Península.

El segundo, describía como era una amplia serie de huellas de dos taxones diferentes,  y Ichniotherium y con todos los datos obtenidos se hacía un análisis de las funciones de cada uno de los dos, en el cual aparte se hacía hincapié sobre los métodos que se utilizaban y si eran correctos o no.

Este artículo es el más extenso de los tres, y en el que la visión de las huellas que se da aparte de la descriptiva, es la cantidad de información que se puede conseguir con este tipo de fósiles, que en este caso además se ha basado en la corrobación de que las huellas son una fuente fiable de información.

Y el tercero, se basaba en la descripción e identificación de una especie, el Tyrannosaurus rex, y en el cálculo mediante diversas fórmulas matemáticas de como debía ser dicho espécimen y la descripción principalmente de su modo de locomoción.


Tyrannosaurus rex de lego.

Este último artículo nos aporta como debía ser la forma de vida de los organismos del pasado. Se utilizan métodos puramente matemáticos para el cálculo de cómo debía ser el espécimen y la velocidad de locomoción que podía alcanzar.

Aquí os dejo los enlaces de cada una de las entradas de mi blog sobre cada uno de los tres artículos:

1º. VALE MÁS UNA HUELLA QUE MIL PALABRAS


2º LA FUNCIÓN DE LAS HUELLAS


3º HUELLAS DE UN FAMOSO


Cada artículo aporta diferentes aspectos sobre la información que nos aportan las icnitas, siendo la parte descriptiva una de las más importantes, y con esos datos aplicándola a la identificación o la función. Pero aunque yo no haya hablado sobre ello las icnitas pueden proporcionar mucha más información, como por ejemplo el ambiente en el que se formaron, siendo así una fuente de datos paleoecológicos muy importante. Aquí os dejo dos artículos que relacionan las huellas fósiles con la paleoecología, uno perteneciente al Pérmico y otro al Cretácico:

Los estudios de campo y de laboratorio en la piedraarenisca de Coconino huellas (Pérmico) vertebrados y sus implicacionespaleoecológicos.

Huellas fósiles del Grupo de Dakota (Cretácico) John MartinReservoir, de Condado de Bent, Colorado: Nuevos conocimientos sobre lapaleoecología de la Autopista del dinosaurio.

Bien a partir de aquí seré breve, mi elección en cuanto a las huellas, es porque aunque no sea un fanático de la paleontología es un tema que me interesa y que es muy importante a la hora de hacer casi cualquier estudio geológico. Dentro del registro fósil la icnitas son un gran y amplio campo en que desarrollar investigaciones. ¿Y os preguntareis? ¿Por qué eligió las icnitas y no otro fósil como fémures? Pues porque hay una gran abundancia (lo que lo hace fácil para encontrar artículos interesantes) y porque es uno de mis restos fósiles preferidos, en concreto desarrolle el gusto por los icnofósiles a partir de las bioturbaciones (se entenderá más abajo).

Asi que queridos amigos hasta aquí mis entradas en el blog, y para despedirnos una bonita foto, que la disfrutéis y hasta siempre.


Yo en primero en el laboratorio en primero de carrera abrazando un bloque con bioturbaciones (Asignatura: principios de geología I). 

jueves, 9 de junio de 2016

Conociendo a los artrópodos

Hace unos meses, empezaba a escribir mi primer blog sobre paleontología. La primera impresión es que sería algo laborioso, y de hecho lo fue: buscar artículos, traducirlos, estructurar las ideas... Sin embargo, lo más importante es encontrar un tema que te guste, que te llame la atención, del que no te aburras escribiendo. Así fue como decidí hablar de los artrópodos, esos bichos que están por todas  partes, incluso en nuestros hogares.


Todo tiene un principio...


Para introducirnos en el mundo de los artrópodos, y más concretamente en el de los insectos, empezamos  por una breve descripción de su historia evolutiva, marcada por extinciones masivas, la llegada de las plantas al mundo terrestre y la aparición de los principales clados (lepidópteros, coleópteros, himenópteros y dípteros).  
Fig. 1. Principales clados

A continuación, hablamos sobre su diversificación desde dos puntos de vista totalmente opuestos: Filogenia (cambios rápidos) contra Registro fósil (diversificación constante). Mi conclusión fue que su diversificación tiene un poco de ambas: adaptación rápida y estructuras constantes.

En mi segundo blog, estudiamos la relación entre las angiospermas y la diversificación de los fitófagos, concluyendo que no fueron muy relevantes en su diversificación apoyándonos en el ejemplo de dimorfismo sexual de las cochinillas, donde la hembra se alimentaba de coníferas y gimnospermas debido a su carencia de alas.


Fig. 2. Cochinilla hembra (izqda.) y macho (dcha)


...Y un final


Por último, hice el tercer blog porque me gustó la idea de que estos bichos se adaptaran a todos los nichos, incluso a los que creamos los humanos, pasando de oscuras cuevas a nuestros hogares actuales.
Fig.3. Cueva 


Fig. 4. Casa ocupada


Y como vemos, el cambio no siempre es mejor.

Unas últimas palabras


Antes de poner el punto final, me gustaría deciros que la idea del blog asusta un poco al principio, pero veréis que no es para tanto, y como os he dicho y han dicho muchos compañeros antes que yo, lo más importante es encontrar un tema que te atraiga y del que te interese conocer información que antes no sabías y poder transmitírsela a los demás.

miércoles, 8 de junio de 2016

Todos los caminos llevan a los museos

Os preguntaréis qué relación hay entre mis anteriores entradas en el blog aparte de que todas están situadas en México (recordemos):


Pues bien, he querido unir las tres entradas del blog a través de otro artículo más: http://historia.bio.ucm.es/rsehn/cont/publis/boletines/298.pdf

En este artículo se explica la importancia en México de los llamados “Museos Comunitarios” y los pasos a seguir para incluir una nueva colección en ellos. Los Museos Comunitarios fueron creados en 1983 como respuesta a la necesidad de  cuidar y preservar el patrimonio cultural y natural de las comunidades (siguiente subdivisión administrativa a un municipio). Son así, una importante herramienta educativa para la población de las pequeñas comunidades. Se explica el caso práctico de los restos de invertebrados marinos en la Formación San Juan de Raya, al SE del estado de Puebla  (Figura 1).


Figura 1. Mapa de situación del estado de Puebla, en México.


Los Museos Comunitarios son en mi opinión un ejemplo del objetivo final de cualquier investigación, que la información llegue al público en general, en otras palabras, la divulgación.
Además, lo bueno de los museos es que en ellos cabe todo tipo de información y absolutamente la totalidad de los resultados, por muy complejos que puedan parecer en un principio, pueden adaptarse a un público popular y no experto en el tema. Por ejemplo, las conclusiones recogidas en el artículo descrito en la tercera entrada del blog (dieta de los équidos), puede simplificarse sin necesidad de contar los tipos de metabolismo fotosintético de las plantas pero si haciendo hincapié en que comían distinto tipo de plantas. Y de la misma manera, mostrando además la amplitud de ramas de la paleontología, sería muy educativo y entretenido mostrar hallazgos de nuevas especies o reclasificaciones de ya existentes.
En Rojas Zúñiga, A. y Gío Argáez, F.R. (2016), también se hace referencia a la importancia de un marco jurídico que ampare los hallazgos fósiles. Creo básica la existencia de leyes y artículos constitucionales que velen por la conservación y exposición casi “obligatoria” en museos adaptados para todos los públicos.
En conclusión solo puedo decir para despedirme…¡id a los museos que todo se ve más fácil! (Figura 2).


Figura 2. Grupos de escolares en museos (Google).


martes, 7 de junio de 2016

Si no lo veo, no lo creo.


Hemos llegado ya al final de esta aventura a través de la Paleontología más basal, esa Paleontología que da respuesta a todo, o a casi todo, desde explicaciones moleculares. He intentado plasmar las explicaciones a diferentes temas, basándome en esas moléculas en las que se basa TODA la vida que conocemos hoy día, y en las que naturalmente, se basó la vida del pasado.


Me ha parecido especialmente interesante darle este enfoque a mis publicaciones, ya que en muchas ocasiones, solamente damos importancia a lo que vemos con nuestros propios ojos, y menospreciamos aquello que no podemos ver, ni palpar. Sin embargo, hemos visto cómo, desde un mundo incluso más basal que las propias células, hemos podido dar explicación de una forma fiable, a bastantes aspecto diferentes relacionados con la Paleontología.


Es por esto, que en  esta última entrada recopilatoria, tengo la intención de englobar mis publicaciones en relación a una temática determinada, y me gustaría hacer una síntesis a cerca de las cuatro entradas que he realizado a lo largo de este cuatrimestre, ya que los artículos no los he ido eligiendo al azar, sino que mi objetivo era poder plasmar finalmente el creciente y progresivo desarrollo y aplicación de técnicas moleculares y nanométricas, especialmente dirigidas al estudio de aspectos paleontológicos.


He pasado por....; intentar resolver ciertos conflictos filogenéticos basales del árbol de la vida (clic aquí); por intentar entender el crecimiento biomineral calcáreo de conchas y caparazones de organismos mediante técnicas de difracción de electrones de retrodispersión (clic aquí); por intentar comprender la importancia del estudio de los viroides y poder establecerlos como entidades biológicas basales (clic aquí); y por intentar dar respuesta a cuestiones anatómicas que se nos plantean a cerca de las aves desde un punto de vista molecular (clic aquí).


1.      Bipartidismo filogenético: así fue el título con el que me estrené en este blog, y en el que mostraba dos puntos de vista aparentemente interrelacionados, pero que en muchas ocasiones chocaban. Por una parte estaba la explicación molecular para establecer filogenias (basándose en estudios del ADN), y por otra, estaba las explicaciones más tradicionales (desde Darwin con su teoría de la evolución) para establecer filogenias en base a los aspectos más visibles, es decir, estableciendo relaciones de parentesco físico y de comportamiento entre diferentes especies.

2.      ¿Una nueva herramienta para la Paleontología?: a principios de Abril, mi segunda entrada en el este blog, estuvo principalmente encaminada a ver cómo se van incorporando nuevos métodos de estudio a la Paleontología, permitiéndonos en este caso (mediante la difracción de electrones de retrodispersión), conocer más a fondo…desde la estructura de las conchas de diferentes invertebrados marinos, hasta sabes cómo era la visión de los Trilobites.

3.      ¿Los viroides son el origen de nuestro ADN?: sinceramente, ésta fue una de las estradas que más me llamó la atención, ya que me pareció bastante sorprendente cómo unas entidades tan minúsculas, tan insignificantes, y tan poco estudiadas como son los viroides, adquirieron un papel importante cuando se los estableció como un posible antepasado común universal.


4.      ¿Dónde está el penoré de las aves?: esta fue mi última entrada en este blog, en la  que intenté, de nuevo, sin salirme demasiado de la temática, plasmar como diferentes hormonas y proteínas actúan conjugadamente, para retrasar o acelerar el crecimiento de unos huesos u otros, como es el caso del peroné de las aves.


También, he de destacar que los sorprendentes avances en este campo de la Paleontología, han estado principalmente vinculados al desarrollo que ha experimentado la Bioquímica en las últimas décadas. Esta Bioquímica ha permitido a los paleontólogos abordar dos grandes aspectos, que son:

-          Recuperar las secuencias de ADN fósil.

-          Conocer el papel de diferentes proteínas fósiles, mediante métodos inmunológicos.


Es por esto, que finalmente he de destacar que la Paleontología se ha abierto y se está abriendo muchos nuevos caminos para abordar grandes problemas desde aspectos microscópicos y moleculares, permitiéndonos avanzar cada vez más en la compresión de la vida del pasado, y que ha ido evolucionando de forma imparable, hasta nuestro actual presente.


Y bueno…. Hasta aquí mi paso por este Blog. Hasta la vista.

lunes, 6 de junio de 2016

¡ARAÑAS!

A algunos les parecen seres horribles y a otros seres increíbles pero... ¿cuánto sabes de ellos?, ¿alguien sabe cuándo comenzó la gran diversificación de dicho orden (araneae)?
Las arañas pertenecen a la clase arácnida (arachnida). Se tiende a pensar que todos los arácnidos son arañas; pero la realidad es que los arácnidos incluyen también a las garrapatas, los escorpiones y los ácaros. Además, no son insectos, ya que estos son otra clase de artrópodos.
En cuanto a su diversificación es aún algo controvertida ya que no se tiene una cronología exacta de la secuencia de aparición de los caracteres que definen a un arácnido como araña; pero se data del periodo Carbonífero (hace unos 315 m.a.).

Un articulo publicado el 30 de marzo de este año, 2016, en Proceedings of the Royal Society B (volumen 283, publicación 1827) arroja algo de luz sobre los orígenes de las arañas:


Almost a spider: a 305-million-year-old fossil arachnid and spider origins.


En dicho articulo se estudian características de las primeras arañas y su evolución a partir de la descripción de una nueva especie de arácnido del Carbonífero superior (Estefaniense, 305-299 m.a.) que posee caracteres de las arañas, pero no posee todos los necesarios para poderla clasificar dentro de ellas.
Este fósil casi completo del arácnido se encontró en una concreción de siderita en unos depósitos en Montceau-les-Mines en Francia y ha sido nombrado como Idmonarachne brasieri (Garwood et al., 2016). (Imagen 1.1 y 1.2)

Imagen 1.1. a) y b) Idmonarachne brasieri en seco y bajo ángulo de luz. c) y d) Idmonarachne brasieri en alcohol que nos permite distinguir mejor algunas partes. Escala: las barras miden 1mm.

Imagen 1.2. e) Dibujo de Idmonarachne brasieri correspondiente a a) y c); f) Dibujo de Idmonarachne brasieri correspondiente a b) y d). Escala: las barras miden 1mm.


En el fósil se puede observar que el opistosoma (o abdomen) se dobla en un ángulo casi recto con el prosoma (o cefalotórax), que a su vez está comprimido lateralmente. Lo que no se observa es el detalle de los ojos.

La conservación del fósil en la siderita es en 3D lo que implica que se preservan pequeños detalles anatómicos que pueden ser estudiados.
Para ello, se utiliza la tomografía computarizada, que mediante la microscopía tomográfica de rayos x de fuente sincrotrón de la concreción de siderita que contiene el fósil, recrea a nuestro pequeño arácnido en un ordenador en 3D, haciendo más fácil su estudio en detalle. Es una nueva técnica de tomografía que se usa en fósiles. (Imagen 2)

Imagen 2. a) Prosoma en vista anterior, y opistosoma ventral de la muestra, b) Prosoma en vista posterior, y opistosoma dorsal de la muestra, c) Vista ventral del prosoma, d)-k) Escaneos de sincotrón: [ d) y e) Las puntas de los pedipalpos, f) Quelíceros aislados en detalle, g) Vista lateral de opistosoma ventral, h), i) y j) Imagenes de corte del opistosoma en sección tranversal, posterior derecha e inferior ventral respectivamente, k) Vista ventral del opistosoma].


A pesar de toda estas técnicas tecnológicas es complicado su estudio debido a que nuestro pequeño arácnido sufrió una distorsión post-mortem que alteró un poco su forma original en algunas zonas de su cuerpo.

En cuanto a su análisis cladístico y donde clasificar esta nueva especie... Como ya hemos dicho anteriormente al realizar el estudio anatómico se han encontrado elementos que ya concuerdan con el orden de las arañas y otras que no, por lo que no se puede clasificar dentro de ese grupo pero tampoco concuerdan con la de ningún otro de ese clado. Lo único sacado en claro, es que pertenece al clado de los Tetrapulmonata (Shultz, 1990), así pues, se la ha colocado como un grupo hermano de Araneae y Uraraneida (Selden & Shear, 2008). (Imagen 3)

Imagen 3. Análisis cladísticos de Idmonarachne brasieri.

Para acabar, aquí os dejo una reconstrucción de como pudo ser Idmonarachne brasieri cuando aún podía corretear por ahí... (Imagen 4)

Imagen 4. Reconstrucción de Idmonarachne brasieri.

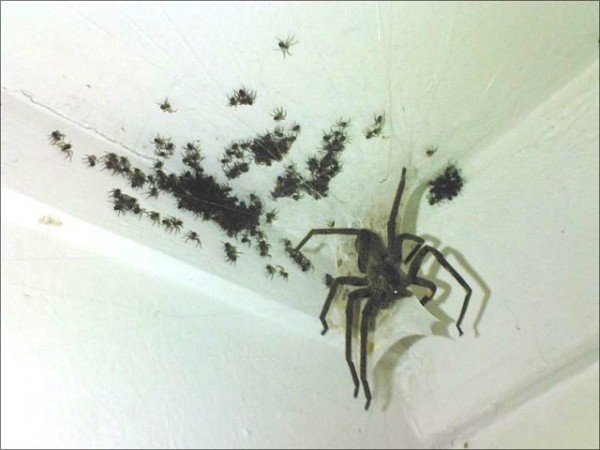
Una lástima no poder observar en el fósil como fueron sus ojos... ¿os imagináis que fuesen como los de esta pequeña?:


Referencias:

-Russell J. Garwood, Jason A. Dunlop, Paul A. Selden, Alan R. T. Spencer, Robert C. Atwood, Nghia T. Vo & Michael Drakopoulos (2016) Almost a spider: a 305-million-year-old fossil arachnid and spider origins.  Proceedings of the Royal Society B (volumen 283, publicación 1827).

-Selden, P.A.; Shear, W.A. & Sutton, M.D. (2008) Fossil evidence for the origin of spider spinnerets, and a proposed arachnid order, Proceedings of the National Academy of Sciences 105 (52): 20781–20785.

-Shultz, Jeffrey W. (1990) Evolutionary morphology and phylogeny of Arachnida. Cladistics 6 (1): 1–38.


Última parada: Paleozoico

Bueno queridos lectores, llegamos al final de nuestro viaje al Paleozoico que nos llevó desde los inicios del Cámbrico, pasando por el Devónico y Carbonífero, y donde hemos visto parte de la fauna de esta era. 


Vamos a repasar los tres blogs que hemos visto:


Flota, flota, pequeño cefalópodo

Vimos el análisis de la estructura de las conchas de tres especies de ammonites  (Fidelites clariondi, Diallagites lenticulifer y Goniatites multiliratu) del Devónico y el Carbonífero, y se analizaron los datos gracias a la tecnología actual y a modelos en tres dimensiones (Naglik et al, 2015), de esta manera se calculó la masa y el volumen de estas hermosas criaturas.
También calcularon los centros de masas y de flotabilidad, teniendo en cuenta los modelos, la masa y el volumen, para lo cual tuvieron en cuenta los estudios de Tajika (2014).

A continuación, vimos que se tomaron más medidas aún, como la longitud de la cámara del cuerpo, la orientación de la apertura y la estabilidad relativa; (aunque no lo creáis, todos estos datos son necesarios para comparar la flotabilidad).

¿Qué resultado obtuvieron?, mientras más larga sea la cámara del cuerpo, peor estabilidad tendrán, lo cual afectaría notoriamente la vida de estos seres. También concluyeron que estas cámaras no solo tendrían que tener aire para mantener la neutralidad a la hora de flotar, sino que además, deberían tener algún líquido cameral (Tajika et al. 2014).

Sin más dilación, vimos una conclusión muy simple: las cámaras con cuerpos más alargados, con pequeñas aperturas y baja estabilidad, tendrían mejores movimientos en la vertical; mientras que los que tengan cámaras mas cortas con alta estabilidad y mayores aperturas, serian mejores nadadores.


Trilobites depredadores

Aquí observamos como unos seres que parecían inofensivos, realmente eran unos grandes depredadores en aquellos tiempos, y esto ayuda a entender el ecosistema y establecer los patrones macroevolutivos del pasado.

Se han encontrado restos de caparazones en coprolitos, caparazones rotos por mordeduras, e incluso, un pez dentro de otro pez. Además de una perfecta conservación de Ottoia (Conway Morris, 1977)(fig.1) y Sidneyia (Bruton, 1981)(fig.2). Solo con estos ejemplos se entiende que hay una predación selectiva.


Para entender estas relaciones depredador-presa, se dispone del registro icnofósil, concretamente las más estudiadas que son trazas de reposo (Rusophycus), halladas en la formación Davis, al sureste de Missouri, donde hay una gran cantidad de trilobites de distintas familias.

 Recordemos que tenían en cuenta tres cosas para evitar confusiones, y asegurarse que los icnofósiles observados eran de depredación:

1. Las intersecciones entre los restos se encuentran con más frecuencia que los esperados al azar.

2. Tiene que haber una correlación entre el tamaño del cuerpo del depredador y la presa.

3. El tamaño de la presa está seleccionado por el depredador.

De esta forma, en la zona estudiada, se observó que las marcas de excavaciones vermiformes son más abundantes que las marcas de reposo (recordemos que los trilobites se alimentaban de esos organismos con trazas vermiformes).

Tras el análisis de la zona que tiene marcas de intersección entre ambos tipos de marcas, se dedujo no solo que los trilobites eran grandes depredadores, sino que el ángulo de ataque tenía una gran importancia para tener éxito en la caza.


Ventana a Gondwana

En este blog nos centramos en la biodiversidad de Gondwana durante el Cámbrico, en lo que es actualmente el sur de Australia, concretamente en Cangaroo Island. Aquí vimos un tipo de yacimiento llamado Emu Bay Shale (fig.3), con una gran cantidad de fósiles distintos, desde seres con conchas a trilobites.

Emu bay Shale fue depositado rápidamente cerca de bordes tectónicos activos, y forma una cuenca que es víctima de las fluctuaciones de oxígeno (Gehling et al. 2011).

fig.3. Ubicación de Emu Bay Shale.


La mayor parte de las especies son artrópodos primarios, además de otras como esponjas, moluscos, braquiópodos, gusanos y en menor medida, anélidos.

Tras el análisis de las distintas especies, se vio que la estructura geológica era muy similas a la de Burgess Shale. Destacar que se vio poca diversidad de organismos autóctonos y escasez de bioturbaciones, lo cual se puede explicar con la escasez de oxígeno.

De todo esto se concluyó que Emu Bay Shale presenta unos fósiles excelentes para estudiar la paleoecología, evolución y paleobiogeografía de la zona.


Hasta aquí llega nuestro último blog, donde hemos entendido un poco más la flotabilidad de distintos ammonites, los mecanismos depredadores de los trilobites y su relación con el entorno, y finalmente, un excelente ejemplo de yacimiento con varias especies distintas del Paleozoico.
Espero que hayáis disfrutado y aprendido algo nuevo del pasado de nuestro planeta. 

Un saludo, y hasta la próxima.


Bibliografía


  • Bruton, D.L., 1981. The arthropod Sidneyia inexpectans, Middle Cambrian, Burgess Shale, British Columbia. Philos. Trans. R. Soc. Lond. Ser. B Biol. Sci. 619-65.
  • Conway Morris, S., 1977. Fossil priapulid worms. Paleontological Association.
  •    Gehling, J.G., Jago, J.B., Paterson, J.R., García-Bellido, D.C. & Edgecome, G.D. 2011. The geological context of the Lower Cambrian (series 2) Emu Bay Shale Lagerstätte and adjacent stratigraphic units, Kangaroo Island, South Australia. Australian Journal of Earth Sciences, 58, 243-257.
  • Naglik, C., Tajika, A.Chamberlain, J. & Klug, C. 2015. Ammonoid locomotion. In Klug, C., Korn, D., De Baets, K., kurta,I. &Mapes, R.H. (eds): Ammonoid Paleobiology, Volume 1, From Anatomy to Ecology. Springer, Dordrecht.
  • Tajika, A., Naglik, C., Morimoto, N., Pascual-Cebrain, E., Hennhöfer, D. & Klug, C. 2014. Empirical 3D-model of the conch of the Middle Jurassic ammonite microconch Normannites: its buoyancy, the physical effects of its mature modifications and speculations on their function. Historical Biology: An international journal of paleobiology, 1-11.