El apuesto Lagarto Juancho de los años 60, el
sheriff Rango o Louis el trompetista, son algunos de los individuos más famosos
de reptiles con capacidad de desplazamiento bípedo. De hecho, ninguno de ellos
caminaba a cuatro patas. Si no, uno no podría colocarse el sombrero, otro no
podría disparar su revólver, y el problema de Louis sería evidente.
Obviamente, esos grandes personajes son fruto
de la imaginación de algún artista, con el fin de entretener. Sin embargo, sí
existen en la naturaleza algunos lagartos que, esta vez fruto de la evolución,
son capaces de perseguir sus sueños al igual que los anteriores, corriendo de
forma bípeda. No se conoce exactamente cuándo se puso de moda esta capacidad
entre los lagartos, pero sí sabemos que en Corea del Sur, hace 110 millones de
años, ya corrían a dos patas, aunque fuese para salvar sus vidas.
La locomoción de un lagarto está muy
influenciada por la forma, la longitud de su cuerpo y los diferentes hábitats (Rocha-Barbosa et al., 2008). Se
han reconocido cuatro formas de andar: una marcha cuadrúpeda a baja velocidad,
una marcha rápida cuadrúpeda, una carrera diagonal a altas velocidades y la
carrera bípeda (Snyder, 1952). Se sabe que hay más de 50 especies que tienen capacidad de
locomoción bípeda (Aerts et al., 2003).
Aunque algunos lagartos parecen correr bípedos
sin aceleración (Aerts et al., 2003), la bipedación generalmente ocurre como consecuencia de la aceleración
en un lagarto con miembros posteriores que son significativamente más largos
que las extremidades anteriores, moviendo el centro de masas y la fuerza de
rotación en las articulaciones de la cadera (Clemente et al., 2008; Clemente, 2014). Cuando los lagartos se mueven a
velocidades relativamente bajas, mantienen una postura con las extremidades
extendidas, con los pies plantígrados orientados lateralmente (Brinkman, 1981). Con este patrón
locomotor, las patas delanteras se colocan debajo del cuerpo con la cabeza hacia
arriba, aumentando la posibilidad de dejar huellas de manos en lugar de pies. Unas
extremidades traseras largas, unas extremidades anteriores cortas, una pelvis
estrecha y una cola larga podrían ayudar a la locomoción bípeda en los
lagartos, principalmente a través de una mayor longitud de zancada (Snyder, 1962).


Sobre los fósiles de huellas de lagartos
Aunque los lagartos son los reptiles modernos con
mayor número de especies (más de 5,800 especies existentes) y con una amplia
distribución geográfica (Vitt & Caldwell, 2013), su registro fósil es relativamente pobre, tanto en
esqueletos como en rastros. Es debido, en general, a que sus cuerpos pequeños
requieren un ambiente deposicional adecuado para la preservación. Algunos
materiales esqueléticos de Iguania, Gekkota, Scincoidea, Lacertoidea y
Anguimorpha del Cretácico temprano (Evans, 2003), se han encontrado en Asia, Europa y América
del Norte. Desafortunadamente, los registros de la huella fósil atribuibles a
los lagartos son aún más raros debido al peso corporal ligero que normalmente
tienen los lagartos.
En una cantera abandonada junto a la central
eléctrica de Hadog, en la provincia de Gyegongsang del Sur (Corea del Sur), se
han descubierto los senderos que dejaron lagartos de los grupos corona más antiguos
conocidos en todo el mundo que muestran la locomoción bípeda. Estas huellas de
la Formación Hasandong (Cretácico Inferior), están muy bien conservadas permiten la identificación detallada de la
anatomía del pie. Muchos lagartos modernos pueden correr de forma bípeda en la
tierra e incluso en la superficie del agua (Snyder, 1949). Sin embargo, no está claro cuándo desarrollaron
esta capacidad. Por lo tanto, este descubrimiento es altamente significativo, ya
que es la primera evidencia directa de locomoción bípeda en lagartos fósiles,
lo que sugiere que el bipedismo del lagarto está profundamente arraigado a la
filogenia de la evolución de los lagartos.
Descripción de los fósiles encontrados
La losa contiene 29 rastros de lagarto conservadas
como depresiones (Fig. 1). Aunque son poco profundas y de tamaño muy pequeño,
la calidad de las impresiones de la anatomía en algunos rastros es lo
suficientemente buena como para proporcionar descripciones detalladas.
 |
| Fig. 1: Fotografía y dibujo de los rastros de lagarto en el bloque. |
En función de la morfología de la pista, se
observan dos tipos diferentes de rastros en esta losa:
- Un tipo tiene huellas curvas de dígitos, que aumentan
progresivamente en longitud desde los dígitos I a IV, y un dígito V más pequeño
que está claramente separado de los otros dígitos por un gran ángulo
interdigital y orientado más lateralmente. Corresponde a huellas de pies.
- El otro tipo es mesaxónico, teniendo un dígito
más largo (III) en comparación con los otros (dígitos I, II, IV, V). Esta vez
son huellas de manos.
La longitud promedio de manos y pies es de
19,18 mm y 22,29 mm, respectivamente. Aunque los conjuntos de manos y pies no
se imprimen regularmente, las pistas visibles en la losa muestran claramente
los patrones de locomoción sin senderos de cola.
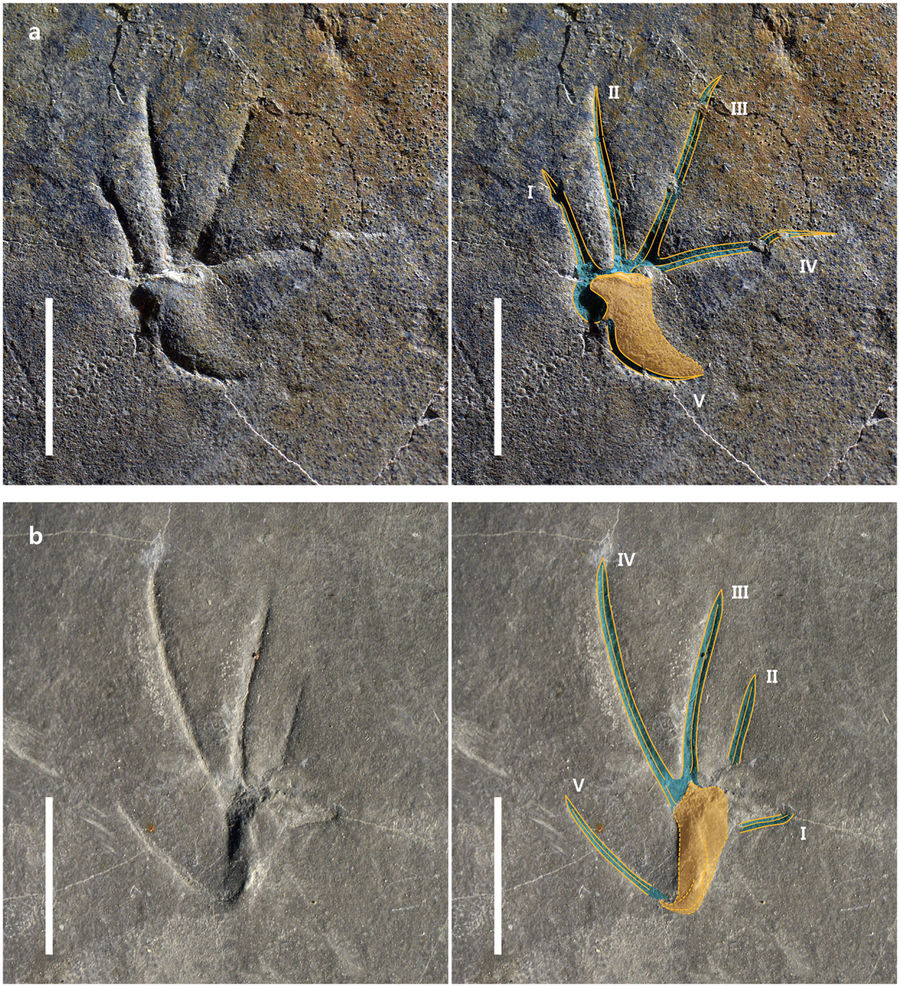
De los cuatro rastros de manos, la pista B1 (Fig.
2a) está mejor conservada que las otras pistas de los rastros A y B. Tiene
cinco dígitos que parecen casi rectos, excepto el dígito V, que está
fuertemente curvado medialmente. Todas las impresiones de los dígitos son muy
estrechas (menos de 1 mm). Las impresiones de dígito I y II están orientadas
anteromedialmente, mientras que las del dígito III están orientadas anterolateralmente,
el dígito IV lateralmente y el dígito V, posterolateralmente. Los extremos
distales del dígito III y IV muestran marcas de garras ligeramente curvadas. La
depresión metacarpiana es pequeña y ligeramente elevada en comparación con las
impresiones digitales.
 |
Fig. 2: Pistas de manos y pies de Sauripes hadongensis, n. Ichnogen., n. Ichnosp.
(a) Fotografía ampliada y dibujo de una huella de mano (B1). (b) Una huella de pie (A6). Las barras de escala equivalen a 1 cm. |
Las huellas de los pies son plantígradas,
pentadáctilas y claramente ectaxónicas (Figs. 2b, 3). La impresión del dígito I
es la más corta y la de los dígitos II, III y IV aumentan progresivamente en
longitud. El dígito V es más corto que III y IV, pero más largo que I y II. Su
impresión está claramente separada de otras impresiones y está conectada a la
parte posterior de la línea del talón. La impresión del dígito I está orientada
medialmente (Fig. 2b) o anteromedialmente (Fig. 3a, b). La impresión metatarsal
es alargada y se ubica detrás de los dígitos I a IV.
 |
Fig. 3: Pistas de pies de Sauripes hadongensis, n. Ichnogen., n. Ichnosp.
(a) Fotografía ampliada y dibujo de una huella de pie (A3). (b) Una huella de pie (B8). (c) Una huella de pie (B9). Las barras de escala equivalen a 1 cm. |
Veintiocho pistas comprenden cuatro rastros, los
cuales tienen aproximadamente dos direcciones (Fig. 1). Los rastros A y B se
superponen ligeramente en la dirección opuesta, lo que indica un corto
intervalo de tiempo entre las dos formaciones. Las huellas de pies son
predominantes en todas las vías, por lo que no es fácil reconocer un patrón de
marcha cuadrúpedo normal, que comprendería de huellas de manos y pies. El
rastro A es el más largo y mejor conservado entre los cuatro, que comprende una
mano derecha incompleta y nueve impresiones de pies. La longitud promedio del
paso de estos pies es de 79.18 mm, mientras que la longitud de paso promedio es
de 47.82 mm.
Sauripes hadongensis
Toda esa descripción está muy bien, pero no
sirve de nada si no se interpreta lo que se ve y se formulan hipótesis acerca
de quién hizo los rastros, cómo, por qué, etc. Hemos hablado al principio de
los tipos de locomoción en lagartos y sabemos que el principal es cuadrúpedo.
Por ello explicaremos ahora por qué éste es bípedo.
Para empezar, Sauripes hadongensis muestra más huellas de pies, que se caracterizan por
largos pasos, una gran angulación del ritmo y huellas digitales en todas las
secuencias de locomoción. Además, tiene las impresiones de los dedos más marcadas que las de las
suelas, con una articulación metatarsofalángica claramente profunda en los
dígitos II, III y IV, detrás de la cual el sedimento está ligeramente hacia
arriba, lo que indica que corrieron principalmente sobre los dígitos, en lugar
de tocar el sustrato con toda la superficie plantar (Fig. 3).
A velocidades rápidas, el eje largo del cuarto
dedo del pie es casi paralelo a la dirección del movimiento, generando una gran
proporción de las fuerzas (Fieler & Jayne 1998), como se muestra claramente en los rastros A y B
(Fig. 1). Dos rastros muestran la evidencia de una velocidad creciente,
basada en la longitud de la zancada y en la angulación de los pasos. Se ve que
el ancho del rastro se estrecha en A y B porque las extremidades posteriores se
enderezan más cuando alcanzan una postura bípeda y una posición más alta de la
cadera (Irschick & Jayne, 1999; Urban, 1965) (Fig. 4).
 |
| Fig. 4: Una reconstrucción de un lagarto bípedo corriendo por el sustrato, basado en el rastro A. Abreviaturas: SVL, longitud desde el hocico a la cloaca; PL, longitud del pie. |
En el rastro B, tres impresiones sucesivas de
manos (B1, B3 y B4) se conservan antes de la transición a la locomoción bípeda.
El lagarto es el único animal vertebrado que comienza con todos los pares de
extremidades y luego pasa a la marcha bípeda por aceleración (Snyder, 1962). La primera
zancada bípeda por aceleración en los lagartos aumenta el ángulo del tronco,
por lo tanto, aumenta la holgura de la extremidad anterior (Irschick & Jayne, 1999). Por lo tanto, la
consideración de toda la evidencia anterior sugiere que Sauripes hadongensis fue hecha por lagartos que se trasladaron a
sus patas traseras durante la locomoción y se volvieron bípedos.
En su mayor parte, la bipedestación se ha
relacionado con la locomoción rápida y la huida de los depredadores (Rocha-Barbosa et al., 2008). La
bipedación en los lagartos puede ser ventajosa para una mejor percepción
ambiental durante la locomoción, al elevar la cabeza y expandir el campo visual.
No es seguro si las pistas de Sauripes
hadongensis se hicieron al escapar de los depredadores o no, pero
curiosamente, se informó de la pista del pterosaurio Pteraichnus koreanensis en el mismo horizonte, en el mismo sitio (Lee et al., 2008).
Algunos pterosaurios probablemente buscaron alimento como animales pequeños y
carroña (Witton & Naish, 2008). La aparición de pistas de Pteraichnus
koreanensis y Sauripes hadongensis
juntas puede implicar que estos dos marcadores tenían una relación antagónica
contemporánea. De ser cierto, la amenaza de la depredación de los pterosaurios
podría haber causado que estos lagartos salgan de los rastros bípedos que se
encuentran en la Formación Hasandong (Fig. 5).
 |
| Fig. 5: Una reconstrucción de un lagarto corriendo bipedalmente, perseguido por el pterosaurio Pteraichnus koreanensis, basado en los rastros (Dibujado por Chuang Zhao). |
¿Exactamente quién creó esos rastros?
La bipedalidad se puede observar en diversas
familias de lagartos existentes filogenéticamente como Lacertoidea, Anguimorpha
e Iguania, particularmente entre las especies que viven en arena, entornos
rocosos o abiertos (Snyder, 1952; Clemente, 2014). El infraorden Gekkota se estableció en los trópicos del
Viejo Mundo al menos a mediados del Cretácico (Daza et al., 2014), y los gekkomorfos basales del
Jurásico Superior ya mostraron una capacidad de locomoción escansorial (Simões, 2017). La
familia Teiidae es nativo de las Américas (Winkler et al., 1990; Krause, 1985). En Asia, aparecieron por primera vez
en el Cretácico superior en Mongolia y China (Gao & Hou, 1996). Los lagartos varánidos irradiaron
de Mongolia durante el Cretácico superior hasta el Cenozoico temprano, y se dispersaron
a casi todos los fragmentos principales de Laurasia y Gondwana (Estes, 1983).
Basado en fósiles y datos moleculares (Jones et al., 2013; Gao & Nessov, 1998; Li et al., 2007; Daza et al., 2016), los
iguanios primitivos existían en Laurasia por el Aptiense/Albiense (125-100 Ma. Cretácico Inferior). Los iguanios
existentes generalmente tienen patas bien desarrolladas y fuertes adecuadas
para la bipedestación (Clemente, 2014). Además, los extintos poliglyphanodonts son conocidos
desde el Cretácico Inferior en Asia (Evans & Manabe, 2008) y se volvieron abundantes en el Cretácico
Superior de Mongolia y China (Gao & Hou, 1996; Sulimski, 1975). Tienen extremidades traseras fuertes y una
morfología esquelética bastante iguaniana. Por lo tanto, en base a la
distribución paleobiogeográfica de las familias facultativas existentes, el
lagarto que produjo las huellas de Sauripes
hadongensis bien podría haber sido un miembro de una familia extinta o
miembros del tallo de Iguania, que estuvo presente en el Cretácico Inferior.
La Formación Hasandong, el entorno geológico
Parece que la Formación Hasandong es de edad
Aptiense hasta principios del Albiense, basándose en datos paleomagnéticos y
radiométricos (Kang & Paik, 2013). La Formación Jinju suprayacente y la Formación Nakdong
subyacente se han fechado de hace 109.9 ± 3.2 millones de años y 127.67 ± 1.3 millones
de años, respectivamente (Lee et al., 2010; Lee et al., 2012). La Formación Hasandong ha producido los fósiles de
cuerpos de vertebrados más abundantes en el Supergrupo de Gyeongsang, parte de
la Cuenca Mesozoica más grande de Gyeongsang, en la Península Coreana. Los
fósiles de vertebrados incluyen tortugas, pterosaurios, cocodrilos y dinosaurios (Lee et al., 2001).
La mayoría de los huesos se presentan como piezas dispersas, rotas y aisladas
que probablemente hayan sufrido una larga exposición aérea, transporte y
dispersión en la llanura de inundación antes del entierro (Paik et al., 2001). Los icnofósiles de
vertebrados previamente descritos de la Formación Hasandong incluyen huellas de
dinosaurios (Lim et al., 1997) y huellas de pterosaurios.
El sitio de las pistas de lagarto es una
cantera abandonada al lado de la planta de energía de Hadong, donde hay
aproximadamente 5000m² de exposición, representando la parte media de la
Formación Hasandong. Los rastros del lagarto se encuentran en el mismo
horizonte que el icnotaxón del pterosaurio, Pteraichnus
koreanensis, que comprende una capa de lutita gris oscuro en la parte media
de la sección. Esta capa también produce huellas de dinosaurios y fósiles de
plantas, presentando sedimentos que se cree que han sido depositados en
pequeños pantanos y/o lagos marginales asociados con llanuras de inundación.
 |
| Información geológica del sitio fósil. (a) Mapa de ubicación del rastro de lagarto del Cretácico Inferior, localizado en la Formación Hasandong, que muestra la posición de las cuencas del Cretácico, incluido el Supergrupo de Gyeongsang (modificado por Lee et al., 2008) 14. (b) Fotografía del afloramiento de la localidad fósil. (c) Sección geológica del sitio que indica el nivel de seguimiento del lagarto asociado con pterosaurio (Pteraichnus koreanensis) y huellas de terópodos, restos de invertebrados y fósiles de plantas. |
REFERENCIAS
- Rocha-Barbosa, O., Loguercio, M. F. C., Velloso, A. L. R. & Bonates, A. C. C. Bipedal locomotion in Tropidurus torquatus (Wied, 1820) and Liolaemus lutzae Mertens, 1938. Braz. J. Biol. 68, 649–655 (2008).
- Snyder, R. C. Quadrupedal and bipedal locomotion of lizards. Copeia 1952, 64–70 (1952).
- Aerts, P., Damme, R. V., D’Aout, K. & Hooydonck, B. V. Bipedalism in lizards: whole-body modelling reveals a possible spandrel. Phil. Trans. R. Soc. Lond. B 358, 1525–1533 (2003).
- Clemente, C. J., Withers, P. C., Thompson, G. & Lloyd, D. Why go bipedal? Locomotion and morphology in Australian agamid lizards. J. Exp. Biol. 211, 2058–2065 (2008).
- Clemente, C. J. The evolution of bipedal running in lizards suggests a consequential origin may be exploited in later lineages. Evolution 68, 2171–2183 (2014).
- Brinkman, D. B. The hind limb step cycle of Iguana and primitive reptiles. J. Zool. 181, 91–103 (1981).
- Snyder, R. C. Adaptations for bipedal locomotion of lizards. Integr. Comp. Biol. 2, 191–203 (1962).
- Vitt, L. J. & Caldwell, J. P. Herpetology: an introductory biology of amphibians and reptiles. 1–776 (Academic Press, 2013).
- Evans, S. E. At the feet of the dinosaurs: the early history and radiation of lizards. Biol. Rev. Camb. Philos. Soc. 78, 513–551 (2003).
- Snyder, R. C. Bipedal locomotion of the lizard Basiliscus basiliscus. Copeia 1949, 129–137 (1949).
- Fieler, C. L. & Jayne, B. C. Effects of speed on the hindlimb kenematics of the lizard Dipsosaurus dorsalis. J. Exp. Biol. 201, 609–622 (1998).
Irschick, D. J. & Jayne, B. C. Comparative
three-dimensional kinematics of the hindlimb for high-speed bipedal and quadrupedal
locomotion of lizards. J. Exp. Biol. 202, 1047–1065
(1999).
Urban, E. K. Quantitative study of locomotion in teiid lizards. Anim. Behav. 13, 513–529 (1965).
Lee, Y.-N., Lee, H.-J., Lu, J. & Kobayashi, Y. New pterosaur tracks from the Hasandong Formation (Lower Cretaceous) of Hadong County, South Korea. Cretaceous Res. 29, 345–353 (2008).
Witton, M. P. & Naish, D. A reappraisal of azhdarchid pterosaur functional morphology and paleoecology. PLoS ONE 3, e2271 (2008).
Daza, J. D., Bauer, A. M. & Snively, E. D. On the fossil record of the Gekkota. Anat. Rec. 297, 433–462 (2014).
Simões, T. R., Caldwell, M. W., Nydam, R. L. & Jiménez-Huidobro, P. Osteology, phylogeny, and functional morphology of two Jurassic lizard species and the early evolution of scansoriality in geckoes. Zool. J. Linn. Soc. 180, 216–241 (2017).
Winkler, D. A., Murry, P. A. & Jacobs, L. L. Early Cretaceous (Comanchean) vertebrates of central Texas. J. Vert. Paleontol. 10, 95–116 (1990).
Krause, L. Fossil record of the family Teiidae. notes on paleobiogeography, current distribution, and habits of the Macroteiids. (Sauria, Scincomorpha, Teiidae). Stud. Neotrop. Fauna E. 20, 175–188 (1985).
Gao, K. & Hou, L. Systematics and taxonomic diversity of squamates from the Upper Cretaceous Djadochta Formation, Bayan Mandahu, Gobi Desert, People’s Republic of China. Can. J. Earth Sci. 33, 578–598 (1996).
Estes, R. In Advances in herpetology and evolutionary biology: essays in honor of Ernest E. Williams (eds Rhodin, A. G. & Miyata, K.) 365–398 (Museum of Comparative Zoology, Harvard University, 1983).
Jones, M. E. et al. Integration of molecules and
new fossils supports a Triassic origin for Lepidosauria (lizards, snakes, and
tuatara). BMC Evol. Biol. 13, 1–1 (2013).
Gao, K. & Nessov, L. A. Early Cretaceous squamates from the Kyzylkum Desert, Uzbekistan. Neues Jahrb. Geol. Palaontol. Abh.207, 289–309 (1998).
Li, P., Gao, K., Hou, L. & Xu, X. A gliding lizard from the Early Cretaceous of China. P. Natl. Acad. Sci. USA 104, 5507–5509 (2007).
Daza, J. D., Stanley, E. L., Wagner, P., Bauer, A. M. & Grimaldi, D. A. Mid-Cretaceous amber fossils illuminate the past diversity of tropical lizards. Sci. Adv. 2, e1501080 (2016).
Evans, S. E. & Manabe, M. An early herbivorous lizard from the Lower Cretaceous of Japan. Palaeontology 51, 487–498 (2008).
Sulimski, A. M. and Polyglyphanodontidae (Sauria) from the Late Cretaceous of Mongolia. Palaeontol. Pol. 33, 25–102 (1975).
Kang, H. C. & Paik, I. S. Review on the geological ages
of the formations in the Gyeongsang Basin, Korea. J. Geol. Soc. Korea 49,
17–29 (2013).
Lee, T. H., Park, K. H., Chun, J. H. & Yi, K. SHRIMP U-Pb zircon ages of the Jinju Formation and Silla Conglomerate, Gyeongsang Basin. J. Petrol. Soc. Korea 19, 89–101 (2010).
Lee, T. H., Park, K. H. & Yi, K. SHRIMP U-Pb detrital zircon ages of the Nakdong Formation and the Ulleynsan Formation, Gyeongsang Basin. 2012 Fall Joint Annual Conference of the Geological Societies in Korea 134 (2012).
Lee, Y.-N., Yu, K.-M. & Wood, C. B. A review of
vertebrate faunas from the Gyeongsang Supergroup (Cretaceous) in South
Korea. Palaeogeogr. Palaeocl. 165, 357–373 (2001).
- Paik, I. S. et
al. Palaeoenvironments and taphonomic preservation of dinosaur bone-bearing
deposits in the Lower Cretaceous Hasandong Formation, Korea. Cretaceous
Res. 22, 627–642 (2001).
Lim, S. K., Yang, S.-Y., Baek, K.-S. & Kim, T.-W.
Cretaceous dinosaur footprints found in the bottom surface of the Gawha River,
South Gyeongsang Province. 13th Annual Meeting of Paleontological
Society of Korea 16 (1997).