Mostrando entradas con la etiqueta dromeosáuridos. Mostrar todas las entradas

domingo, 1 de mayo de 2016

DEJANDO HUELLA.

Artículo original: Lida Xing Martin G. Lockley, Daniel Marty,  Hendrik Klein,  Geng Yang,  Jianping Zhang,  Guangzhao Peng, Yong Ye, W. Scott Persons IV,  Xianya Yin & Ting Xu. 2016. A diverse saurischian (theropodesauropod) dominated footprint
assemblage from the Lower Cretaceous Jiaguan Formation in the
Sichuan Basin, southwestern China: A new ornithischian ichnotaxon,
pterosaur tracks and an unusualsauropod walking pattern. Cretaceous Research, 60:176-193. 

Hola de nuevo amigos! Como os habéis podido dar cuenta, mis dos entradas anteriores se han centrado en la lomoción de los dinosaurios, y en esta nueva entrada también os voy a hablar de ello. Con cada entrada intento atraeros al apasionante mundo de la icnología, y transmitiros lo asombroso que es saber qué organismo originó la huella y cómo era su forma de andar. Intento no ser pesada pero no puedo evitar dejar de hablar de ellas debido a mi gran afición. Espero que os guste esta nueva entrada, y se os haga entretenida la lectura.

Figura 1. Cuenca de Sichuan.
COMENCEMOS...
Nos adentramos en China. En concreto en la cuenca de Sichuan, conocida también con el nombre de cuenca Púrpura o Roja. Es una de las cuencas más grandes de China, forma parte de la plataforma de Yangtze,  y contiene materiales datados del Mesozoico. En su  margen meridional, donde se encuentra ubicado Shimiaoguo, y se han encontrado con un área de huellas en varios bloques caídos, pertenecientes a la formación Jiaguan (Xing et. al, 2015). 

Figura 2. Mapa que representa la provincia de Sichuan, señalando con una estrella los lugares donde se han encontrado huellas de dinosaurios.

Cada camino de huellas lo numeraron con el prefijo SMG, y fueron realizadas por terópodos, designados con la mayúscula T; D para dromeosáuridos; S para saurópodos; O para ornitópodos; P para pterosaurios (Zhen et.al 1994), (Xing et.al 2013), (Xing et.al 2015). Lo primeron que hicieron fue realizar una tabla con varias columnas donde represetaron cada uno de los bloques, el organismo que las originó (th: terópodos no voladores; Dr: dromeosaurios; Sa: saurópodos; Or; ornitópodos; Pt: pterosaurios), y la relación entre el número de huellas (TS) y el rastro dejado (TWS). 

RECOPILACIÓN DE DATOS.
Tras una intensa y dura recogida de datos, se realizaron una serie de tablas:
  • En la tabla 1, aparecen el número de huellas encontradas y de caminos realizados por cada una de las familias de dinosaurios. 
  • En la tabla 2, reflejaron una serie de medidas tomadas en ornitópodos, terópodos y dromeosaurios. Los datos están en centímetros (cm) y grados (º), excepto ML/MW que son adimensionales. En ella aparecen una serie de abreviaturas que significan lo siguiente: ML: longitud máxima; MW: anchura máxima (distancia medida desde la punta del dígito II al IV; II-IV: ángulo medido entre los dígitos II y IV; PL: longitud del ritmo del paso; SL: longitud de la zancada; PA: ángulo del paso.
  • En la tabla 3, se recogen las medidas (en cm y grados; excepto ML/MW, WAP/P´ML y WAM/M´MW son adimensionales) de los caminos realizados por saurópodos. Las abreviaturas que aparecen son las siguientes: MA: longitud máxima; MW: anchura máxima; R: rotación; PL: longitud del ritmo del paso; SL: longitud de la zancada; PA: ángulo del paso; WAP: anchura de la angulación del pes; WAM: anchura de la angulación del manus.
  • En la tabla 4, se recogen el número total de organismos que realizaron las huellas con sus respectivos porcentajes. Abreviaturas: Or: ornitópodo; Th: terópodo no volador; Bi: pájaro; Sa: saurópodo; Pt: pterosaurio.

EL PRIMER ESTUDIO: HUELLAS DE TERÓPODOS.
Comenzaron analizando las huellas de terópodos encontradas en los 8 bloques, excepto en el bloque 7 que no encontraron ninguna. Han podido identificar 31 pequeñas huellas tridáctilas cuya longitud del pes era de 7-18 cm, y las clasificaron en 7 caminos diferentes catalogadas como T1-T7, gracias a la ayuda de toda la información recopilada en la tabla 2. (Figura 3).
Figura 3.  En el bloque 1 aparecen diferentes impresiones de huellas realizadas por tres grupos diferentes de organismos: terópodos, saurópodos y ornitópodos, siendo los predominantes los terópodos.
Se pudo saber con exactitud que eran de terópodos gracias a la mejor huella conservada, que aparece en la figura 4. En esta huella se aprecia claramente como la longitud del dígito III es la más larga y los dígitos exteriores son casi iguales, el ángulo entre los dígitos II-IV es de 76º (47,56). Por otro lado, las huellas T2-L1, TI4 y T7.L1 se caracterizan por presentar una débil mesaxonomía, es decir, el grado en que el dígito III sobresale hacia delante (Lull, 1904). Gracias a ello, se supo que pertenecían a la familia Eubrontiae, y a los primeros terópodos que vivieron en el Cretácico conocidos como Jialingpus. Por otro lado, con los datos de las velocidades de estos organismos (Alexander, 1976) y las longitudes de sus pasos, es posible saber si estaba caminando, corriendo o trotando. Los resultados obtenidos fueron los siguientes: la velocidad de las huellas T1, T2, T4 y T6 fue de 3,96-6.66 km/h, y las longitud del paso de 1,54-1,75 (Leonardi, 1987), lo que implica que estaba caminando; mientras que T5 tiene un valor más alto y una mayor longitud en el paso, por lo que estaba más cerca del trote.

Figura 4. Huellas de terópodos y pterosaurios. 
Las siguientes características que tienen en común estas huellas les permitieron identificar el organismo que las originó: el dígito II aparece representado como una pequeña impresión situado más próximo al dígito III; el dígito IV es más largo que el III; y el ángulo divergente entre los dígitos III y IV es de 37º, y eran huellas didáctilas. Todo ello les sirvió para saber que se trataban de huellas realizadas por Deinonychosaurian. El icnotaxón Deinonychosaurian comprende cuatro icnogéneros Velociraptorichnus, Dromaeopodus, Dromaeosauripus y Menglopipus, que clasifican a las huellas encontradas en tres clases dependiendo de sus tamaños (Figura 5).
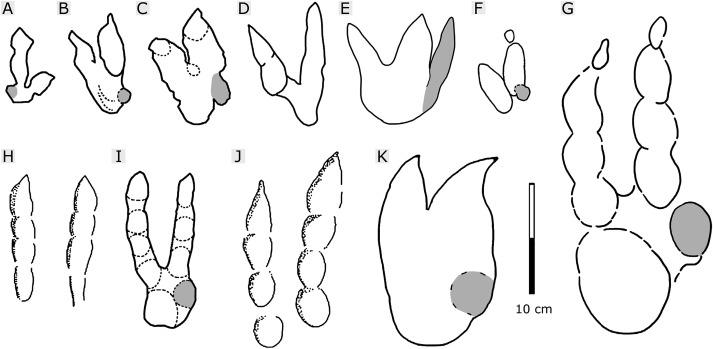
Figura 5. Conjunto de dibujos interpretativos de las distintas huellas realizadas por varios icnotaxones de dromeosaurios: 
A: Menglongipus (Xing et.al 2009); B: Velociraptorichnus from Shandong (Li et.al 2007); C: Velociraptorichnus from Emei (Xing et. al 2009); D: Velociraptorichnus from Mujiaowu (Xing et.al 2015); E: Velociraptorichnus wangi (Xing et.al 2015); F: Velociraptorichnus encontrado en SMG; G: Dromaeopodus shandongensis (Li et.al 2007); H: Dromaeosauripus jinjuensis (Kim et.al 2012); I: Dromaeosauripus yongjingensis (Xing et.al 2013); J: Dromaeosauripus hamanensis (Kim et.al 2008); K: Dromaeosauripus Jishan (Xing et.al 2013).

EL SEGUNDO ESTUDIO: HUELLAS DE SAURÓPODOS.
Como ya he mencionado anteriormente, estas huellas no fueron las únicas que encontraron. Descubrieron un camino de tres huellas muy bien conservadas bastante anchas, que nombraron como SMG-S1-S3, en los bloques 1 (figura 3), bloque 2 (figura 7) , bloque 5 (figura 8 y 9) y bloque 6 (figura 6).
Tanto las huellas SMG-S1 y SMG-S2 tenían una anchura media (WAP/P'ML) de  1.3  la  y 1.2 respectivamente. En cuanto a las impresiones del pes eran más largas que anchas; presentaban un alto grado de heteropodia; y los dígitos del I al IV disminuían de tamaño. Tras analizarlas, se dieron cuenta de que pertenecían al icnogénero Brontopodus (Lockley et.al 1995), (Lockley el.al 2002).

Figura 6. Mapa de huellas encontradas en el Bloque 6. En la imagen real de la derecha aparece un camino de huellas realizado por un dromeosaurio.

Figura 7. Dibujo lineal de un segmento del camino de huellas del Bloque 2 en el que se muestra la traza del pes bien definidos.

Figura 8. Mapa de huellas identificadas en el Bloque 5.


Figura 9.  Conjunto de huellas realizadas por saurópodos encontradas en el bloque 5. 
SMG-S3 muestra muestra un patrón de marcha inusual, debido a que solo conversan las impresiones derechas del manus, y se encuentran rotadas 21º hacia afuera desde el eje del camino de huellas. También se puede observar como el borde distal de la huella RM2 y el borde proximal de RM3 se encuentran deformadas, cuya posible causa puede ser que se haya formado posteriormente a la huella LP3. (figura 7). 
Pero de repente, se dieron cuenta de que les faltaban las impresiones izquierdas del manus. ¿Qué podía haber ocurrido? ¿Cuál ha podido ser la causa?.
Las posibles hipótesis con respecto a la ausencia de impresiones izquierdas del manus podrían ser las siguientes: Un solapamiento producido por otras huellas (Xing et.al 2013); causas litológicas; causas patológicas (McCrea et.al 2015), como una lesión o enfermedad.Se calculó la velocidad del saurópodo que originó estas huellas y se dieron cuenta de que eran las mismas que la SMG 1-2, por lo que se pudo descartar la opción del modo de andar tripedal causado por una lesión.

EL TERCER ESTUDIO: HUELLAS DE ORNITÓPODOS.
Un camino de huellas bastante abundante en todos los bloques encontrados, excepto en el bloque 6, era producido por otro organismo diferente a los anteriores. Esta vez se trataba de huellas realizadas por ornitópodos, caracterizados por impresiones tridáctilas del pes que carecen de almohadillas en las falanges, aunque a veces se encuentran divididos por unos pliegues interdigitales adquiriendo una configuración cuatripartita, con tres dígitos y una almohadilla en el talón, y con ausencia de impresión de manus. 


Figura 8. Conjunto de huellas principalmente de ornitópodos encontradas en el Bloque 4.
Figura 9. Conjunto de huellas encontradas en el Bloque 3 realizadas por ornitópodos bípedos con una huella de saurópodos superpuesta (marcada por la flecha).
Finalmente, concluyeron que estas huellas pertenecían a la icnofamilia Iguanodontopodidae (Vialov 1988), pero se encontraron con un pequeño problema:
¿A qué icnoespecie  podrían pertenecer?
Para ello, realizaron una tabla comparativa en el que analizaron cada tipo de huella y las posibles icnoespecies. Dudaban entre Carirchnium magnificum (Leonardi et.al 1984), Caririchnium leonardii (Lockley 1987), Caririchnium protohadrosaurichnos (Lee 1997), Caririchnium lotus (Xing et.al 2007), Caririchnium kyoungsookimi (Lim et.al 2012), Caririchnium  encontrado en Shimiaogou, y Ornithopodichnus masanensis (Kim et.al 2009).
Figura 10. Dibujos interpretativos de huellas realizadas por:
A: Caririchnium leonardii; B: Caririchnium protohadrosaurichnos; C: Caririchnium protohadrosaurichnos; D: Caririchnium lotus; E: Caririchnium kyoungsookimi; F: Caririchnium  encontrado en Shimiaogou; G: Ornithopodichnus masanensis.
Tras un intensivo estudio...
Comprobaron que no concordaban del todo bien las huellas encontradas con los dibujos interpretativos que se aprecian en la figura 10. Por lo tanto, tenían los suficientes argumentos para crear una nueva icnoespecie, a la que llamaron Caririchnium liucixini (Leonardi et.al 2009).


Figura 11. Imágenes tomadas de las huellas encontradas en los Bloques 7 y 8, junto a su mapa interpretativo. El Bloque 7 contiene huellas realizas por la icnoespecie Caririchnium liucixini (SMG-O9-R1-L1).

EL CUARTO ESTUDIO: HUELLAS DE PTEROSAURIOS.
Cuando pensaban que el estudio había finalizado, les quedaban aún por analizar las huellas de pterosaurios, que aparecen en las figuras 4 y 6. Decidieron que pertenecían a estos organismos por las siguientes características: la impresión plantígrada y tetradáctil del pes es estrecha; tienen un talón en forma de U; el ángulo de bifurcación entre los dígitos I y III es muy alto, de 131º; y aparecen las impresiones de tres dígitos I-III. Por lo tanto, concluyeron que pertenecen al icnogénero Paraechinus (Xing et.al 2013).

LLEGÓ LA HORA DE LA DESPEDIDA...
Y aquí finaliza mi tercera entrada. Espero que no os haya parecido aburrido y hayáis estado entretenidos leyéndolo. Odio las despedidas, pero espero con entusiasmo poder escribiros de nuevo queridos lectores.
¡HASTA LA PRÓXIMA!

REFERENCIAS:
  • Alexander, R.M. 1976. Estimates of speeds of dinosaurs. Nature, 261: 129-130.
  • Kim, J.Y., Lockley, M.G., Kim, H.M., Lim, J.D., Kim, S.H., Lee, S.J., Woo, J.O., Park, H.J., Kim, H.S. & Kim, K.S. 2009. New Dinosaur Tracks from Korea, Ornithopodichnus masanensis ichnogen. et ichnosp. nov. (Jindong Formation, Lower Cretaceous): implications for polarities in ornithopod foot morphology. Cretaceous Research, 30: 1387-1397.
  • Leonardi, G. 1987. Glossary and Manual of Tetrapod Footprint Palaeoichnology. Departamento Nacional de Producao Mineral, Brazil, p. 75.
  • Lim, J.D., Lockley, M.G. & Kong, D.Y. 2012. The trackway of a quadrupedal ornithopod from the Jindong Formation (Cretaceous) of Korea. Ichnos, 19: 101-104.
  • Lockley, M.G., Hunt, A.P. & Meyer, C.A., 1994b. Vertebrate Tracks and the Ichnofacies Concept: implications for Paleoecology and Palichnostratigraphy. In: Donovan, S. (Ed.), The Paleobiology of Trace Fossils. Wiley and Sons, Inc, New York, pp. 241-268.
  • Lockley, M.G., Wright, J., White, D., Li, J.J., Feng, L. & Li, H. 2002. The first sauropod trackways from China. Cretaceous Research, 23: 363-381.
  • McCrea, R.T., Tanke, D.H., Buckley, L.G., Lockley, M.G., Farlow, J.O., Xing, L.D., Matthews, N.A., Helm, C.W., George Pemberton, S. & Breithaupt, B.H. 2015. Vertebrate ichnopathology: pathologies inferred from dinosaur tracks and trackways from the Mesozoic. Ichnos, 22: 3-4, 235-260.
  • Olsen, P.E. 1980. A comparison of the vertebrate assemblages from the Newark and Hartford Basins (Early Mesozic, Newark Supergroup) of Eastern North America. In: Jacobs, L.L. (Ed.), Aspects of Vertebrate History, Essays in Honor of Edwin Harris Colbert, pp. 35-53.
  • Xing, L.D., Lockley, M.G., Zhang, J.P., Klein, H., Marty, D., Peng, G.Z., Ye, Y., McCrea, R.T., Persons, W.S.I.V. & Xu, T. 2015a. The longest theropod trackway from East Asia, and a diverse sauropod-, theropod-, and ornithopod-track assemblage from the Lower Cretaceous Jiaguan Formation, southwest China. Cretaceous Research, 56: 345-362.


miércoles, 11 de junio de 2014

Los Terópodos

Introducción
Los terópodos, son un suborden de dinosaurios saurisquios que vivieron desde el Triásico superior hasta el Cretácico superior(hace aproximadamente entre 228 y 65 millones de años, desde el Carniano hasta el Mastrichtiano), en lo que hoy es América, Europa, África, Asia, Oceanía y la Antártida. No obstante la extinción de finales del Cretácico, este orden ha pervivido hasta nuestros días bajo la forma de las aves modernas, sus directos descendientes.
La palabra terópodo quiere decir “pie de bestia” y como los sauropodomorfos y los ornistiquios, los terópodos tienen su origen durante el Triásico al evolucionar desde formas semejantes a los ornitodiros lagosúquidos. El terópodo más primitivo encontrado es Herrasaurus y aunque muchos autores no lo han considerado como un verdadero terópodo, ya que este conservaba rasgos antiguos, de una forma semejante a el, surgieron los verdaderos terópodos, en un primer lugar los Ceratosaurios y los Carnosauridos durante finales del Triasico, y los Allosauridos durante principios del Jurasico, junto con otros tipos durante el Cretacico.
La mayoría de los terópodos mantuvieron la postura bípeda carnívora, pero evolucionaron hacia una gran variedad de formas y tamaños siendo los mas espectaculares de todos los que originaron las aves.
Hasta los años 80 los terópodos se dividían en dos grupos según su tamaño; los pequeños y agiles eran los Celurosaurios, que fueron los que originaron las aves, mientras que los grandes predadores como el Allusaurus se agrupaban en los Carnosaurios, que evolucionaron de los Celurosaurios primitivos.Esta clasificación decayó tras el descubrimiento de un terópodo de tala media durante los 60 y 70 llamado Deinonychus. Asi una de las clasificaciones más aceptada es la que vemos a continuación.


Características de los terópodos:
· Dientes normalmente comprimidos lateralmente, curvados con los dos extremos serrados.
· Articulación intramandibular presente, extremo posterior del hueso anular en posición anterior al articular, unión entre palatino y maxila extensa.
· Cráneo neumatizado, cavidades nasales que comunican lateralmente con un gran divertículo en la fosa anterorbita, otros divertículos se extienden por el palatino y los huesos periorbitales, otros divertículos presentes desde la garganta al oído medio y caja craneal.
· Hueso lacrimal que se extiende hasta la zona superior del cráneo.
· El hueso opistótico siempre se encuentra fusionado al occipital.
· Normalmente 23 vertebras presacrales.
· Epipofisis prominentes en las vértebras cervicales.
· Escapula con forma de correa, larga y estrecha, huesos bastante neumatizados, como las costillas, vertebras…
· Humero menor del 50% la longitud del fémur.
· Metacarpos porosos para la fijación de ligamentos, falanges de la mano alargadas, perdida o reducción de los dedos 4 y 5.
· Garras largas, curvadas y afiladas.
· Mayor diversidad que los dinosaurios herbívoros pero las especies menos localizadas especialmente.

Los terópodos basales
Los Herrerasauridae son considerados los dinosaurios más primitivos, vivieron durante finales del Triásico y no llegaron al Jurásico.
Hay polémica sobre si deben ser considerados terópodos primitivos o antecesores de las dinosaurios presaurisquios.
Ya que presentan rasgos intermedios entre ambos. Medían entre 2 y 11m, tenían dientes curvados y puntiagudos, cuello corto y brazos y patas largos. Huesos de la cadera inclinados hacia la parte posterior como los de los Ornistiquios y el pubis todavía en el extremo tenía forma de bota como los terópodos avanzados.
Los huesos de las patas tenían algunas similitudes también con los de los Saurópodos, por lo que también podrían haber sido los Herrerasauridos sus antecesores.
La especie característica es la representada a continuación, Herrerasaurus ischigualastensis.


Los siguientes grupos que surgieron a continuación se consideraron verdaderos terópodos y se agrupan bajo el término de Neotheropoda. El grupo mas primitivo de los neoteropodos son los Ceratosauria, que vivieron desde finales del Triásico a finales del Jurásico que se extinguieron.
A menudo presentaban sobre sus cabezas crestas que posiblemente se empleaban en luchas con machos rivales. A este grupo pertenece también Coelophysis, un dinosaurio del que se han encontrado multitud de esqueletos, algunos completamente articulados. Tras su estudio las teorías creadas apuntan a un posible viviparismo y canibalismo.

Los coelofísidos y los neoceratosaurios forman un grupo evolutivo (Ceratosauria) que se desmarca de las líneas posteriores de terópodos que se agrupan bajo el nombre de Tetanurae. Se ha sugerido que estos dos grupos pueden no formar una línea evolutiva apartada del resto de terópodos, ya que algunos caracteres evolucionados encontrados en los neoceratosauros no se encuentran en los coelofísidos, por lo que los neoceratosaurios podrían estar más cercanos a los tetanurinos que a los coelofísidos.
Los tetanurinos o "colas tiesas" son un grupo de líneas evolutivas paralelas que parecen haber evolucionado hacia formas cada vez más avianas que aparecieron a principios del Jurásico. Por ejemplo, sus cajas torácicas indican que tenían un sistema sofisticado de sacos pulmonares como los que tienen las aves actuales. Se deduce de esto una alta tasa metabólica que parece indicar la aparición de una cierta endotermia.
Esta rama evolutiva incluye a las aves y a los más clásicos terópodos, como el Allosaurus y el Tyrannosaurus. Todos ellos perdieron el dedo IV de la mano, su maxila estaba enfrente de los ojos, la escápula tenía forma de cinta y la fíbula se había reducido enormemente, además de otros caracteres que indican una ascendencia común. Se ha tendido a dividir a los tetanuros en otros dos grupos evolutivos, los Carnosaurios y los Coelurosaurios, aunque son más bien cajones desastre en los que se reúnen formas muy diferentes.
El primer grupo que se separó de los tetánuros fueron los Torvosauroidea, también conocidos como Megalosaurios. Evolucionaron desde un antepasado común con los ceratosaurios durante 
finales del Triásico y parecen haber sido los grandes predadores durante mediados del Jurásico hasta que fueron desplazados por los Allosauridos; sus formas durante el Cretácico eran semiacuáticas y piscívoras, confinadas principalmente a Gondwana.  Desparecieron a principios del Cretácico. Representan un grupo temprano que no encaja con los ceratosaurios y los otros tetanuros, aunque la tendencia actual es a considerarlos como un grupo primitivo de los tetanuros; durante mucho tiempo fueron incluidos dentro de los Carnosaurios. Los Torvosaurios o megalosaurios se dividen en tres familias, la Megalosauridae, Spinosauridae y Eustreptospondylidae, pero sólamente hablaremos de las dos primeras.


Los aveterópodos
Los aveterópodos consitituyen la línea evolutiva que continúa tras la escisión de los Torvosauroidea de los tetanuros. Básicamente, los Avetheropoda constituyen las líneas de los terópodos avanzados, las aves y los allosauridos, como se ve en el árbol evolutivo del principio de la página.
A mediados del Jurásico se separó la primera línea, los Carnosaurios, que actualmente están formados únicamente por los Allosauridos. Antiguamente los carnosaurios englobaban a todos los terópodos de gran tamaño, incluido el Tyrannosaurus, hoy día, el término Carnosaurio se refiere más a un ecotipo que a un grupo evolutivo y que estaría formado por grandes terópodos carnívoros, con grandes cráneos, cuellos cortos y pequeños miembros delanteros.
El grupo de los Alosauridos, originado a principios del Jurásico, está formado por tres familias que forman un grupo monofilético, y que son Sinraptoridae, Allosauridae yCarcharodontosauridae.
    ·  Los Sinraptoridae son los alosauridos más primitivos, ya que aparecieron a principios del Jurásico en China. Presentaban numerosas crestas elaboradas sobre la cabeza (figura derecha, Sinraptor dongi). 
 ·  Los Allosauridae evolucionaron desde un antepasado común con los sinraptores y los desplazaron durante el Jurásico superior. Los dos grupos eran bastante semejantes en tamaño y apariencia, siendo las diferencias entre ambos pequeños detalles. A este grupo pertenece el tan conocido Allosaurus además de otros comoNeovenator, Valdoraptor. Allosaurus fragilis fue uno de los mayores carnívoros de su época hasta que aparecieron los Tyrannosauridos 50 millones de años después. Sus largas y musculosas patas traseras soportaban las casi dos toneladas de peso de un enorme cuerpo; la cola contrarrestaba el peso de la parte delantera del cuerpo, donde un cuello grueso con forma de S sujetaba la cabeza, con sus inmensas mandíbulas provistas de dientes largos, curvos y aserrados. 
 ·  Los Carcharodontosauridae fueron parientes de los anteriores y florecieron en Gondwana durante el Cretácico. En esta familia se agrupan los mayores carnívoros que poblaron la Tierra, superando incluso el tamaño que posteriormente alcanzó Tyrannosaurus. Su cabeza era larga y estrecha, los dientes rectos, a modo de cuchillos. A este grupo pertenecen Bahariasaurus, Carcharodontosaurus, Giganotosaurus y posiblementeAcrocanthosaurus, aunque es considerado por algunos como perteneciente al grupo anterior.


Siguiendo el árbol evolutivo, la línea que queda tras la escisión de los carnosaurios en los aveterópodos es la de los Coelurosauria. Inicialmente este término englobaba todos los dinosaurios de pequeño tamaño, desde Coelophysis a Ornithomimus, de la misma forma que Carnosauria incluía a los mayores.
El primer grupo que se separó de los Celurosaurios es la familia de los Compsognathidae, a finales del Jurásico. Compsognathus longipes medía apenas alrededor de un metro de longitud y pesaba unos 3.5 kg; tenía una cabeza larga terminada en un hocico pronunciado. Sus restos se encontraron en un yacimiento alemán.
Ornitholestes hermanii y Coerulus fragilis continuaron la línea de los aveterópodos; el primero era un carnívoro de unos 2 m y 25 kg, con una cola que llegaba al metro de longitud y una cabeza pequeña pero con una mandíbula fuerte. Coerulus era más o menos similar de tamaño, pero se diferenciaba por su cabeza más corta y alta que la del anterior además de un cuello más largo. Ambos fueron encontrados en Norteamérica y vivieron durante el Jurásico Superior. Considerados ya Maniraptoriformes, una forma semejante a ellos, posiblemente Scipionyx, fue la que originó a finales del Jurásico las líneas evolutivas de los Ornitomimosaurios y Tiranosauridos por una parte y la de los Maniraptores por otra.
Los Ornithomimosauria:
Se trata de ligeros terópodos de unos 5 m de longitud, con miembros traseros largos y delgados, cabeza pequeña y cuello largo. Sus mandíbulas eran alargadas y carecían de dientes pero estaban equipadas con un pico córneo. Los miembros anteriores no estaban muy reducidos, su desarrollo era bastante débil; la muñeca y la mano no eran del tipo de agarre de otros terópodos. Vivieron durante el Cretácico. De los géneros más conocidos de este grupo destacamos Ornithomimus y Gallimimus; el segundo podía medir hasta 8 m de longitud y unos 4 de altura. La presencia de un pico quitinoso en Gallimimus puede sugerir una alimentación filtradora herbívora semejante a la de un pato, lo que apoyaría el hecho de los numerosos gastrolitos encontrados en sus estómagos.

Los Tyrannosauroidea:
Constituye junto con la línea anterior un grupo aparte de los Maniraptores y en ella se encuentra el tan famoso Tyrannosaurus rex que vivió durante el Cretácico. Se pueden definir como celurosaurios gigantes más emparentados con los ornitomímidos que con los allosauridos. Fueron de los últimos y más grandes dinosaurios carnívoros; su inmensa cabeza, de alrededor de metro y medio de longitud, tenía una mandíbula provista de dientes de extremos serrados de hasta 15 cm de largo. En comparación con sus miembros traseros, los delanteros eran enanos y tan sólo tenían dos dedos. Se observa una reducción en los terópodos de sus manos delanteras, y en este grupo esta reducción parece haber llegado al máximo y si no se hubieran extinguido al finales del Cretácico quién sabe si las hubieran perdido; las dos especies más evolucionadas del grupo, Albertosaurus megagracilis y T. rex cumplían esta regla y apenas usaban sus manos. Este tamaño de las manos y su tamaño corporal han sido la causa de que se crea que estos animales no alcanzaran velocidades suficientemente altas para realizar ataques y ser verdaderos depredarores, siendo por tanto carroñeros y usarían sus amplias fosas nasales para localizar la comida en descomposición. La polémica está abierta.


Los maniraptores
Consitituyen la otra línea evolutiva que se separó a principios del Cretácico de los Tiranosauridos y Ornitomimosauridos y se define como aquellos dinosaurios más cercanos a las aves que a los ornitomimosaurios. De acuerdo con la clasificación filogenética, las aves descienden de este grupo.
Se caracterizan por tener una serie de elementos modificados en la muñeca, entre ellos la presencia del hueso semilunar, único en este grupo de reptiles, que permitiría un vuelo más seguro. Tienen además las clavículas unidas por una fúrcula, esternón, un pubis que apunta hacia abajo en lugar de tener una posición delantera típica de los saurisquios, una cola corta, brazos largos, manos más largas que los pies y el dedo central de la mano más alargado que el resto. Muchas de estas modificaciones comienzan a preparar la estructura que más tarde permitiría el vuelo.
Como se ve en el árbol del principio de la página, los miembros más aceptados del grupo son los Therizinosaurios y Oviraptores por una parte y los Dromaeosaurios y Troodontidos por otra, además de las aves.

Los Oviraptosauria y Therizinosauroidea:
Los oviraptosaurios eran un grupo de dinosaurios de tamaños variables que vivieron durante finales del Cretácico en Asia y estaban caracterizados por unas mandíbulas sin dientes que formaban un pico córneo; el hueso dental tenía dos apéndices separados por unas grandes aberturas laterales. Son el segundo grupo de terópodos sin dientes y se diferencian de los ornitomimosaurios por la presencia del pico y la configuración de la mandíbula inferior. Estaba dividido en dos familias, de las que la familia Oviraptoridae es quizás la más conocida.

Los therizinosauroideos se diferencian de los anteriores por tener pequeños dientes bulbosos con dentículos alineados paralelos al eje longitudinal del diente, vértebras cervicales muy pneumatizadas y caderas muy anchas entre otros.Therizinosaurus cheloniformis (imagen derecha), de entre 8 y 12 m de longitud y unas 6 toneladas es el miembro más característico de esta familia. Se cree que era un dinosaurio que vivía en ambientes desérticos ya que posee numerosas adaptaciones para estos ambientes; destacar entre ellas las largas garras que se piensa que usaba para excavar en la arena en busca de raíces; además, sus pies casi cuadrados y un bajo punto de gravedad contribuirían a evitar caídas en el suelo tan inestable de las dunas.

Los Troodontidae y Dromaeosauridae:
Aunque estos dos grupos tienen caracteres propios que los eliminan como antecesores de las aves, son sin duda los terópodos avianos más cercanos a las aves.
Los troodóntidos son un pequeño grupo de unas cinco especies poco conocido entre los manirraptores. Eran pequeños terópodos de patas largas que permitían una locomoción rápida, con un gran cerebro en relación al tamaño del cuerpo, cráneos muy neumatizados, numerosos dientes y una garra larga, retráctil y curvada en el segundo dedo del pie, aunque no tan larga como la de los dromeosaurios y que posiblemente no usara para cazar. Una especie representativa es Troodon formosus, un reptil de unos 2 m de longitud que vivió a finales del Cretácico y cuyos restos fueron encontrados en EEUU y México. La característica más sorprendente de este grupo es sin duda su gran cráneo, cerebro y órbitas oculares, dispuestas casi hacia el frente; esto hace pensar en un gran desarrollo de la vista, cuya casi posición binocular les permitiría enfocar y calcular las distancias para cazar los pequeños mamíferos de los que se alimentaría.

Los dromeosauridos 
Eran pequeños y ágiles reptiles carnívoros, de unos 2 o 3 m de longitud. Destacan de ellos la mandíbula musculosa, el esternón osificado, los brazos relativamente largos con manos con capacidad de agarre, un pubis retrovertido y paralelo al isquion, metatarsos cortos y sobre todo, una potente garra en los dedos 2 del pie, curva y retráctil, el doble de larga que la de los otros dedos cuya función era matar las presas. Deinonychus antirrhopus, que ha sido encontrado en Norteamérica en rocas de principios del Cretácico medía unos 3 m y pesaba los 80 kg; su nombre, que significa "garra terrible", hace honor a la potente garra típica del grupo; han aparecido de él más de 8 esqueletos articulados y desarticulados. Velociraptor mongoliensis (a la derecha)aparecío en formaciones de finales del Cretácico en Mongolia y China; tendía el tamaño de un perro, de 1.8 m de longitud y 45 kg de peso y de él se han encontrado más de 6 cráneos y esqueletos completos. Uno de sus fósiles se encontraba asociado con Protoceratops andrewsi, un ceratópsido al cual estaba dando muerte con sus garras, pero tenía sus miembros delanteros en las fauces del Protoceratops. Se diferencia de Deinonychus por su cráneo más bajo y dientes más espaciados. Utahraptor ostrommaysorum, encontrado en los últimos años es un dromeosaurido de gran talla, en torno a los 6 m de longitud y algo más de una tonelada de peso; recientemente se han encontrado fósiles de otros dromeosauridos gigantes.


El origen de las aves y Archaeopteryx
Las primeras protoaves (Archaeornithes) evolucionaron desde pequeños celurosaurios desde finales del Jurásico. Sus pequeñas plumas les permitían un cierto planeo o pequeños vuelos hacia los árboles para evitar ataques de depredadores terrestres. Durante la extinción de finales del Jurásico numerosos dinosaurios de gran talla se extinguieron y quedaron libres numerosos nichos que fueron ocupados por estas protoaves que perdieron en parte su capacidad de vuelo al hacerse predadores terrestres u omnívoros. Otras especies originaron formas más preparadas para el vuelo, y durante los primeros 5 - 10 millones de años del Cretácico sufrieron una gran radiación evolutiva originando gran cantidad de órdenes y familias.
La gran extinción de finales del Mesozoico puso fin a esta especie de jardín del Edén; los dinosaurios, pterosaurios, reptiles marinos y un gran número de aves y mamíferos desaparecieron. Tan sólo sobrevieron entre los arcosaurios una línea de endotermos que llegó al Cenozoico y se conocen como Neornithes o pájaros modernos.

Para hacernos una idea...


Bibliografía:

Paginas de interés:
http://satori.geociencias.unam.mx/27-1/(06)Torres.pdf/

Documentales interesantes acerca del tema:
" Caminando entre bestias" BBC
" Depredadores prehistóricos" BBC
" A la sombra de los dinosaurios" BBC
" El ocaso de los dinosaurios" Discovery channel
" Gigantes del oceano" National Geographic