Mostrando entradas con la etiqueta saurópodos. Mostrar todas las entradas

domingo, 1 de mayo de 2016

DEJANDO HUELLA.

Artículo original: Lida Xing Martin G. Lockley, Daniel Marty,  Hendrik Klein,  Geng Yang,  Jianping Zhang,  Guangzhao Peng, Yong Ye, W. Scott Persons IV,  Xianya Yin & Ting Xu. 2016. A diverse saurischian (theropodesauropod) dominated footprint
assemblage from the Lower Cretaceous Jiaguan Formation in the
Sichuan Basin, southwestern China: A new ornithischian ichnotaxon,
pterosaur tracks and an unusualsauropod walking pattern. Cretaceous Research, 60:176-193. 

Hola de nuevo amigos! Como os habéis podido dar cuenta, mis dos entradas anteriores se han centrado en la lomoción de los dinosaurios, y en esta nueva entrada también os voy a hablar de ello. Con cada entrada intento atraeros al apasionante mundo de la icnología, y transmitiros lo asombroso que es saber qué organismo originó la huella y cómo era su forma de andar. Intento no ser pesada pero no puedo evitar dejar de hablar de ellas debido a mi gran afición. Espero que os guste esta nueva entrada, y se os haga entretenida la lectura.

Figura 1. Cuenca de Sichuan.
COMENCEMOS...
Nos adentramos en China. En concreto en la cuenca de Sichuan, conocida también con el nombre de cuenca Púrpura o Roja. Es una de las cuencas más grandes de China, forma parte de la plataforma de Yangtze,  y contiene materiales datados del Mesozoico. En su  margen meridional, donde se encuentra ubicado Shimiaoguo, y se han encontrado con un área de huellas en varios bloques caídos, pertenecientes a la formación Jiaguan (Xing et. al, 2015). 

Figura 2. Mapa que representa la provincia de Sichuan, señalando con una estrella los lugares donde se han encontrado huellas de dinosaurios.

Cada camino de huellas lo numeraron con el prefijo SMG, y fueron realizadas por terópodos, designados con la mayúscula T; D para dromeosáuridos; S para saurópodos; O para ornitópodos; P para pterosaurios (Zhen et.al 1994), (Xing et.al 2013), (Xing et.al 2015). Lo primeron que hicieron fue realizar una tabla con varias columnas donde represetaron cada uno de los bloques, el organismo que las originó (th: terópodos no voladores; Dr: dromeosaurios; Sa: saurópodos; Or; ornitópodos; Pt: pterosaurios), y la relación entre el número de huellas (TS) y el rastro dejado (TWS). 

RECOPILACIÓN DE DATOS.
Tras una intensa y dura recogida de datos, se realizaron una serie de tablas:
  • En la tabla 1, aparecen el número de huellas encontradas y de caminos realizados por cada una de las familias de dinosaurios. 
  • En la tabla 2, reflejaron una serie de medidas tomadas en ornitópodos, terópodos y dromeosaurios. Los datos están en centímetros (cm) y grados (º), excepto ML/MW que son adimensionales. En ella aparecen una serie de abreviaturas que significan lo siguiente: ML: longitud máxima; MW: anchura máxima (distancia medida desde la punta del dígito II al IV; II-IV: ángulo medido entre los dígitos II y IV; PL: longitud del ritmo del paso; SL: longitud de la zancada; PA: ángulo del paso.
  • En la tabla 3, se recogen las medidas (en cm y grados; excepto ML/MW, WAP/P´ML y WAM/M´MW son adimensionales) de los caminos realizados por saurópodos. Las abreviaturas que aparecen son las siguientes: MA: longitud máxima; MW: anchura máxima; R: rotación; PL: longitud del ritmo del paso; SL: longitud de la zancada; PA: ángulo del paso; WAP: anchura de la angulación del pes; WAM: anchura de la angulación del manus.
  • En la tabla 4, se recogen el número total de organismos que realizaron las huellas con sus respectivos porcentajes. Abreviaturas: Or: ornitópodo; Th: terópodo no volador; Bi: pájaro; Sa: saurópodo; Pt: pterosaurio.

EL PRIMER ESTUDIO: HUELLAS DE TERÓPODOS.
Comenzaron analizando las huellas de terópodos encontradas en los 8 bloques, excepto en el bloque 7 que no encontraron ninguna. Han podido identificar 31 pequeñas huellas tridáctilas cuya longitud del pes era de 7-18 cm, y las clasificaron en 7 caminos diferentes catalogadas como T1-T7, gracias a la ayuda de toda la información recopilada en la tabla 2. (Figura 3).
Figura 3.  En el bloque 1 aparecen diferentes impresiones de huellas realizadas por tres grupos diferentes de organismos: terópodos, saurópodos y ornitópodos, siendo los predominantes los terópodos.
Se pudo saber con exactitud que eran de terópodos gracias a la mejor huella conservada, que aparece en la figura 4. En esta huella se aprecia claramente como la longitud del dígito III es la más larga y los dígitos exteriores son casi iguales, el ángulo entre los dígitos II-IV es de 76º (47,56). Por otro lado, las huellas T2-L1, TI4 y T7.L1 se caracterizan por presentar una débil mesaxonomía, es decir, el grado en que el dígito III sobresale hacia delante (Lull, 1904). Gracias a ello, se supo que pertenecían a la familia Eubrontiae, y a los primeros terópodos que vivieron en el Cretácico conocidos como Jialingpus. Por otro lado, con los datos de las velocidades de estos organismos (Alexander, 1976) y las longitudes de sus pasos, es posible saber si estaba caminando, corriendo o trotando. Los resultados obtenidos fueron los siguientes: la velocidad de las huellas T1, T2, T4 y T6 fue de 3,96-6.66 km/h, y las longitud del paso de 1,54-1,75 (Leonardi, 1987), lo que implica que estaba caminando; mientras que T5 tiene un valor más alto y una mayor longitud en el paso, por lo que estaba más cerca del trote.

Figura 4. Huellas de terópodos y pterosaurios. 
Las siguientes características que tienen en común estas huellas les permitieron identificar el organismo que las originó: el dígito II aparece representado como una pequeña impresión situado más próximo al dígito III; el dígito IV es más largo que el III; y el ángulo divergente entre los dígitos III y IV es de 37º, y eran huellas didáctilas. Todo ello les sirvió para saber que se trataban de huellas realizadas por Deinonychosaurian. El icnotaxón Deinonychosaurian comprende cuatro icnogéneros Velociraptorichnus, Dromaeopodus, Dromaeosauripus y Menglopipus, que clasifican a las huellas encontradas en tres clases dependiendo de sus tamaños (Figura 5).
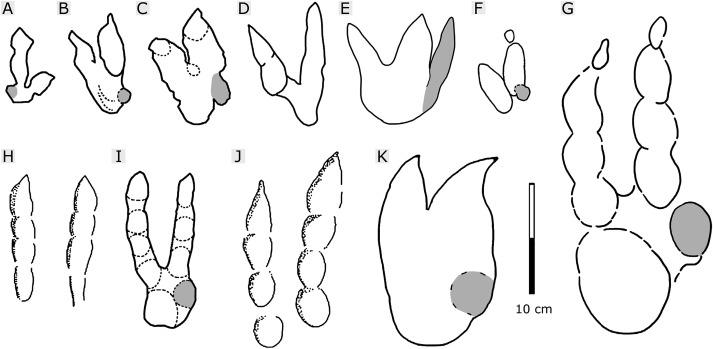
Figura 5. Conjunto de dibujos interpretativos de las distintas huellas realizadas por varios icnotaxones de dromeosaurios: 
A: Menglongipus (Xing et.al 2009); B: Velociraptorichnus from Shandong (Li et.al 2007); C: Velociraptorichnus from Emei (Xing et. al 2009); D: Velociraptorichnus from Mujiaowu (Xing et.al 2015); E: Velociraptorichnus wangi (Xing et.al 2015); F: Velociraptorichnus encontrado en SMG; G: Dromaeopodus shandongensis (Li et.al 2007); H: Dromaeosauripus jinjuensis (Kim et.al 2012); I: Dromaeosauripus yongjingensis (Xing et.al 2013); J: Dromaeosauripus hamanensis (Kim et.al 2008); K: Dromaeosauripus Jishan (Xing et.al 2013).

EL SEGUNDO ESTUDIO: HUELLAS DE SAURÓPODOS.
Como ya he mencionado anteriormente, estas huellas no fueron las únicas que encontraron. Descubrieron un camino de tres huellas muy bien conservadas bastante anchas, que nombraron como SMG-S1-S3, en los bloques 1 (figura 3), bloque 2 (figura 7) , bloque 5 (figura 8 y 9) y bloque 6 (figura 6).
Tanto las huellas SMG-S1 y SMG-S2 tenían una anchura media (WAP/P'ML) de  1.3  la  y 1.2 respectivamente. En cuanto a las impresiones del pes eran más largas que anchas; presentaban un alto grado de heteropodia; y los dígitos del I al IV disminuían de tamaño. Tras analizarlas, se dieron cuenta de que pertenecían al icnogénero Brontopodus (Lockley et.al 1995), (Lockley el.al 2002).

Figura 6. Mapa de huellas encontradas en el Bloque 6. En la imagen real de la derecha aparece un camino de huellas realizado por un dromeosaurio.

Figura 7. Dibujo lineal de un segmento del camino de huellas del Bloque 2 en el que se muestra la traza del pes bien definidos.

Figura 8. Mapa de huellas identificadas en el Bloque 5.


Figura 9.  Conjunto de huellas realizadas por saurópodos encontradas en el bloque 5. 
SMG-S3 muestra muestra un patrón de marcha inusual, debido a que solo conversan las impresiones derechas del manus, y se encuentran rotadas 21º hacia afuera desde el eje del camino de huellas. También se puede observar como el borde distal de la huella RM2 y el borde proximal de RM3 se encuentran deformadas, cuya posible causa puede ser que se haya formado posteriormente a la huella LP3. (figura 7). 
Pero de repente, se dieron cuenta de que les faltaban las impresiones izquierdas del manus. ¿Qué podía haber ocurrido? ¿Cuál ha podido ser la causa?.
Las posibles hipótesis con respecto a la ausencia de impresiones izquierdas del manus podrían ser las siguientes: Un solapamiento producido por otras huellas (Xing et.al 2013); causas litológicas; causas patológicas (McCrea et.al 2015), como una lesión o enfermedad.Se calculó la velocidad del saurópodo que originó estas huellas y se dieron cuenta de que eran las mismas que la SMG 1-2, por lo que se pudo descartar la opción del modo de andar tripedal causado por una lesión.

EL TERCER ESTUDIO: HUELLAS DE ORNITÓPODOS.
Un camino de huellas bastante abundante en todos los bloques encontrados, excepto en el bloque 6, era producido por otro organismo diferente a los anteriores. Esta vez se trataba de huellas realizadas por ornitópodos, caracterizados por impresiones tridáctilas del pes que carecen de almohadillas en las falanges, aunque a veces se encuentran divididos por unos pliegues interdigitales adquiriendo una configuración cuatripartita, con tres dígitos y una almohadilla en el talón, y con ausencia de impresión de manus. 


Figura 8. Conjunto de huellas principalmente de ornitópodos encontradas en el Bloque 4.
Figura 9. Conjunto de huellas encontradas en el Bloque 3 realizadas por ornitópodos bípedos con una huella de saurópodos superpuesta (marcada por la flecha).
Finalmente, concluyeron que estas huellas pertenecían a la icnofamilia Iguanodontopodidae (Vialov 1988), pero se encontraron con un pequeño problema:
¿A qué icnoespecie  podrían pertenecer?
Para ello, realizaron una tabla comparativa en el que analizaron cada tipo de huella y las posibles icnoespecies. Dudaban entre Carirchnium magnificum (Leonardi et.al 1984), Caririchnium leonardii (Lockley 1987), Caririchnium protohadrosaurichnos (Lee 1997), Caririchnium lotus (Xing et.al 2007), Caririchnium kyoungsookimi (Lim et.al 2012), Caririchnium  encontrado en Shimiaogou, y Ornithopodichnus masanensis (Kim et.al 2009).
Figura 10. Dibujos interpretativos de huellas realizadas por:
A: Caririchnium leonardii; B: Caririchnium protohadrosaurichnos; C: Caririchnium protohadrosaurichnos; D: Caririchnium lotus; E: Caririchnium kyoungsookimi; F: Caririchnium  encontrado en Shimiaogou; G: Ornithopodichnus masanensis.
Tras un intensivo estudio...
Comprobaron que no concordaban del todo bien las huellas encontradas con los dibujos interpretativos que se aprecian en la figura 10. Por lo tanto, tenían los suficientes argumentos para crear una nueva icnoespecie, a la que llamaron Caririchnium liucixini (Leonardi et.al 2009).


Figura 11. Imágenes tomadas de las huellas encontradas en los Bloques 7 y 8, junto a su mapa interpretativo. El Bloque 7 contiene huellas realizas por la icnoespecie Caririchnium liucixini (SMG-O9-R1-L1).

EL CUARTO ESTUDIO: HUELLAS DE PTEROSAURIOS.
Cuando pensaban que el estudio había finalizado, les quedaban aún por analizar las huellas de pterosaurios, que aparecen en las figuras 4 y 6. Decidieron que pertenecían a estos organismos por las siguientes características: la impresión plantígrada y tetradáctil del pes es estrecha; tienen un talón en forma de U; el ángulo de bifurcación entre los dígitos I y III es muy alto, de 131º; y aparecen las impresiones de tres dígitos I-III. Por lo tanto, concluyeron que pertenecen al icnogénero Paraechinus (Xing et.al 2013).

LLEGÓ LA HORA DE LA DESPEDIDA...
Y aquí finaliza mi tercera entrada. Espero que no os haya parecido aburrido y hayáis estado entretenidos leyéndolo. Odio las despedidas, pero espero con entusiasmo poder escribiros de nuevo queridos lectores.
¡HASTA LA PRÓXIMA!

REFERENCIAS:
  • Alexander, R.M. 1976. Estimates of speeds of dinosaurs. Nature, 261: 129-130.
  • Kim, J.Y., Lockley, M.G., Kim, H.M., Lim, J.D., Kim, S.H., Lee, S.J., Woo, J.O., Park, H.J., Kim, H.S. & Kim, K.S. 2009. New Dinosaur Tracks from Korea, Ornithopodichnus masanensis ichnogen. et ichnosp. nov. (Jindong Formation, Lower Cretaceous): implications for polarities in ornithopod foot morphology. Cretaceous Research, 30: 1387-1397.
  • Leonardi, G. 1987. Glossary and Manual of Tetrapod Footprint Palaeoichnology. Departamento Nacional de Producao Mineral, Brazil, p. 75.
  • Lim, J.D., Lockley, M.G. & Kong, D.Y. 2012. The trackway of a quadrupedal ornithopod from the Jindong Formation (Cretaceous) of Korea. Ichnos, 19: 101-104.
  • Lockley, M.G., Hunt, A.P. & Meyer, C.A., 1994b. Vertebrate Tracks and the Ichnofacies Concept: implications for Paleoecology and Palichnostratigraphy. In: Donovan, S. (Ed.), The Paleobiology of Trace Fossils. Wiley and Sons, Inc, New York, pp. 241-268.
  • Lockley, M.G., Wright, J., White, D., Li, J.J., Feng, L. & Li, H. 2002. The first sauropod trackways from China. Cretaceous Research, 23: 363-381.
  • McCrea, R.T., Tanke, D.H., Buckley, L.G., Lockley, M.G., Farlow, J.O., Xing, L.D., Matthews, N.A., Helm, C.W., George Pemberton, S. & Breithaupt, B.H. 2015. Vertebrate ichnopathology: pathologies inferred from dinosaur tracks and trackways from the Mesozoic. Ichnos, 22: 3-4, 235-260.
  • Olsen, P.E. 1980. A comparison of the vertebrate assemblages from the Newark and Hartford Basins (Early Mesozic, Newark Supergroup) of Eastern North America. In: Jacobs, L.L. (Ed.), Aspects of Vertebrate History, Essays in Honor of Edwin Harris Colbert, pp. 35-53.
  • Xing, L.D., Lockley, M.G., Zhang, J.P., Klein, H., Marty, D., Peng, G.Z., Ye, Y., McCrea, R.T., Persons, W.S.I.V. & Xu, T. 2015a. The longest theropod trackway from East Asia, and a diverse sauropod-, theropod-, and ornithopod-track assemblage from the Lower Cretaceous Jiaguan Formation, southwest China. Cretaceous Research, 56: 345-362.


lunes, 6 de abril de 2015

¿Cuentos chinos? Persiguiendo una leyenda.

INTRODUCCIÓN:

La existencia de los restos de dinosaurios no ha pasado desapercibida a los ojos del ser humano en los últimos milenios. Su considerable tamaño ha sido usado para dar vida a numerosas leyendas, relatos mitológicos e incluso creencias religiosas. Ejemplos de ello se encuentran en la mitología romana y griega y sus historias de gigantes; los gigantes emplumados que aterraban a los aborígenes australianos; el arte rupestre asociado a estas huellas en Arizona; o la historia de Gilgamesh y su lucha con un reptil gigante en el antiguo imperio babilónico. El estudio de estas huellas de actividad orgánica en el registro fósil (icnofósiles) es reciente, bajo el punto de vista humano. La primera descripción científica de unas huellas de dinosaurio data del año 1836, por Hitchcock.

Las rocas mesozoicas son abundantes en China, y su interpretación ha dado que hablar a los habitantes de esta zona de Asia a lo largo de su historia. En una encuesta del impacto cultural de los fósiles chinos, Xing et al. demostró que la creencia popular era que las huellas de dinosaurios son marcas creadas por seres divinos, tales como el famoso ave fénix o el pollo dorado; o impresiones hechas por héroes legendarios; o bien por mamíferos de considerable tamaño.

El seguimiento de un ser legendario chino, Zhigealu, considerado ancestro y creador por la cultura Yi (Feng, 1986; Aluoxingde, 1994), ha inducido el descubrimiento que desvelaremos más adelante. Esto, como se demostrará al final del artículo tras su desarrollo, tiene grandes implicaciones, incluso a nivel cotidiano. La investigación detallada ha sido publicada por el científico Lida Xing y colaboradores, en el artículo 'Tracking a legend: an Early Cretaceous Sauropod Trackway from Zhaojue County, Sichuan Province, Southwestern China.'


DESCUBRIMIENTO Y CULTURA:

En septiembre de 1991, una operación de minería de cobre expuso un área bien conservada de restos de dinosaurios en la provincia de Sichuan. Este lugar incluía numerosos icnofósiles de saurópodos y ornitópodos y algunos de terópodos y pterosaurios. Cuando se produjo el descubrimiento, las personas de la zona creyeron que se trataban de huellas dejadas por Zhigealu mientras montaba a su caballo, Simudydian.

En diciembre de 2004, Jiefang Ebi investigó este registro fósil. El total cubría un área de 1.500 metros cuadrados e incluía 12 trazas fósiles independientes. Desafortunadamente el lugar sufrió un colapso gradual entre 2006 y 2009, por lo que más del 95% de los restos fueron dañados severamente, no pudiéndose extraer conclusiones de este lugar.

Fig. 1: El héroe antiguo Zhigealu, según las leyendas chinas.

Haciendo un estudio más profundo de la cultura Yi, se observó que este no era el único lugar en el que se había interpretado la presencia de este héroe legendario. Declaraciones posteriores de las personas de esta cultura revelaron que existían otros lugares donde se habían encontrado más huellas de "Simudydian" y en los que su historia había pasado de generación en generación. El seguimiento de estas leyendas llevó a los investigadores a Zhaojue y a Jiefang, dos zonas donde se decía que el descenso del héroe del cielo provocó un impacto en la roca madre que dejó impresas sus huellas.

Finalmente, un gran yacimiento de saurópodos fue descubierto en esos lugares por los exploradores. El lugar no había sufrido una meteorización severa, lo que indicaba que había estado al descubierto durante un periodo de tiempo corto (a escala geológica). Se entiende que la cercanía del río Laqing, con sus crecidas y bajadas, y la erosión gradual de los depósitos de este río van exponiendo poco a poco estas trazas fósiles, lo que daría lugar a estas leyendas.


RESEÑA GEOLOGÍA:

Basado en el mapa geológico 1:200.000 de China, los yacimientos estudiados se encuentran en una zona en que convergen varias formaciones, todas ellas de edad mesozoica (251Ma-65.5Ma). Los estratos están divididos en Cretácico Inferior por la Formación Feitianshana, Cretácico Superior por la Formación Xiobana, e incluso Paleoceno por la Formación Leidashuana. Con motivo de este estudio, la más importante de ellas es la Formación Feitianshana, de 302-1090m de espesor y compuesta por sedimentos fluviales.


DISCUSIÓN:

Yacimiento de Jiefang:

La mayoría del registro de saurópodos de China corresponden a Brontopodus, tratándose de caminos de huellas de amplia o media anchura (Lockley et al. 2002). La morfología de las patas de estos animales y la disposición de los restos para JF-S1 es típica para los saurópodos (Lockley, 1999, 2001)


Tabla 1: Medidas (cm) de distintos parámetros en las huellas de saurópodos encontrados en Jiefang. PL: longitud de las patas; PW: anchura de las patas; SL: longitud del paso; PL: distancia entre dos huellas de la misma pata; PA: ángulo entre dos huellas; L/W: longitud y anchura máximas; WAP: valor calculado del ancho de las patas; WAM: valor calculado del ancho de las extremidades.
Santos et al. (2009) definió las características de Brontopodus:
  1. Sus rastros de huellas son anchos.
  2. Las impresiones de sus patas son más largas que anchas con 3 garras bien diferenciadas (dígitos I-III), una vestigial (IV) y una pequeña callosidad o almohadilla (V).
  3. Estas impresiones tienen forma de U hacia el talón y forma redondeada por los dígitos I y V.
  4. Gran heteropodia o diferencias entre las patas de un mismo individuo.
No obstante, contrario a la definición de Santos et al. (2009), Brontopodus muestra una huella más alargada y menor heteropodia. El registro de Jiefang tiene además otras peculiaridades con respecto a lo habitual en saurópodos, pudiéndose destacar la estrechez de sus rastros de huellas. Estos hechos han demostrado que existe una abrumadora variabilidad en estos parámetros para los propios saurópodos, por lo que extraer conclusiones resulta precipitado.

Pero entonces, ¿qué se puede sacar en claro del yacimiento de Jiefang? Para empezar, la heteropodia de estos restos se corresponde con la del Brontopodus birdi, con lo que es posible acotar el cerco del tipo de especies que pudieron generar esos icnofósiles.

Yacimiento de Zhaojue:

Fig. 2: Arte conceptual del género Titanosaurus.
El registro fósil de dinosaurios de la cuenca de Sichuan está dominado por los terópodos y los ornitópodos (Xiang et al. 2011) También han sido encontradas en esta zona huellas de otros organismos alados (Zhen et al. 1995), pero son menos habituales. El descubrimiento del yacimiento de Zhaojue y con él el de huellas de saurópodos supone la primera observación de saurópodos en el Cretácico de Sichuan. En este caso, la morfología del camino de huellas, que es notablemente amplia, sugiere que fue generado por especies del género Titanosaurus. 


CONCLUSIONES:

La paleontología, la arqueología y las creencias populares pueden estar más unidas de lo que se cree a simple vista. Buen ejemplo de ello son los yacimientos de huellas de especies tipo Brontopodus y Titanosaurus en Jiefang y Zhaojue. Pistas decisivas para su hallazgo vinieron de la mano de personajes locales mencionando las huellas del legendario héroe antiguo Zhigealu.

La interpretación de las leyendas locales de esta zona de China ha llevado al descubrimiento de un importante yacimiento de huellas de dinosaurio especialmente esclarecedor por la gran variabilidad de sus caminos de huellas, que combina estrechos y amplios. Este hecho sugiere que pueden existir otros lugares aún sin estudiar y que podrían ser descubiertos recopilando información de las leyendas sobre huellas de criaturas legendarias. En este caso, se ha ampliado así el registro para la cuenca de Sichuan.

¿Y en qué cambia esto tu vida, lector? La próxima vez que alguien te hable de cuentos chinos podrás pedirle más explicaciones, podrías estar en las puertas de un descubrimiento paleontológico de incalculable valor.


REFERENCIAS: 


  • Aluoxingde, A. 1994. King Zhigaalu: Yi Nationality Epic. Guizhou Nationality Press, Guizhou, 211 p. Author team of Continental Mesozoic Stratigraphy and Paleontology in Sichuan Basin of China (CMSPSC). 1982. Continental Mesozoic Stratigraphy and Paleontology in Sichuan Basin of China. Sichuan People’s Publishing House, Chengdu, pp. 205–206.
  • Feng Y. W. 1986. Le’eteyi. Sichuan Nationality Press, Chengdu, 157 p. First regional geological survey team of Sichuan Provincial Geological Bureau (SPGB-FRGST), Panxi regional geological team of Sichuan Province Metallurgy Geological Bureau (SPMGB-PRGT). 1965. The regional EARLY CRETACEOUS SAUROPOD TRACKWAY, CHINA 27 Downloaded by [University of Alberta] at 17:45 12 March 2015 geological investigation report (1:200,000) of the Xichuan, (internal publications).
  • Hitchcock, E. 1836. Ornithichnology—Description of the footmarks of birds (Ornithichnites) on New Red Sandstone in Massachusetts. American Journal of Science, 29:327.
  • Lockley, M. G. 1999. The Eternal Trail: A Tracker Looks at Evolution. Perseus Books, Cambridge, 352 p.
  • Lockley, M. G. 2001. Trackways–dinosaur locomotion. In Briggs, D. E.G. and Crowther, P. (eds.). Palaeobiology II: A Synthesis. Blackwell Science, Oxford, pp. 412–416.
  • Lockley, M. G., Wright, J., White, D., Matsukawa, M., Li, J. J., Feng, L., yLi, H. 2002. The first sauropod trackways from China. Cretaceous Research, 23:363–381.
  • Santos, V. F., Moratalla, J. J., yRoyo-Torres, R. 2009. New sauropod trackways from the Middle Jurassic of Portugal. Acta Palaeontologica Polonica, 54:409–422.
  • Xing, L. D., Mayor, A., Chen, Y., Harris, J. D., y Burns, M. E. 2011a. The folklore of dinosaur trackways in China: Impact on paleontology. Ichnos, 18(4):213–220.
  • Xing, L. D., Harris, J. D., Gierli nski, G. D., Wang, W. M., Wang, Z. Y., y Li, D. Q. 2011b. Middle Cretaceous non-avian theropod trackways from the southern margin of the Sichuan Basin, China. Acta Palaeontologica Sinica, 50:470–480.
  • Xing, L. D.; Lockley, MG; Yang, G; Mayor, A; Klein, H; Persons, WS; Chen, Y; Peng, GZ; Ye, Y; Ebi, JF 2015 Tracking a Legend: An Early Cretaceous Sauropod Trackway from Zhaojue County, Sichuan Province, Southwestern China, Ichnos, 22(1):22-28.
  • Zhen, S. N., Li, J. J., y Zhang, B. K. 1995. Dinosaur and bird footprints from the Lower Cretaceous of Emei County, Sichuan, China. Memoirs of the Beijing Natural History, 54:105–120.

lunes, 26 de mayo de 2014

Rastros: dime con quién andas y te diré quién eres


“La naturaleza benigna provee de manera que en cualquier parte halles algo que aprender”

    (Leonardo da Vinci)


Imaginemos un yacimiento paleontológico: una gran lona blanca protege del sol al gran equipo de paleontólogos que, con pequeños punzones y pinceles, buscan cuidadosamente fósiles en la tierra. Estos científicos llevan años trabajando en esa zona en busca de realizar un gran descubrimiento, pero parece que las pistas de que allí hubo vida se han esfumado. Están a punto de retirarse y comenzar desde el principio en otra zona cuando uno de ellos grita con emoción a sus compañeros que al fin lo ha encontrado, que tiene ¿una huella?

Si hemos fantaseado, desde los tópicos, con el final de esta historia, hemos colocado en nuestro yacimiento un gran cráneo de mamut, un esqueleto de pez carnívoro gigante o evidencias de la existencia de Godzilla, pero nunca una huella.

Es por eso que esta entrada está basada en el artículo E.García-Ortiz, F. Pérez-Lorente, 2014. Palaeoecological inferencesabout dinosaur gregarious behaviour based on the study of tracksitesfrom La Rioja area in the Cameros Basin (Lower Cretaceous, Spain).Journal of Iberian Geology, 40: 113-127, en el que observaremos la gran importancia de los icnofósiles dentro del registro, y más concretamente las huellas, para la determinación de patrones ecológicos e, incluso, inferencia de condiciones paleogeográficas, lo que permite saber la estructura y dinámica de las poblaciones en el Cretácico inferior. 


Marco geográfico y geológico

El estudió se realizó en La Rioja (Fig. 1), que se localiza junto con Soria y Burgos en la cuenca de Cameros, limitada por la Sierra de la Demanda al noroeste, por la cuenca terciaria del Ebro al norte, por la del Duero y Almazán al sur y por la sierra del Moncayo al este. La Rioja es la región de España con mayor número de rastros de dinosaurios, con más 150 rastros y 10.000 pisadas.


Fig. 1-.Localización geográfica y geológica de La Rioja dentro de la cuenca de Cameros 1a) Mapa geológico simplificado de la Península Ibérica. 1b) Localización geográfica de la cuenca de Cameros  en el contexto de la Comunidad Autónoma de La Rioja. 2) Yacimientos de huellas y grupos litoestratigráficos en La Rioja.


La cuenca mesozoica de Cameros tiene una geometría de sinclinal con un grosor máximo en la zona central que decrece progresivamente hacia el norte y hacia el sur. La unidades distinguibles dentro del área son, según Mas et al. (2002) y Díaz-Martínez et al. (2010), entre otros, Tera, Oncala, Urbión, Enciso y Oliván. todas ellas compuestas, en general, por material carbonatado y siliciclástico de origen continental, y asociadas a la formación Leza, cuya edad no está completamente definida y se sitúa dentro del rango Berriasiense-Aptiense (Cretácico inferior).

Las huellas estudiadas se localizan principalmente en la unidad Enciso, aunque algunas de ellas también proceden de Oncala y Urbión. 


Tras la pista de los dinosaurios 

Para el estudio de la paleoecología relacionada con los dinosaurios de la cuenca de Cameros, nos basamos, en este caso, en el gregarismo, resumido a partir de otras definiciones (Heymer, 1982; Immelmann and Beer, 1989; Sarmiento, 2001; Hickman et al., 2002) como "el hábito de vivir en grupos o manadas de individuos de la misma especie que puede ser temporal (por refugio, alimento o, simplemente, unión sexual) o permanente”. Las evidencias de gregarismo son diversas según los autores consultados (Currie and Eberth, 2010; Lucas, 2007), sin embargo, la mejor evidencia para inferir un comportamiento gregario son los icnofósiles. 

Según Bromley (1996), los dinosaurios de la misma especie o incluso un mismo individuo pueden producir distintos tipos de pisadas según su comportamiento y, por el contrario, dinosaurios de distintas especies pueden dejar el mismo tipo de pisadas cuando actúan de la misma manera. Sin embargo, se considera que a un nivel taxonómico mayor (saurópodos, ornitópodos y terópodos en este caso), rastros bien estudiados permiten asociar pisadas a los individuos que las producen.

Lockley y Matsukawa (1999) sugieren dos criterios importantes para determinar si existe comportamiento gregario: múltiples rastros del mismo tipo sobre la misma superficie o en un intervalo estratigráfico restringido, y líneas de pisadas paralelas que indiquen un sentido de desplazamiento concreto. Además, Lockley (1991) considera que la profundidad de las pisadas es también determinante, puesto que la profundidad del rastro de animales que se desplazan juntos debería ser la misma. Otra hipótesis indica que la presencia de barreras físicas, como la topografía, crean corredores que reducen las direcciones posibles de desplazamiento y dan lugar a “caminos”. 

Respecto a las pisadas que aparecen como acumulaciones sin un sentido de desplazamiento determinado, estas no pueden ser consideradas como una prueba de comportamiento gregario ya que pueden pertenecer al movimiento de un solo individuo en diferentes momentos, o a la presencia de un conjunto de animales confinados en un área sin llegara interactuar como una manada (Ostrom, 1972). 

Si consideramos las pisadas de un mismo afloramiento (situadas sobre la misma superficie y asumiendo que se produjeron al mismo tiempo) se pueden diferenciar cuatro tipos de rastros:

a) Rastros sin orientación preferente (acumulaciones o lo que se conoce como “dinoturbaciones”), que se interpretan en el registro como lugares de convergencia de los individuos o zonas en las que las condiciones ambientales se mantuvieron lo suficientemente estables como para que individuos solitarios pudiesen permanecer allí a lo largo del tiempo. 

b) Rastros del mismo tipo en dos direcciones diferentes, producidos por la existencia de barreras físicas o corredores. Este tipo de pistas requieren un estudio detallado e individualizado para cada conjunto de pisadas.

c) Rastros paralelos del mismo tipo con la misma dirección, que se explican por la existencia de barreras físicas que dan lugar a caminos, o por el movimiento de los animales en grupo o por separado en un sentido determinado.

d) Rastros paralelos producidos por individuos de categorías diferentes, que se interpretan según el modo de alimentación de los animales como evidencias de predación,

Por lo tanto, y en líneas generales, los rastros se pueden dividir en acumulaciones o dinoturbaciones (Fig. 3), que representan el 57,14% de los encontrados, y rastros paralelos (Fig. 2), que representan un 42,86%.

Para este último tipo encontramos en el área de San Martín las únicas evidencias de pisadas de saurópodos, con dos rastros paralelos de misma dirección correspondientes individuos de tamaño medio, y pisadas de ornitópodos en rastros paralelos de una sola dirección. En el área de Barranco de Valdecevillo encontramos tres rastros paralelos de ornitópodos con espaciado constante en los que los rastros laterales se componen por huellas más grandes que las centrales, lo que puede indicar protección de los individuos jóvenes por parte de los adultos. En el área de La Barguilla se observan dos rastros de pisadas de ornitópodos y uno de terópodos paralelo a los anteriores, lo que se puede interpretar como una escena de caza. El área de Peñaportillo es la única en la que se observan rastros heterogéneos, lo que indica que dinosaurios de diferentes tamaños atravesaron la zona en momentos diferentes, y en la zona de La Llaga aparecen pisadas que han sido atribuidas al paso de dinosaurios bípedos indeterminados. 


Fig. 3-. Ejemplos de yacimientos representativos con rastros paralelos. 1. San Martin (1a) Vista del afloramiento. (1b) Rastros de saurópodos (simplificación). 2. Barranco de Valdecevillo. (2a) Vista parcial del afloramiento. (2b) Tres rastros paralelos de ornitópodos (simplificación). 3. Peñaportillo. (3a) Vista del afloramiento. (3b) Cinco rastros paralelos de terópodos (simplificación).


En el caso de las acumulaciones, se observan 13 homogéneas (8 de saurópodos, 4 de ornitópodos y una de terópodos) y tres heterogéneas (una de ornitópodos y dos de terópodos). 


Fig. 4-. Ejemplos de yacimientos con acumulaciones. 1. Soto (1a) Vista del afloramiento. (1b) Dinoturbación producida, supuestamente, por una manada de saurópodos (simplificación). 2. La Era del Peladillo. (2a) Vista del afloramiento. (2b) Acumulación de pisadas de ornitópodos (simplificación). 3. Las Mortajeras. (3a) Vista del afloramiento (3b) Acumulación (simplificación). 


Conclusiones e implicaciones 

La evidencia más aceptada de comportamiento gregario es la existencia de rastros paralelos, aunque se basa en una serie de parámetros concretos: la dirección de los rastros, el espacio entre las series de pisadas, la profundidad de las huellas... Es posible reconocer un comportamiento de manada por la presencia de pisadas del mismo tipo producidas al mismo tiempo, teniendo en cuenta si se producen por avance de los individuos y sucedidas en el tiempo o si son resultado de patrones de comportamiento repetitivo, como en las áreas de cuidado de nidos.

Las opiniones sobre las acumulaciones son bastante diversas, y una de las explicaciones más aceptadas es la de que se corresponden con zonas de convergencia de dinosaurios en las que se forman “cráteres” debidos a que los individuos pisaban en repetidas ocasiones sobre huellas anteriores (Bird, 1944). Sin embargo, esto no despeja por completo las dudas sobre las dinoturbaciones ya que una superficie repleta de acumulaciones no indica necesariamente que existiese un gran número de individuos, aunque sí nos permite saber que fue una zona con gran actividad vital. Por lo tanto, para poder determinar a partir de las dinoturbaciones si hay evidencias de comportamiento gregario es necesario hacer un estudio detallado de las huellas en cuestión ya que no se puede establecer un patrón o tendencia general. 

– Saurópodos: la presencia de evidencias de comportamiento gregario apoyaría la teoría de que estos dinosaurios podían dividirse en pequeñas manadas según su edad (Myers y Fiorillo, 2009). En el área de estudio, las pisadas aparecen aisladas, porque los afloramientos son pequeños o porque los individuos presentaban un comportamiento no gregario, si bien las dinoturbaciones heterogéneas y homogéneas se han interpretado como evidencias de unión en manadas. 

– Ornitópodos: en el área de La Era del Peladillo aparece una banda de acumulación de grandes pisadas hecha, probablemente, por una gran manada, y dos rastros paralelos a esta con la misma dirección y a una distancia constante, lo que es difícil de explicar como algo que no sea comportamiento gregario. A esto se le añade la existencia de asociaciones claras entre rastros de individuos jóvenes y adultos, lo que apoya la teoría de Matsukawa et al (1999) de que los primeros son acompañados generalmente por los segundos.

-Terópodos: las evidencias de rastros paralelos en una y dos direcciones son muy abundantes en la zona de estudio; la explicación más aceptada para estos últimos es, como ya dijimos, la presencia de una barrera física que afecta a la trayectoria de los dinosaurios. Los rastros de una sola dirección se interpretan como la unión de los animales en pequeños grupos (no más de diez individuos) teniendo en cuenta que este comportamiento gregario solo aparece representado por huellas de tamaño pequeño a medio, lo que se explicaría mediante la relación inversa entre el tamaño de los dinosaurios y su tendencia a formar manadas. 


En general, la escasez de pisadas pequeñas de ornitópodos y saurópodos puede deberse a que el ambiente frecuentado por los individuos jóvenes era diferente o que no se conservaron en el registro fósil por otros motivos. Casi todas las huellas pertenecen a Enciso, que fue interpretado como un sistema lacustre o palustre; el hecho de que no existan estudios paleoambientales detallados de las zonas en las que aparecen los rastros dificulta el hallar una correspondencia entre el comportamiento gregario y el ambiente específico ocupado. No existe un estudio completo de la sedimentología y, por lo tanto el paleoambiente, de cada una de las zonas que comprende este estudio, y, además, sería necesario comparar los resultados del área de La Rioja con los obtenidos en Burgos y Soria, ya que pertenecen a la cuenca de Cameros. Aun así, este tipo de estudios proporcionan la clave para inferir la ecología de este tipo de animales a través del conocimiento de su comportamiento en estos ambientes, incluyendo cierta información como el tamaño y tipo de integrantes de la manada, su estructura, la posición de los individuos dentro de ella al moverse, etc. 


El objetivo de esta entrada es concienciar a los lectores (interesados en el tema o que se han equivocado de blog o que, simplemente, han decidido hoy acercarse a la Paleontología) de que los icnofósiles son una parte fundamental del registro fósil ya que, como hemos visto, el no tener en nuestra mano los restos esqueléticos de un animal no impide que podamos conocer cómo vivía, dónde, qué relación tenía con sus semejantes, qué posición ocupaba dentro de un grupo- si es que pertenecía a uno- e incluso su tamaño y edad relativa. 


La Paleontología comprende estudios muy diversos y complejos puesto que lo que busca es igual de diverso y complejo: esbozar ligeramente cómo era nuestro planeta hace miles de años y de qué manera nuestros predecesores lo habitaron y evolucionaron hasta convertirse en lo que somos ahora. 


Referencias 

Bird, R.T., 1944. Did Brontosaurus ever walk on land? Natural History, 53: 61-67. 


Heymer, A., 1982. Diccionario Etológico. Ediciones Omega, Barcelona: 286 p. 

Hickman, C.P., Roberts, L.S., Larson, A., 2002. Principios integrales de zoología. McGraw-Hill/Interamericana de España: 783-802. 

Immelmann, K., Beer, C., 1989. A dictionary of Ethology. Cambridge, Harvard University Press: 336 p. 


Lucas, S.G., 2007. Dinosaurios: Un libro de texto. Edi ciones Omega, Barcelona: xxiii + 280 p.


Sarmiento, F.O., 2001. Diccionario de Ecología de Paisajes, Conservación y Desarrollo Sustentable para Latinoamérica. Editorial Abya- Yala, Quito: 226 p.

sábado, 24 de mayo de 2014

Huellas de dinosaurios y otros icnofauna del Cretácico Kem Kem Beds de Marruecos

Introducción

A mediados del Cretácico, nos encontramos con la edad del Cenomaniano, centrandonos en la región de kem kem, Marruecos, la cual esta provista de un espectacular acantilado de piedra extendiéndose 250 km de longitud en el suroeste de marruecos, comprende una potente secuencia de entre 150-200m de limolitas y areniscas fluviales divididas en unidades superiores e inferiores.
La primera vez que la zona fue explorada fue en la década del 1950 por el paleontólogo francés René Lavocat. Sin embargo cuando de verdad surgió un profundo interés por estudiar y trabajar esta región fue a mediados de 1990, cuando dieron con diversos restos de vertebrados, incluyendo elasmobranquios, peces óseos (actinopterigios, los celacantos, peces pulmonados), tortugas, cocodrilomorfos, pterosaurios, los dinosaurios no avíanos y aves.
Junto a los fósiles de estos vertebrados existe también un rico registro icnológico, sin embargo aún no se ha descrito a fondo.
En la edad del Jurásico y Cretácico, se han registrado importantes huellas en otros lugares de Marruecos, sin embargo la región de Kem Kem nos ofrece el mayor rango de icnfosiles.


Figura 1: Localizacion geográfica de los icnofosiles Kem Kem

Materiales y métodos
En el 1995 se realizaron expediciones al sudeste de Marruecos por la Universidad de Chicago (dirigida por PCS) y en 2008 por la  Universidad College Dublin (dirigido por NI), así el conjunto icnofosil se recogió o fotografió.


Resultados

Huellas de Dinosaurios

En 1996, Sereno et al. cito la existencia de una "zona de impacto" de aproximadamente 80 m de espesor en la unidad superior de las camas Kem Kem, mencionando en particular la presencia de huellas de terópodos, sauropodos y ornitópodos asi  como las impresiones y yesos naturales. En 2008, las impresiones adicionales y yesos naturales fueron descubiertos en la misma zona de la huella durante una expedición dirigida por uno de nosotros (NI). Más recientemente, otros investigadores han comentado sobre la presencia y composición de huellas en la región Kem Kem.
 Hay 3 horizontes que estudiar de la unidad superior Kem Kem, la mejor documentada es una sección situada cerca del pueblo de Er Remlia, donde se descubrieron huellas de aproximadamente 90, 60 y 10 m por debajo de la piedra caliza del Cenomaniano- Turoniano que recubre la zona Kem Kem. El último horizonte, el más cercano al techo de calizas conserva el mayor número de huellas. Su localidad Gara Sbaa contiene el mayor número de huellas las cuales han sido extraídas o aún se conservan unidas a las losas de arenisca en el acantilado
Se encontraron huellas adicionales en la localidad Iferda Timenkherin, a unos 35 km noreste de Er Remlia, y algunas huellas fueron encontradas en otros sitios de la misma zona. La mayoría de las huellas se conservan en la arenisca natural  expuestas in situ, cerca de la orilla.
Los moldes de arenisca rellenos sugieren que los dinosaurios caminaban a través de sustratos fangosos, que se han secado parcialmente, antes o después del paso de los trackmakers. Dando lugar a huellas ocasionales encontradas en la capa de piedra arenisca, lo que sugiere que las condiciones después de la deposición inicial de las arenas sobre el mudstone también fueron favorables para la preservación de las huellas.
Figura 1: Ejemplos de huellas de dinosaurios encontrados en Gara Sbaa


Figura 2: Huellas de terópodo en Gara Sbaa


Pistas de Terópodos
La mayor parte de las huellas recogidas y documentadas en la unidad superior son huellas tridáctilas y se pueden atribuir a los dinosaurios terópodos. Aproximadamente unas 30 de estas huellas eran demasiado grandes para ser extraídas.
Las marcas de las huellas muestran una profundidad considerable desde los 4 a los 17,8 cm, indicando que los pies de los dinosaurios pisaban sobre un sustrato húmedo. 
El rastro que queda por las  pisadas deja un relieve con forma de cuña con estrías. En Algunas de las huellas bien conservadas se pueden observar garras, dedos o talones. Muchas de las huellas se encuentran superpuestas unas sobre otras y son de diferente tamaño.
Las  proporciones de anchura y longitud son también variables, desde los 67 cm hasta los 105, estas dimensiones sugieren que las pistas puedan pertenecer a un único terópodo ichnotaxon.
Dentro de los terópodos Kem Kem ( Carcharodontosaurus , Spinosaurus , Deltadromeus , abelisáuridos),se ha conseguido una información osteológica que se limita a Deltadromeus . Como adultos, todos los terópodos antes mencionados, con la posible excepción del abelisáurido sin nombre, posiblemente referible a Rugops , habrían generado huellas cuyo extremo es más grande, y probablemente el más grande de la gama  observada en la zona de la huella. El rango de tamaño es de aproximadamente 2,5 veces, desde el más pequeño al más grande .La mayoría de las huellas, por lo tanto, fueron generadas por individuos subadultos de los géneros antes mencionados.
 
Pistas de Saurópodos
Las huellas de saurópodos son extremadamente raras en esta zona, a pesar de la aparición de fragmentos de huesos de saurópodos rebbachisaurid entre los fósiles recuperados de la región Kem Kem. Se han identificado dos  moldes de huellas de saurópodos y se observó también una posible huella de saurópodomanus-pes ,esta es de  23 cm de profundidad, mide 53 cm de ancho y 31cm de longitud. La huella tiene lados casi verticales marcadas por surcos poco profundos o con una textura de crestas bajas verticales. Vista lateralmente se observan 5 lóbulos distintos que representan los extremos distales de los metacarpianos y carecen de falanges. Sus impresiones del dedo del pie se reducen a las almohadillas digitales, lo que sugiere que sea perteneciente a un animal que carece de dígitos o son muy reducidos por lo que es poco probable que represente a un thyreophoran.
El tamaño medio de las huellas de saurópodos mide 81 cm y 68 cm para los ejes mayor y menor. Las huellas pedales no son tan diagnosticas como lo son las manuales, y pueden haber sido generadas por una gran diversidad de neosaurópodos.
Figura 3: impresión de la huella delantera de un Saurópodo


Pistas de Ornitópodos

Dar con pistas de ornitópodos es difícil en la region Kem Kem, hasta el momento solo se ha hallado una posible impresión de ornitópodo, estas pistas son reconocidas como ornitópodos por 3 impresiones divergentes y dígitos subiguales que forman un esquema en forma de hoja de trébol. El espécimen mas grande del grupo ornitópodo fue descubierto en 1995, destacado por sus líneas claras y tamaño considerable de unos 50 x 50 cm, donde los dígitos son redondeados y cortos, la profundidad máxima de impresión es de 8 cm aproximadamente.
Una segunda pista fue encontrada, posiblemente hecha por un TrackMaker ornitopodo. Aunque tiene algunas similitudes con pistas de terópodos, los bordes redondeados de los dígitos y las huellas amplias y grandes favorecen que pertenezca a un ornitópodo.En tamaño y forma se puede asemejar la pista con la del Iguanodon. 
Belvedere et al.  informó recientemente sobre tres pistas halladas en Gara Sbaa que consideraban que pertenecían a ornitópodos.

Figura 4: Pistas de Ornitópodo


Discusión
La región Kem Kem registra la transición de la exposición subaérea completa y la erosión de las rocas paleozoicas subyacentes a las condiciones totalmente marinas en la suprayacente ricas en piedra caliza. Las huellas son poco comunes dentro de la unidad de arenisca gruesa. Además de las madrigueras verticales, las huellas más abundantes son las de invertebrados osteophagous  en huesos expuestos de forma subaerea.
La unidad de superior Kem Kem refleja la Influencia marina observada cada vez mejor por la presencia de barro, "ropa de cama Flaser", y ropa de cama heterolítica inclinada. La zona superior de trazas refleja la energía decreciente del sistema, así como la creciente influencia marina. Los restos de invertebrados de la parte superior Kem Kem incluyen Conichnus , un mar-anémona; Scolicia , senderos gasterópodos; madrigueras horizontales posiblemente representando Beaconites antarcticus ; y, madrigueras sub-verticales cortas, rastros pertenecientes posiblemente al cangrejo violinista o los organismos similares de vivienda. 
 La persistencia de los dinosaurios representados por pistas en común dentro de la parte superior Kem Kem refleja el aspecto de transición de la secuencia.
La prevalencia de icnofósiles en la unidad superior de la región Kem Kem puede ser consecuencia de una sedimentología más heterogénea de grano fino, que puede haber facilitado la preservación. Los horizontes de la huella, que varían de uno a tres en las secciones de la unidad superior y no son continuos durante kilómetros, representan las condiciones locales favorables a la preservación de las huellas fósiles.

Referencias
  1. 1.Sereno PC, Dutheil DB, Iarochène M, Larsson HCE, Lyon GH, et al. (1996) Predatory dinosaurs from the Sahara and Late Cretaceous faunal differentiation. Science 272: 986–991. doi: 10.1126/science.272.5264.986
  2. 2.Lavocat R (1954) Reconnaissance géologique dans les hammadas des confins algéro-marocains du Sud. Notes Mém. Serv. géol. Maroc 116: 1–148.
  3. 3.Lavocat R (1954) Sur les dinosaures du Continental intercalaire des Kem-Kem de la Daoura. In: 19ème Congrès géologique International, Alger, 1952, Compt. Rend. session XII-3 15. pp. 65–68.
  4. 4.Sidor CA, Larsson HCE (1997) Unusual crocodylomorph teeth from the Kem Kem beds (Late Cretaceous: Cenomanian) of Southeastern Morocco. J Vert Paleontol 17, 76A.
  5. 5.Dutheil DB (1999). An overview of the freshwater fish fauna from the Kem Kem beds (Late Cretaceous: Cenomanian) of southeastern Morocco. In: Arratia G, Schultze H-P, editors. Mesozoic Fishes 2 - Systematics and the Fossil Record. pp. 553–563.
  6. 6.Wellnhofer P, Buffetaut E (1999) Pterosaur remains from the Cretaceous of Morocco. Paläontol Z 73: 133–142. doi: 10.1007/bf02987987
  7. 7.Broin F de Lapparent de (2002) Elosuchus, a new genus of crocodile from the Lower Cretaceous of the North of Africa. C R Palevol 1: 275–285. doi: 10.1016/s1631-0683(02)00049-0
  8. 8.Yabumoto Y, Uyeno T (2005) New materials of a Cretaceous coelacanth, Mawsonia lavocati Tabaste from Morocco. Bull Natl Sci Mus Tokyo 31: 39–49.
  9. 9.Gaffney ES, Tong H, Meylan PA (2006) Evolution of the side-necked turtles, the families Bothremydidae, Euraxemydidae, and Araripemydidae. Bull Am Mus Nat Hist 300: 1–698. doi: 10.1206/0003-0090(2006)300[1:eotstt]2.0.co;2
  10. 10.Zouhri S, Kchikach A, Saddiqi O, El Haïmer FZ, Baidder L, et al. (2008) The Cretaceous-Tertiary Plateaus. In: Michard A, Saddiqi O, Chalouan A, Frizon de Lamotte D, editors. Continental Evolution: The Geology of Morocco. Springer Verlag, pp. 331–358.
  11. 11.Cavin L, Tong H, Boudad L, Meister C, Piuz A, et al. (2010) Vertebrate assemblages from the early Late Cretaceous of southeastern Morocco: An overview. J Afr Earth Sci 57: 391–412. doi: 10.1016/j.jafrearsci.2009.12.007
  12. 12.Ibrahim N, Unwin DM, Martill DM, Baidder L, Zouhri S (2010) A new pterosaur (Pterodactyloidea: Azhdarchidae) from the Upper Cretaceous of Morocco. PLoS ONE 5(5): e10875 doi:10.1371/journal.pone.0010875.
  13. 13.Belvedere M, Jalil N-E, Breda A, Gattolin G, Bourget H, et al. (2013) Vertebrate footprints from the Kem Kem beds (Morocco): A novel ichnological approach to faunal reconstruction. Palaeogeogr Palaeclim Palaeoecol 383–384: 52–58. doi: 10.1016/j.palaeo.2013.04.026
  14. 14.Ambroggi R, Lapparent AF de (1954) Les empreintes de pas fossiles du Maestrichtien d'Agadir. Notes Serv géol Maroc 10: 43–66.
  15. 15.Masrour M, Pérez-Lorente F, Ferry S, Icame N, Grosheny D (2013) First dinosaur tracks from the Lower Cretaceous of the Western High Atlas (Morocco). Geogaceta 53: 33–36.
  16. 16.Pérez-Lorente F, Hadri M, Boutakiout M (2006) Primeras icnitas de dinosaurio en sur del Alto Atlas Central. Carixiense (Formación de Arhbalou, Goulmima, Marruecos). Geogaceta 40: 159–162.
  17. 17.Ettachfini M, Andreu B (2004) Le Cénomanien et le Turonien de la plate-forme Préafricaine du Maroc. Cretaceous Res 25: 277–302. doi: 10.1016/j.cretres.2004.01.001
  18. 18.Ettachfini M, Souhel A, Andreu B, Caron M (2005) La limite Cénomanien-Turonien dans le Haut Atlas central, Maroc. Geobios 38: 57–68. doi: 10.1016/j.geobios.2003.07.003
  19. 19.Ettachfini M (2008) La transgression au passage Cénomanien-Turonien sur le domaine atlasique marocain. Strata Série 2, 225 p.
  20. 20.Martill DM, Ibrahim N, Brito PM, Baidder L, Zouhri S, et al. (2011) A new Plattenkalk Konservat Lagerstätte in the Upper Cretaceous of Gara Sbaa, south-eastern Morocco. Cretaceous Res 32: 433–446. doi: 10.1016/j.cretres.2011.01.005
  21. View Article