Mostrando entradas con la etiqueta celurosaurios. Mostrar todas las entradas

lunes, 30 de abril de 2018

El hermano mayor del Oviraptor.


Hoy volvemos con una nueva entrega sobre Oviraptor, y es que este dinosaurio no deja de darnos guerra. 
En esta nueva entrada hablaremos de un nuevo dinosaurio cenagnatídico hallado en Shandong, China. Específicamente en el llamado Grupo Wangshi, que es una formación geológica cuyos estratos se remontan al Cretácico Superior, y entre los fósiles que se han recuperado de la formación se encuentran restos de dinosaurios.
                         
                     Imagen relacionada


Una pregunta que os estaréis haciendo es qué tiene que ver este dinosaurio con nuestro ya famoso Oviraptor. Bien, nos remontamos a un poco de historia para introducirlo. 

Los cenagnátidos (Caenagnathidae) son una familia extinta de dinosaurios terópodos oviraptorosaurianos, que vivieron en el Cretácico superior, en lo que hoy es Asia y Norteamérica. Caenagnathidae es una familia de dinosaurios miembros de la Oviraptorosauria, y parientes cercanos de la familia Oviraptoridae. Como otros oviraptorosaurios, los cenagnátidos tenían picos especializados, cuellos largos, y colas cortas, y habrían estado cubiertos de plumas. La familia fue nombrada originalmente por Charles Hazelius Sternberg en 1940 como una familia de aves no voladoras, pero el descubrimiento de esqueletos de oviraptores relacionados, reveló que en realidad eran terópodos no aviares.

Imagen relacionada

En el artículo (escrito por Yilun Yu, Kebai Wang, Shuqing Chen, Corwin Sullivan, Shuo Wang, Peiye Wang y Xing Xu) “A new caenagnathid dinosaur from the Upper Cretaceous Wangshi Group of Shandong, China, with comments on size variation among oviraptorosaurs”; como el título indica, este nuevo dinosaurio cenagnátido ofrece comentarios o información sobre la variación de tamaño entre Oviraptor.

Introducción a la investigación.

Durante la última década se han organizado varias excavaciones importantes en el Grupo Wangshi del Cretácico Superior en tres localidades de la provincia de Shandong, China. Aquí se describió un nuevo espécimen de terópodo de la localidad de Kugou. El espécimen comprende solo una extremidad posterior izquierda parcial, pero sin embargo, muestra una combinación única de características morfológicas que sugieren la presencia de cenagnátidos oviraptorosaurios previamente desconocido en la fauna de dinosaurios Zhucheng. Este nuevo descubrimiento, junto con los restos fósiles previamente reportados, proporciona una fuerte evidencia que apoya una estrecha relación biogeográfica entre la fauna del dinosaurio Zhucheng y los contemporáneos norteamericanos.
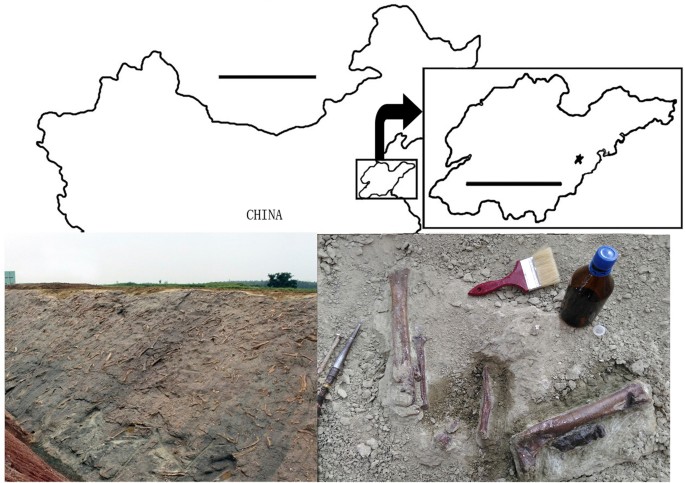
 Figure 1

Oviraptor son unos terópodos maniraptorianos caracterizados por un cráneo corto y alto, cuello largo y cola corta. Aquellos que son derivados se pueden dividir en dos grupos: los Caenagnathidae y los Oviraptoridae. Los taxones de cenagnátidos más conocidos, incluyendo Anzu wyliei, Caenagnathus collinsi, Chirostenotes pergracilis, Apatoraptor pennatus y Microvenator celer, fueron recolectados en Norteamérica y otros en Asia, entre los cuales destaca el enigmático Gigantoraptor erlianensis.

Los lechos óseos del Grupo Wangshi del Cretácico Superior en Zhucheng, Shandong, China, reportaron un nuevo Oviraptor, Anomalipes zhaoi. La posición sistemática de este espécimen fue evaluada por tres análisis numéricos cladísticos basados en conjuntos de datos filogenéticos de terópodos recientemente publicados, con la inclusión de varios caracteres nuevos. Anomalipes zhaoi se diferencia de otros cenagátidos conocidos por tener una combinación única de características: una cabeza femoral estrecha con una orientación posterior significativa; una cresta lateral presente en la superficie lateral femoral; el metatarso III con una superficie articular proximal triangular; y el pedal II ungulado con un surco lateral más profundo. El holotipo de Anomalipes zhaoi es más pequeño que el típico de Caenagnathidae, pero más grande que el del otro gran subclado ovirraptorosauriano, Oviraptoridae. 

Resultados.

Un cuello femoral distinto, definido dorsalmente por una concavidad de orientación anteroposterior, separa el trocánter mayor de la cabeza femoral; es una característica que se observa en Oviraptor. El trocánter mayor también se expande al punto de ser considerablemente más ancho que la cabeza del fémur. En terópodos basales, el trocánter mayor es anteroposteriormente más estrecho que la cabeza femoral.
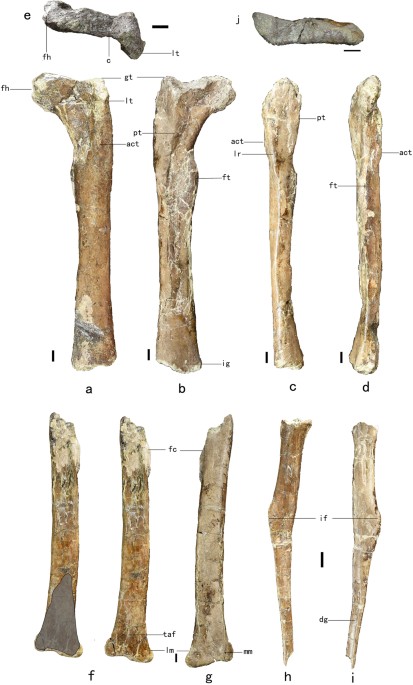
En el contexto de Maniraptora, Anomalipes zhaoi muestra varios rasgos que sugieren afinidades pennaraptorianas. Por ejemplo, el trocánter femoral menor tiene forma de dedo y se adhiere al trocánter mayor. Esto contrasta fuertemente con la condición de la mayoría de los terópodos no peninsulares. 
 
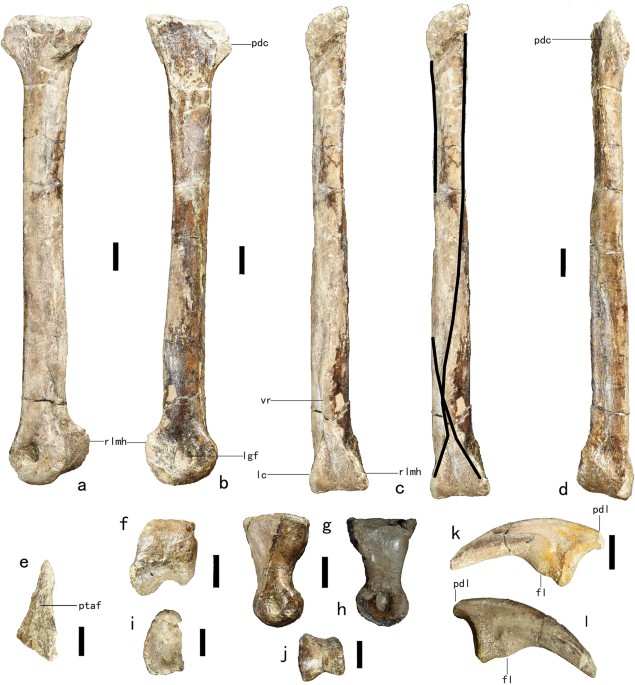
 Figure 2         Figure 3


Entre los principales grupos pennaraptorianos, Anomalipes zhaoi muestra las semejanzas morfológicas más claras con la de Ovirraptorosaurios. Por ejemplo, un trocánter accesorio alargado está presente, como en muchos Oviraptor basales y caenagnátidos.

El material limitado, y en particular la falta de material craneal, en el holotipo y en el único espécimen conocido de Anomalipes zhaoi dificulta la identificación de características cenagnátidas llamativas en esta especie. 
Sin embargo, algunos estudios recientes proporcionan nueva información significativa sobre la morfología de las extremidades posteriores de los cenagnátidos, que puede utilizarse para confirmar las afinidades de estos con Anomalipes zhaoi. En general, los cenagnátidos poseen un miembro posterior alargado con una tibia particularmente larga, y un pie con un metatarsiano proximal fuertemente pellizcado.

En Anomalipes zhaoi, los segmentos inferiores del miembro posterior parecen relativamente alargados, lo que se asemeja más a la condición de los cenagnátidos que a la de Oviraptor. Este carece de un pie arctometatarsiano típico, pero su metatarsiano III tiene un extremo proximal fuertemente comprimido transversalmente, lo que sugiere que el pie era incipientemente arctometatarsiano. El pie compacto en Anomalipes zhaoi, que es típico de los caenagnátidos pero no de Oviraptor, se indica aún más por la delgadez relativa del metatarso III, que muestra una relación entre la longitud y el ancho transversal del eje central. 
El miembro posterior de Anomalipes zhaoi carece de algunas características de fusión que normalmente se observan en los caenagnátidos. Lo más sorprendente es que Anomalipes zhaoi parece poseer crestas cruzadas en la superficie posterior del metatarso III, una característica que recientemente se ha identificado como exclusiva de algunos cenagnátidos. 
En general, la morfología de las extremidades posteriores de Anomalipes zhaoi es consistente y sugestiva de una posición filogenética entre los caenagnátidos basales.
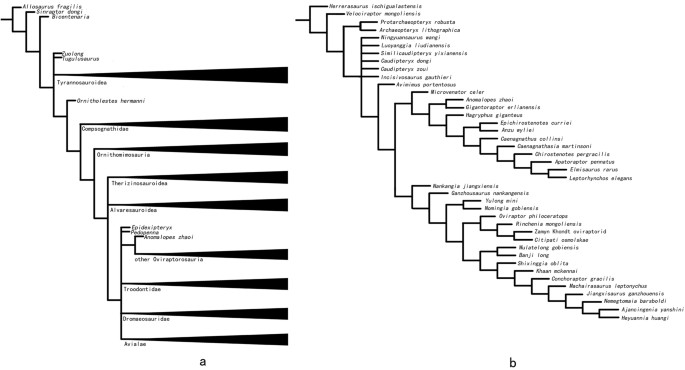

 Figure 4

El hecho de que el análisis filogenético de la matriz Lamanna y de las matrices Funston y Currie haya recuperado Anomalipes zhaoi y Gigantoraptor erlianensis como clado endémico de Oviraptor asiáticos merece una mención especial. 
A pesar de sus tamaños muy diferentes, Anomalipes zhaoi y Gigantoraptor erlianensis comparten muchas similitudes, incluyendo varias que son únicas entre Oviraptor. Estas características únicas compartidas incluyen: cabeza femoral con fuerte desviación posterior; cresta más gruesa y anteriormente más alta que posterior; trocánter posterior prominente; y metatarso III cerca del extremo proximal, con un surco longitudinal en la superficie articular distal.


Conclusiones.

La evolución del tamaño ha sido explorada previamente en los dinosaurios en su conjunto, y en los subgrupos de dinosaurios. Algunos estudios han revelado que Oviraptor y muchos otros clados celurosaurios, han sido ancestralmente relativamente pequeños en tamaño corporal. Un estudio exploró más a fondo la evolución del tamaño en varios subgrupos de terópodos herbívoros, incluidos los del género Oviraptor, y no encontró evidencia de evolución del tamaño direccional en estos grupos.
Aunque no se intentó evaluar cuantitativamente las tendencias en la evolución del tamaño corporal de Oviraptor, la considerable disparidad de tamaño existente entre estos llevó a compilar un conjunto de datos que contiene estimaciones de la masa corporal para tantas especies de Oviraptor como fuera posible, utilizando una relación basada en la longitud femoral. 

Aunque esta ecuación probablemente produce estimaciones que son menos precisas que las generadas por ecuaciones empíricas recientemente desarrolladas que se basan en otros parámetros, no obstante se consideró que la ecuación escogida era la apropiada para el estudio, dado que las mediciones de longitud están fácilmente disponibles y que el objetivo central es revelar las diferencias de tamaño entre los taxones de Oviraptor en lugar de producir necesariamente estimaciones de tamaño absoluto de máxima precisión. 
Las estimaciones de masa corporal de este estudio para Oviraptor basales oscilan entre 5 y 18 kg, mientras que las de los cenagnátidos oscilan entre 3 y 3234 kg (la mayoría de las especies superan los 49 kg) y las de Oviraptor entre 11 y 85 kg (la mayoría de las especies superan los 30 kg). 
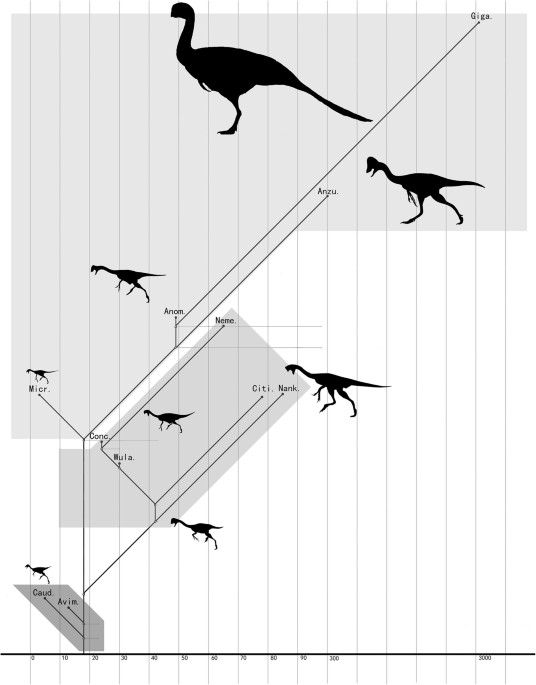

 Figure 5
 
Aunque estos valores están sujetos a incertidumbre, demuestran claramente que en general  Oviraptor de tipo basal son relativamente pequeños y los derivados son relativamente grandes, con cenagnátidos típicos más grandes que los oviraptores típicos. Además, los datos indican una disparidad de tamaño mucho menor dentro de los Oviraptor que dentro de la familia Caenagnathidae. Estas diferencias sugieren un rango más amplio de estrategias de crecimiento y nichos ecológicos en los caenagnátidos en comparación con los oviraptores, lo cual podría ser considerado en estudios futuros.

Referencias.


  • Scientific Reports, volume 8, Article number: 5030 (2018). "A new caenagnathid dinosaur from the Upper Cretaceous Wangshi Group of Shandong, China, with comments on size variation among oviraptorosaurs" http://www.nature.com/articles/s41598-018-23252-2

miércoles, 11 de junio de 2014

Los Terópodos

Introducción
Los terópodos, son un suborden de dinosaurios saurisquios que vivieron desde el Triásico superior hasta el Cretácico superior(hace aproximadamente entre 228 y 65 millones de años, desde el Carniano hasta el Mastrichtiano), en lo que hoy es América, Europa, África, Asia, Oceanía y la Antártida. No obstante la extinción de finales del Cretácico, este orden ha pervivido hasta nuestros días bajo la forma de las aves modernas, sus directos descendientes.
La palabra terópodo quiere decir “pie de bestia” y como los sauropodomorfos y los ornistiquios, los terópodos tienen su origen durante el Triásico al evolucionar desde formas semejantes a los ornitodiros lagosúquidos. El terópodo más primitivo encontrado es Herrasaurus y aunque muchos autores no lo han considerado como un verdadero terópodo, ya que este conservaba rasgos antiguos, de una forma semejante a el, surgieron los verdaderos terópodos, en un primer lugar los Ceratosaurios y los Carnosauridos durante finales del Triasico, y los Allosauridos durante principios del Jurasico, junto con otros tipos durante el Cretacico.
La mayoría de los terópodos mantuvieron la postura bípeda carnívora, pero evolucionaron hacia una gran variedad de formas y tamaños siendo los mas espectaculares de todos los que originaron las aves.
Hasta los años 80 los terópodos se dividían en dos grupos según su tamaño; los pequeños y agiles eran los Celurosaurios, que fueron los que originaron las aves, mientras que los grandes predadores como el Allusaurus se agrupaban en los Carnosaurios, que evolucionaron de los Celurosaurios primitivos.Esta clasificación decayó tras el descubrimiento de un terópodo de tala media durante los 60 y 70 llamado Deinonychus. Asi una de las clasificaciones más aceptada es la que vemos a continuación.


Características de los terópodos:
· Dientes normalmente comprimidos lateralmente, curvados con los dos extremos serrados.
· Articulación intramandibular presente, extremo posterior del hueso anular en posición anterior al articular, unión entre palatino y maxila extensa.
· Cráneo neumatizado, cavidades nasales que comunican lateralmente con un gran divertículo en la fosa anterorbita, otros divertículos se extienden por el palatino y los huesos periorbitales, otros divertículos presentes desde la garganta al oído medio y caja craneal.
· Hueso lacrimal que se extiende hasta la zona superior del cráneo.
· El hueso opistótico siempre se encuentra fusionado al occipital.
· Normalmente 23 vertebras presacrales.
· Epipofisis prominentes en las vértebras cervicales.
· Escapula con forma de correa, larga y estrecha, huesos bastante neumatizados, como las costillas, vertebras…
· Humero menor del 50% la longitud del fémur.
· Metacarpos porosos para la fijación de ligamentos, falanges de la mano alargadas, perdida o reducción de los dedos 4 y 5.
· Garras largas, curvadas y afiladas.
· Mayor diversidad que los dinosaurios herbívoros pero las especies menos localizadas especialmente.

Los terópodos basales
Los Herrerasauridae son considerados los dinosaurios más primitivos, vivieron durante finales del Triásico y no llegaron al Jurásico.
Hay polémica sobre si deben ser considerados terópodos primitivos o antecesores de las dinosaurios presaurisquios.
Ya que presentan rasgos intermedios entre ambos. Medían entre 2 y 11m, tenían dientes curvados y puntiagudos, cuello corto y brazos y patas largos. Huesos de la cadera inclinados hacia la parte posterior como los de los Ornistiquios y el pubis todavía en el extremo tenía forma de bota como los terópodos avanzados.
Los huesos de las patas tenían algunas similitudes también con los de los Saurópodos, por lo que también podrían haber sido los Herrerasauridos sus antecesores.
La especie característica es la representada a continuación, Herrerasaurus ischigualastensis.


Los siguientes grupos que surgieron a continuación se consideraron verdaderos terópodos y se agrupan bajo el término de Neotheropoda. El grupo mas primitivo de los neoteropodos son los Ceratosauria, que vivieron desde finales del Triásico a finales del Jurásico que se extinguieron.
A menudo presentaban sobre sus cabezas crestas que posiblemente se empleaban en luchas con machos rivales. A este grupo pertenece también Coelophysis, un dinosaurio del que se han encontrado multitud de esqueletos, algunos completamente articulados. Tras su estudio las teorías creadas apuntan a un posible viviparismo y canibalismo.

Los coelofísidos y los neoceratosaurios forman un grupo evolutivo (Ceratosauria) que se desmarca de las líneas posteriores de terópodos que se agrupan bajo el nombre de Tetanurae. Se ha sugerido que estos dos grupos pueden no formar una línea evolutiva apartada del resto de terópodos, ya que algunos caracteres evolucionados encontrados en los neoceratosauros no se encuentran en los coelofísidos, por lo que los neoceratosaurios podrían estar más cercanos a los tetanurinos que a los coelofísidos.
Los tetanurinos o "colas tiesas" son un grupo de líneas evolutivas paralelas que parecen haber evolucionado hacia formas cada vez más avianas que aparecieron a principios del Jurásico. Por ejemplo, sus cajas torácicas indican que tenían un sistema sofisticado de sacos pulmonares como los que tienen las aves actuales. Se deduce de esto una alta tasa metabólica que parece indicar la aparición de una cierta endotermia.
Esta rama evolutiva incluye a las aves y a los más clásicos terópodos, como el Allosaurus y el Tyrannosaurus. Todos ellos perdieron el dedo IV de la mano, su maxila estaba enfrente de los ojos, la escápula tenía forma de cinta y la fíbula se había reducido enormemente, además de otros caracteres que indican una ascendencia común. Se ha tendido a dividir a los tetanuros en otros dos grupos evolutivos, los Carnosaurios y los Coelurosaurios, aunque son más bien cajones desastre en los que se reúnen formas muy diferentes.
El primer grupo que se separó de los tetánuros fueron los Torvosauroidea, también conocidos como Megalosaurios. Evolucionaron desde un antepasado común con los ceratosaurios durante 
finales del Triásico y parecen haber sido los grandes predadores durante mediados del Jurásico hasta que fueron desplazados por los Allosauridos; sus formas durante el Cretácico eran semiacuáticas y piscívoras, confinadas principalmente a Gondwana.  Desparecieron a principios del Cretácico. Representan un grupo temprano que no encaja con los ceratosaurios y los otros tetanuros, aunque la tendencia actual es a considerarlos como un grupo primitivo de los tetanuros; durante mucho tiempo fueron incluidos dentro de los Carnosaurios. Los Torvosaurios o megalosaurios se dividen en tres familias, la Megalosauridae, Spinosauridae y Eustreptospondylidae, pero sólamente hablaremos de las dos primeras.


Los aveterópodos
Los aveterópodos consitituyen la línea evolutiva que continúa tras la escisión de los Torvosauroidea de los tetanuros. Básicamente, los Avetheropoda constituyen las líneas de los terópodos avanzados, las aves y los allosauridos, como se ve en el árbol evolutivo del principio de la página.
A mediados del Jurásico se separó la primera línea, los Carnosaurios, que actualmente están formados únicamente por los Allosauridos. Antiguamente los carnosaurios englobaban a todos los terópodos de gran tamaño, incluido el Tyrannosaurus, hoy día, el término Carnosaurio se refiere más a un ecotipo que a un grupo evolutivo y que estaría formado por grandes terópodos carnívoros, con grandes cráneos, cuellos cortos y pequeños miembros delanteros.
El grupo de los Alosauridos, originado a principios del Jurásico, está formado por tres familias que forman un grupo monofilético, y que son Sinraptoridae, Allosauridae yCarcharodontosauridae.
    ·  Los Sinraptoridae son los alosauridos más primitivos, ya que aparecieron a principios del Jurásico en China. Presentaban numerosas crestas elaboradas sobre la cabeza (figura derecha, Sinraptor dongi). 
 ·  Los Allosauridae evolucionaron desde un antepasado común con los sinraptores y los desplazaron durante el Jurásico superior. Los dos grupos eran bastante semejantes en tamaño y apariencia, siendo las diferencias entre ambos pequeños detalles. A este grupo pertenece el tan conocido Allosaurus además de otros comoNeovenator, Valdoraptor. Allosaurus fragilis fue uno de los mayores carnívoros de su época hasta que aparecieron los Tyrannosauridos 50 millones de años después. Sus largas y musculosas patas traseras soportaban las casi dos toneladas de peso de un enorme cuerpo; la cola contrarrestaba el peso de la parte delantera del cuerpo, donde un cuello grueso con forma de S sujetaba la cabeza, con sus inmensas mandíbulas provistas de dientes largos, curvos y aserrados. 
 ·  Los Carcharodontosauridae fueron parientes de los anteriores y florecieron en Gondwana durante el Cretácico. En esta familia se agrupan los mayores carnívoros que poblaron la Tierra, superando incluso el tamaño que posteriormente alcanzó Tyrannosaurus. Su cabeza era larga y estrecha, los dientes rectos, a modo de cuchillos. A este grupo pertenecen Bahariasaurus, Carcharodontosaurus, Giganotosaurus y posiblementeAcrocanthosaurus, aunque es considerado por algunos como perteneciente al grupo anterior.


Siguiendo el árbol evolutivo, la línea que queda tras la escisión de los carnosaurios en los aveterópodos es la de los Coelurosauria. Inicialmente este término englobaba todos los dinosaurios de pequeño tamaño, desde Coelophysis a Ornithomimus, de la misma forma que Carnosauria incluía a los mayores.
El primer grupo que se separó de los Celurosaurios es la familia de los Compsognathidae, a finales del Jurásico. Compsognathus longipes medía apenas alrededor de un metro de longitud y pesaba unos 3.5 kg; tenía una cabeza larga terminada en un hocico pronunciado. Sus restos se encontraron en un yacimiento alemán.
Ornitholestes hermanii y Coerulus fragilis continuaron la línea de los aveterópodos; el primero era un carnívoro de unos 2 m y 25 kg, con una cola que llegaba al metro de longitud y una cabeza pequeña pero con una mandíbula fuerte. Coerulus era más o menos similar de tamaño, pero se diferenciaba por su cabeza más corta y alta que la del anterior además de un cuello más largo. Ambos fueron encontrados en Norteamérica y vivieron durante el Jurásico Superior. Considerados ya Maniraptoriformes, una forma semejante a ellos, posiblemente Scipionyx, fue la que originó a finales del Jurásico las líneas evolutivas de los Ornitomimosaurios y Tiranosauridos por una parte y la de los Maniraptores por otra.
Los Ornithomimosauria:
Se trata de ligeros terópodos de unos 5 m de longitud, con miembros traseros largos y delgados, cabeza pequeña y cuello largo. Sus mandíbulas eran alargadas y carecían de dientes pero estaban equipadas con un pico córneo. Los miembros anteriores no estaban muy reducidos, su desarrollo era bastante débil; la muñeca y la mano no eran del tipo de agarre de otros terópodos. Vivieron durante el Cretácico. De los géneros más conocidos de este grupo destacamos Ornithomimus y Gallimimus; el segundo podía medir hasta 8 m de longitud y unos 4 de altura. La presencia de un pico quitinoso en Gallimimus puede sugerir una alimentación filtradora herbívora semejante a la de un pato, lo que apoyaría el hecho de los numerosos gastrolitos encontrados en sus estómagos.

Los Tyrannosauroidea:
Constituye junto con la línea anterior un grupo aparte de los Maniraptores y en ella se encuentra el tan famoso Tyrannosaurus rex que vivió durante el Cretácico. Se pueden definir como celurosaurios gigantes más emparentados con los ornitomímidos que con los allosauridos. Fueron de los últimos y más grandes dinosaurios carnívoros; su inmensa cabeza, de alrededor de metro y medio de longitud, tenía una mandíbula provista de dientes de extremos serrados de hasta 15 cm de largo. En comparación con sus miembros traseros, los delanteros eran enanos y tan sólo tenían dos dedos. Se observa una reducción en los terópodos de sus manos delanteras, y en este grupo esta reducción parece haber llegado al máximo y si no se hubieran extinguido al finales del Cretácico quién sabe si las hubieran perdido; las dos especies más evolucionadas del grupo, Albertosaurus megagracilis y T. rex cumplían esta regla y apenas usaban sus manos. Este tamaño de las manos y su tamaño corporal han sido la causa de que se crea que estos animales no alcanzaran velocidades suficientemente altas para realizar ataques y ser verdaderos depredarores, siendo por tanto carroñeros y usarían sus amplias fosas nasales para localizar la comida en descomposición. La polémica está abierta.


Los maniraptores
Consitituyen la otra línea evolutiva que se separó a principios del Cretácico de los Tiranosauridos y Ornitomimosauridos y se define como aquellos dinosaurios más cercanos a las aves que a los ornitomimosaurios. De acuerdo con la clasificación filogenética, las aves descienden de este grupo.
Se caracterizan por tener una serie de elementos modificados en la muñeca, entre ellos la presencia del hueso semilunar, único en este grupo de reptiles, que permitiría un vuelo más seguro. Tienen además las clavículas unidas por una fúrcula, esternón, un pubis que apunta hacia abajo en lugar de tener una posición delantera típica de los saurisquios, una cola corta, brazos largos, manos más largas que los pies y el dedo central de la mano más alargado que el resto. Muchas de estas modificaciones comienzan a preparar la estructura que más tarde permitiría el vuelo.
Como se ve en el árbol del principio de la página, los miembros más aceptados del grupo son los Therizinosaurios y Oviraptores por una parte y los Dromaeosaurios y Troodontidos por otra, además de las aves.

Los Oviraptosauria y Therizinosauroidea:
Los oviraptosaurios eran un grupo de dinosaurios de tamaños variables que vivieron durante finales del Cretácico en Asia y estaban caracterizados por unas mandíbulas sin dientes que formaban un pico córneo; el hueso dental tenía dos apéndices separados por unas grandes aberturas laterales. Son el segundo grupo de terópodos sin dientes y se diferencian de los ornitomimosaurios por la presencia del pico y la configuración de la mandíbula inferior. Estaba dividido en dos familias, de las que la familia Oviraptoridae es quizás la más conocida.

Los therizinosauroideos se diferencian de los anteriores por tener pequeños dientes bulbosos con dentículos alineados paralelos al eje longitudinal del diente, vértebras cervicales muy pneumatizadas y caderas muy anchas entre otros.Therizinosaurus cheloniformis (imagen derecha), de entre 8 y 12 m de longitud y unas 6 toneladas es el miembro más característico de esta familia. Se cree que era un dinosaurio que vivía en ambientes desérticos ya que posee numerosas adaptaciones para estos ambientes; destacar entre ellas las largas garras que se piensa que usaba para excavar en la arena en busca de raíces; además, sus pies casi cuadrados y un bajo punto de gravedad contribuirían a evitar caídas en el suelo tan inestable de las dunas.

Los Troodontidae y Dromaeosauridae:
Aunque estos dos grupos tienen caracteres propios que los eliminan como antecesores de las aves, son sin duda los terópodos avianos más cercanos a las aves.
Los troodóntidos son un pequeño grupo de unas cinco especies poco conocido entre los manirraptores. Eran pequeños terópodos de patas largas que permitían una locomoción rápida, con un gran cerebro en relación al tamaño del cuerpo, cráneos muy neumatizados, numerosos dientes y una garra larga, retráctil y curvada en el segundo dedo del pie, aunque no tan larga como la de los dromeosaurios y que posiblemente no usara para cazar. Una especie representativa es Troodon formosus, un reptil de unos 2 m de longitud que vivió a finales del Cretácico y cuyos restos fueron encontrados en EEUU y México. La característica más sorprendente de este grupo es sin duda su gran cráneo, cerebro y órbitas oculares, dispuestas casi hacia el frente; esto hace pensar en un gran desarrollo de la vista, cuya casi posición binocular les permitiría enfocar y calcular las distancias para cazar los pequeños mamíferos de los que se alimentaría.

Los dromeosauridos 
Eran pequeños y ágiles reptiles carnívoros, de unos 2 o 3 m de longitud. Destacan de ellos la mandíbula musculosa, el esternón osificado, los brazos relativamente largos con manos con capacidad de agarre, un pubis retrovertido y paralelo al isquion, metatarsos cortos y sobre todo, una potente garra en los dedos 2 del pie, curva y retráctil, el doble de larga que la de los otros dedos cuya función era matar las presas. Deinonychus antirrhopus, que ha sido encontrado en Norteamérica en rocas de principios del Cretácico medía unos 3 m y pesaba los 80 kg; su nombre, que significa "garra terrible", hace honor a la potente garra típica del grupo; han aparecido de él más de 8 esqueletos articulados y desarticulados. Velociraptor mongoliensis (a la derecha)aparecío en formaciones de finales del Cretácico en Mongolia y China; tendía el tamaño de un perro, de 1.8 m de longitud y 45 kg de peso y de él se han encontrado más de 6 cráneos y esqueletos completos. Uno de sus fósiles se encontraba asociado con Protoceratops andrewsi, un ceratópsido al cual estaba dando muerte con sus garras, pero tenía sus miembros delanteros en las fauces del Protoceratops. Se diferencia de Deinonychus por su cráneo más bajo y dientes más espaciados. Utahraptor ostrommaysorum, encontrado en los últimos años es un dromeosaurido de gran talla, en torno a los 6 m de longitud y algo más de una tonelada de peso; recientemente se han encontrado fósiles de otros dromeosauridos gigantes.


El origen de las aves y Archaeopteryx
Las primeras protoaves (Archaeornithes) evolucionaron desde pequeños celurosaurios desde finales del Jurásico. Sus pequeñas plumas les permitían un cierto planeo o pequeños vuelos hacia los árboles para evitar ataques de depredadores terrestres. Durante la extinción de finales del Jurásico numerosos dinosaurios de gran talla se extinguieron y quedaron libres numerosos nichos que fueron ocupados por estas protoaves que perdieron en parte su capacidad de vuelo al hacerse predadores terrestres u omnívoros. Otras especies originaron formas más preparadas para el vuelo, y durante los primeros 5 - 10 millones de años del Cretácico sufrieron una gran radiación evolutiva originando gran cantidad de órdenes y familias.
La gran extinción de finales del Mesozoico puso fin a esta especie de jardín del Edén; los dinosaurios, pterosaurios, reptiles marinos y un gran número de aves y mamíferos desaparecieron. Tan sólo sobrevieron entre los arcosaurios una línea de endotermos que llegó al Cenozoico y se conocen como Neornithes o pájaros modernos.

Para hacernos una idea...


Bibliografía:

Paginas de interés:
http://satori.geociencias.unam.mx/27-1/(06)Torres.pdf/

Documentales interesantes acerca del tema:
" Caminando entre bestias" BBC
" Depredadores prehistóricos" BBC
" A la sombra de los dinosaurios" BBC
" El ocaso de los dinosaurios" Discovery channel
" Gigantes del oceano" National Geographic