Mostrando entradas con la etiqueta ecosistema. Mostrar todas las entradas

domingo, 12 de abril de 2020

Incendios en ecosistemas del norte de Suramérica: avances en la ecología del fuego tropical en Colombia, Ecuador y Perú.

Se entiende por desastres naturales aquellos cambios violentos o repentinos en la dinámica del medio ambiente, cuyas repercusiones pueden causar pérdidas como de materiales y de vidas, son producto de eventos ambientales en los que no se halla presente la mano del ser humano, como son los terremotos, inundaciones, tsunamis, volcanes, incendios forestales, entre otros.
Un incendio forestal es un fuego de gran magnitud que se propaga sin control en algún terreno forestal, es decir, conformado básicamente por árboles. A diferencia de otros tipos de incendios, se extiende con suma rapidez a través de amplias áreas, cambia de dirección súbitamente y puede sortear obstáculos grandes como ríos y carreteras. Los incendios forestales tienen un gran poder destructivo. 
 Cada vez más se está reconociendo el impacto de las actividades humanas sobre los ecosistemas, que dan lugar a fuertes modificaciones sobre los patrones espaciales de la biodiversidad y sus servicios a nivel global. 
El fuego puede llegar a ser una perturbación trascendental en muchos ecosistemas naturales, como ocurre en ecosistemas mediterráneos y bosques boreales, así como en algunos ecosistemas tropicales como las sabanas. El fuego afecta de forma drástica la biodiversidad, distribución y abundancia de las especies (Chia et al. 2016), influenciando las redes tróficas (Bustamante et al. 2016).
Puede ser un mecanismo natural en muchos ecosistemas, las acciones humanas han alterado los regímenes naturales, llevando a una pérdida de la capacidad de los ecosistemas para proveer servicios ecosistémicos que a su vez ayuden a reducir la intensidad, magnitud y propagación de incendios catastróficos el impacto de las actividades humanas sobre los ecosistemas, dando lugar a fuertes modificaciones sobre los patrones espaciales de la biodiversidad y sus servicios a nivel global. 

La presencia de incendios en las últimas décadas en los trópicos se ha exacerbado en cuanto a número, extensión e intensidad, debido principalmente al cambio climático y la expansión de la frontera agrícola (Thompson et al. 2013)En Sudamérica, el incremento de incendios recientes está asociado con períodos de sequía (Marengo et al. 2008b, Malhi et al. 2009, Asner y Alencar 2010), en particular en la cuenca del Amazonas donde se ha asociado este aumento con eventos climáticos extremos como El fenómeno del Niño  - Oscilación Sur (ENOS) (Ray et al. 2005, Aragão et al. 2007). La región norte de Suramérica y en particular Colombia, Ecuador y Perú, también han sufrido un incremento en la frecuencia y extensión de incendios, aunque han pasado desapercibidos en la literatura.  
TIPOS DE ECOSISTEMAS SEGÚN SU RELACIÓN CON EL FUEGO

No todos los ecosistemas se relacionan igual con el fuego, desde una perspectiva ecológica algunos se benefician por el fuego y otros se ven gravemente afectados, esta relación varía en cuanto a los regímenes naturales de incendios, y con base en esta se pueden clasificar en ecosistemas sensibles al fuego, dependientes del fuego e independientes del fuego (Hardesty et al. 2005). Podemos categorizar los principales biomas y sus ecosistemas de acuerdo con su relación con el fuego (Fig. 1, Tabla 1). 
Una de las mas importantes fuentes de combustible son las hojas muertas, principalmente de Calamagrostis effusa Steud. Cerca del 80 % de la fitomasa epígea puede consistir en material muerto (Cardoso y Schnetter 1976, Hofstede 1995, Hofstede y Rossenaar 1995). 
Las sabanas naturales de Colombia, ecosistemas de tierras bajas que se caracterizan por una estacionalidad marcada en las precipitaciones y la predominancia de vegetación herbácea, con árboles y arbustos en diferentes densidades de cobertura.

Avances en investigación de los patrones, dinámica y causas de los incendios en Colombia, Perú y Ecuador. 
Colombia: Asociados a los análisis sobre la incidencia del fuego y el uso del suelo en Colombia, Gómez et al. (2014) analizaron la relación entre incendios, cultivos de coca, deforestación y aspectos socioeconómicos, encontrando que la mayoría de los cultivos de coca se encuentran en zonas forestales asociadas con fuego, asimismo encontraron una alta correlación entre el fuego y los cultivos ilegales con la deforestación, revelando el potencial de la detección de fuegos de forma remota para predecir posibles ubicaciones de cultivos de coca.

Perú y Ecuador: En los Andes tropicales peruanos, en los distritos de Cusco, Ayacucho y Puno, se han evaluado los patrones espaciales y temporales de los incendios, el tipo de vegetación afectada y la relación de esta perturbación con las alteraciones en la precipitación, así como las emisiones de carbono asociadas a la quema de biomasa durante 12 años, usando herramientas de teledetección como imágenes satelitales e información de anomalías térmicas (Oliveras et al. 2014). En esta región de Perú la mayoría de los incendios ocurrieron durante la época seca, revelando que el clima es el principal impulsor del régimen de fuego, las mayores emisiones de carbono fueron debidas principalmente a la quema de biomasa en áreas boscosas (Oliveras et al. 2014).
EFECTOS DEL FUEGO
Efectos del fuego sobre el aire y emisiones: Son pocos los avances en investigación en los tres países del efecto de los incendios en el aire, pero existen estudios que ayudan a entender un poco esta dinámica. Anaya (2009) analizó la distribución espacial y temporal del área quemada y las emisiones de gases de efecto invernadero producidas por las quemas de biomasa en Colombia para el periodo 2001 a 2006, con información de datos de campo de carga de combustible y el uso de información satelital, encontrando que las emisiones por biomasa quemada representan la mayor fuente de gases de efecto invernadero del país y proceden en su mayoría de la Orinoquia y el Caribe. Aproximaciones sobre las emisiones de gases producidas por los incendios también se han llevado a cabo en Colombia, Chacón (2015) por ejemplo se evaluó los impactos de los incendios forestales en la calidad del aire de las ciudades colombianas de Bogotá, Medellín y Bucaramanga, encontrando que hay una relación clara entre el número de incendios forestales y las concentraciones de material particulado PM10 y PM2.5 registradas en las tres ciudades. 

Efectos del fuego sobre suelos: El fuego no solo impacta la vegetación sino también a las comunidades edáficas, de tal manera que se pueden ver alteradas en su composición, densidad y diversidad (Chamorro y Soto 1987). Otros estudios, que han analizado el efecto del fuego en los microorganismos asociados al suelo, han reportado efectos negativos en la abundancia y en la fijación de nitrógeno y fosforo de grupos funcionales bacterianos, inclusive hasta nueve meses después de la ocurrencia de la perturbación (Sáenz Meneses 2006), debido a las altas temperaturas en el suelo durante el incendio, a la reducción en la calidad del sustrato, a cambios en el pH y a factores microclimáticos post fuego.Para bosques alto andinos de Colombia afectados por incendios forestales, se ha observado que el fuego ha sido un factor determinante para moldear fitofisionomías de porte bajo dominadas por gramíneas y helechos, entre los que se encuentran el helecho

Andropo-gon bicornis L.
Hypoxis decumbens L
Pteridium aquilinum (L.) Kuhn y las hierbas Hypoxis decumbens L y Andropo-gon bicornis L.  (Fernández-Méndezet al. 2016). 

Pteridium aquilinum (L.) Kuhn


Ulex europaeus L
En el caso de los incendios en ecosistemas de páramo, las quemas asociadas al pastoreo son uno de los factores que influyen en mayor medida en la composición y la estructura de la vegetación en estos ecosistemas (Premauer y Vargas 2004). El fuego, en sinergia con el pastoreo, tiene un fuerte impacto a nivel poblacional sobre la mortalidad de individuos en determinadas clases de edades de frailejones  (Espeletia spp.) (Verweij y Kok 1992, Premauer y Vargas 2004). 

Espeletia spp.
En los páramos, en ausencia de quemas, las plantas de Espeletia tienen una mortalidad menor y esta aumenta a medida que aumenta la intensidad del fuego, cuando se presentan fuegos muy intensos se ven afectados los tejidos fundamentales y las plantas mueren, sin embargo, a bajas intensidades se presenta una mortalidad tardía, probablemente debida a la pérdida de hojas aislantes en el tallo, aumentando la susceptibilidad por congelación (Ramsay 2014, Zomer y Ramsay 2018).
En países como Colombia, Ecuador y Perú, es importante identificar como las actividades humanas y el cambio climático están influenciando procesos como los incendios, los cuales impactan de manera severa la estructura, composición e integridad de los bosques, la diversidad local y el clima global.Se identifican aun vacíos de información que impiden el diseño apropiado de estrategias de conservación que involucren el rol del fuego en los diferentes ecosistemas, por lo tanto, relacionamos a continuación los temas específicos que se consideran que deberían ser abordados en investigaciones futuras.
1. El avance del conocimiento tecnológico en las herramientas de teledetección y en los sistemas de información geográfica, ha permitido reconocer un aumento de la incidencia de fuegos en ecosistemas sensibles o independientes al fuego; 
2. No se tiene claridad sobre el cambio del régimen del fuego en ecosistemas dependientes del fuego, ni hay conocimiento del rol del fuego en las áreas de transición entre ecosistemas sensibles al fuego y dependientes del fuego, como es el caso de la transición sabanas– bosques. 
3. Aunque no se hayan cuantificado las alteraciones del régimen del fuego, se ha identificado que éstas han generado cambios en la composición de especies y estructura de los ecosistemas, cambios que traen consecuencias inciertas para la conservación de la biodiversidad y la provisión de servicios ecosistémicos.

Considerando la dinámica de los ecosistemas y los múltiples factores que intervienen en ella, existe la necesidad de promover investigaciones postfuego que abarquen mayores escalas temporales para caracterizar de forma más precisa la dinámica del fuego y sus impactos negativos o positivos en los ecosistemas.
Referencia: Armenteras, D., González, T. M., Vargas, J. O., Elizalde, M. C. M., & Oliveras, I. (2020). Incendios en ecosistemas del norte de Suramérica: avances en la ecología del fuego tropical en Colombia, Ecuador y Perú. Caldasia, 42(1).
Referencias adiccionales: Bustamante MMC, Roitman I, Aide TM, Alencar A, Anderson LO, Aragão L, Asner GP, Barlow J, Berenguer E, Chambers J, Costa MH, Fanin T, Ferreira LG, Ferreira J, Keller M, Magnusson WE, Morales-Barquero L, Morton D, Ometto JPHB, Palace M, Peres CA, Silvério D, Trumbore S, Vieira ICG. 2016. Toward an integrated monitoring framework to assess the effects of tropical forest degradation and recovery on carbon stocks and biodiversity. Glob. Chang. Biol. 22(1):92–109. 
 Malhi Y, Aragão LEOC, Galbraith D, Huntingford C, Fisher R, Zelazowski P, Stich S, McSweeny C, Meir P. 2009. Exploring the likelihood and mechanism of a climate-change-induced dieback of the Amazon rainforest. Proc. Natl. Acad. Sci. 106(49):20610–20615.
Hofstede R, Rossenaar J. 1995. Biomass of grazed, burned and undisturbed páramo grasslands, Colombia. II. Root mass and aboveground: belowground ratio. Arct. Alp. Res. 27(1):13–18.

domingo, 22 de mayo de 2016

EL FIN DE LA AVENTURA

Puede que los días sean más largos, tal vez se note que ya hace mas calor, incluso es posible que todo esté lleno de flores…  sin darnos apenas cuenta ya termina el curso. Aún queda prácticamente un mes para el verano y este viaje al Pleistoceno, como todas las buenas historias, ha llegado a su fin, pero no sin antes realizar un último esfuerzo, no vamos a librarnos de hacer la última entrada al blog, el final está cerca.


¿POR QUÉ EL PLEISTOCENO?


El Pleistoceno es una época que me resulta especialmente llamativa, está situada entre el periodo temporal que va desde hace 2.588.000 a 11.700 años, por lo que su final fue ‘’prácticamente ayer’’.
En esta época se produjeron las últimas glaciaciones (Svensson et al. 2005), las cuales produjeron modificaciones en paisajes tan espectaculares como por ejemplo los fiordos noruegos, aunque también tenemos paisajes moldeados por glaciares de esta época en nuestro país, esto pudimos verlo con nuestros propios ojos hace ya un año en el campamento de Pirineos (que recuerdos...).


Vista del valle glaciar de La Larri y su característica morfología en U.
  

Existieron especies que pueden resultar emblemáticas de esta época como los ‘’dientes de sable’’ (del género Smilodon), el oso de las cavernas (Ursus spelaeus) o el gran mamut lanudo (Mammuthus primigenius). Esta última especie representa un caso particular, ya que se han encontrado especímenes congelados con un estado de conservación tan bueno que ha permitido secuenciar parte de su genoma.

Mamut Lyuba, presenta un estado de conservación excepcional.

Otro aspecto a tener en cuenta es la aparición del primer ‘’Homo’’, uno de los últimos estudios realizados, sitúa su aparición hace unos 2,8 millones de años (Villmoare et al. 2015), así que prácticamente la evolución de nuestra especie ha ocurrido durante esta época. Por tanto, los sucesos que ocurrieron en ella marcaron nuestra evolución.


¿DE QUÉ HEMOS HABLADO?


Hemos visto que en esta época la Tierra era ‘’un mundo de gigantes’’ ya que tras la extinción de los dinosaurios, los mamíferos sufrieron una gran diversificación y un aumento del tamaño corporal, pues ocuparon los nichos ecológicos que quedaron vacantes (Smith et al. 2010). Vimos como los megaherbívoros eran capaces de afectar al ecosistema mediante la alteración de la vegetación (Bakker et al. 2016) y los ciclos biogeoquímicos (Hobbs, 1996) así como la modificación del albedo terrestre (Zimov, 2005).

La relación establecida con el segundo artículo fue a través de la estructura trófica, ya que en esta primera entrada también se habla de que los grandes carnívoros y su función estabilizadora del ecosistema controlando la abundancia de herbívoros menores y mesodepredadores  (Estes et al. 2011).


En la segunda entrada vimos como los carnívoros eran ‘’la clave del equilibrio’’. En el Pleistoceno la diversidad de los herbívoros era tan grande que de no limitar sus poblaciones se hubiese producido una degradación de su ecosistema, es aquí donde entran en juego los grandes carnívoros y megacarnívoros, que mediante la depredación ejercían el control de las poblaciones de herbívoros y mantenían el ecosistema equilibrado (Ripple & Van Valkenburgh, 2010). Además, las condiciones en el Pleistoceno favorecieron la socialización y la existencia de manadas muy numerosas de carnívoros (Carbone et al. 2009).

En estas dos entradas se habla de un modo más o menos general sobre la ecología del Pleistoceno, hablando de las especies más representativas que vivieron entonces, sus relaciones con el ecosistema y la cadena trófica. También se hace referencia al impacto que ocasionó el ser humano sobre las poblaciones de megafauna, que también fueron afectadas periodos de cambio climático, episodios de incendios, sequías y otras situaciones extremas (Barnosky et al. 2004). Por lo que llegó el momento de hablar sobre los humanos.


Los humanos recorrieron ‘’un largo camino’’ desde su salida de África, es algo que podemos comprobar actualmente, ya que habitan prácticamente en todos los lugares de la Tierra. Aunque existen varias hipótesis, a día de hoy no se tiene la certeza de cómo se ha producido esta gran migración. En el artículo tratado se intenta dar una respuesta mediante un método genético que estudia la existencia y variación de los haplogrupos M y N de las poblaciones de humanos (Kivisild, 2015). Se ha visto que el clima jugó un papel importante, a nivel mundial, las fases de calentamiento tempranas del Maximo Tardiglaciar están asociados a cambios demográficos sustanciales así como a la primera expansión de los humanos modernos en las Américas (Meltzer, 2009).


Es hora de despedirse:

Las despedidas son duras, pero es el mejor momento para hacerlo.

Ha sido un viaje interesante pero también complicado, teniendo que hacer un gran esfuerzo para comprender algunas ideas expuestas en los artículos, por lo que también puedo decir que ha sido un viaje algo movido. La parte bonita ha sido disponer de libertad para escoger los artículos entre los que reunían las condiciones establecidas, algo en lo que pienso que he tenido bastante suerte, ya que he podido tratar temas que me gustan y no me costó especial trabajo encontrarlos (bendito google scholar).
Con todo ello, hacer este trabajo y leer muchos de los otros que se han ido publicando me ha servido para tener una visión más amplia sobre el tipo de trabajo del paleontólogo, que tal vez, al desconocer las investigaciones que se llevan a cabo en este campo no era del todo consciente de la cantidad de información que nos ofrece la paleontología. 


BIBLIOGRAFÍA.

domingo, 10 de abril de 2016

Foraminíferos desastres y oportunistas en el Triásico temprano en el sur de China

HAIJUN SONG(1,2), JINNAN TONG(1), PAUL B. WIGNALL(3), MAO LUO(4), LI TIAN(1) , HUYUE SONG(1), YUNFEI HUANG(5) & DAOLIANG CHU(1)

1-State Key Laboratory of Biogeology and Environmental Geology, China University of Geosciences, Wuhan 430074, PR China
2-State Key Laboratory of Palaeobiology and Stratigraphy, Nanjing Institute of Geology and Palaeontology, Nanjing, 210008, PR China
3-School of Earth and Environment, University of Leeds, Leeds LS2 9JT, UK [1]
4-School of Life and Environmental Sciences, Deakin University, Melbourne Burwood Campus, Burwood, Victoria 3125, Australia
5-School of Geoscience, Yangtze University, Wuhan 430100, PR China

Artículo: "Early Triassic disaster and opportunistic foraminifers in South China" y se ha publicado en la revista "Geological Magazine" / Volume 153 / Special Issue 02 / March 2016, pp 298-315

Introducción

Para los sobrevivientes de las extinciones en masa, su destino puede ser muy variable, pero también hasta cierto punto predecible. Los grupos con altas tasas de extinción antes de la crisis a menudo irradian a tasas elevadas, mientras que después rezagados evolutivos a menudo se recuperan mucho más lentamente. Esto es ejemplificado por el proceso evolutivo de los ammonoideos, un grupo caracterizado por excepcionalmente altas tasas de evolución a lo largo de su historia.
Una de las facetas más interesantes del intervalo post-extinción inmediata es la aparición de organismos oportunistas, normalmente llamados taxones de desastres (Harries, Kauffman & Hansen, 1996; Kauffman & Harries, 1996).
Un total de nueve casos de especies oportunistas de foraminíferos fueron identificadas de las 12 secciones del Triásico inferior en el sur de China, Postcladella kalhori, Earlandia sp., Globivalvulina lukachiensis, Hemigordiellina regularis, Hoyenella spp., Arenovidalina chialingchiangensis, Aulotortus? bakonyensis, Triadodiscus eomesozoicus and Meandrospira pusilla.

Figura 1. La distribución estratigráfica de foraminíferos desastre yoportunista en las secciones inferiores del Triásico: Wufeng, Xiang Kou y Shangsi.

La distribución temporal de los desastres y oportunistas

a) La distribución temporal de los desastres:

En este estudio, se encontró que los foraminíferos desastre ocurrió en el período inmediatamente posterior a la extinción P-Tr (Fig. 2). El grupo Postcladella Kalhori-Earlandia sp., Por lo general dominado por abundantes Postcladellakalhori, Earlandiasp., Lukachiensis Globivalvulina y Nodosaria expolita, se produjo en los estromatolitos en el Dajiang y secciones Cili que siguieron a la última extinción masiva del Pérmico. Este grupo de foraminíferos también se han encontrado en los estromatolitos basales del Triásico en la sección de Dongwan del sur de China (Ezaki, Liu & Adachi, 2003) (Altineretal.1980;Altiner & Zaninetti, 1981; Ünal et al. 2003; Groves, Altiner & Rettori, 2005).
Estos foraminíferos aparecieron con otros taxones desastre como cianobacterias (Ezaki, Liu y Adachi, 2003; Wang et al., 2005), tubos de gusanos poliquetos (Spirorbis) y microgasterópodos (Yangetal.2011). Otro grupo de desastres dominado por Earlandia sp. ha sido identificado por encima del horizonte de extinción del Triásico inferior. Varios picos en la abundancia de Earlandia sp. se han registrado coincidiendo con una extinción abrupta de foraminíferos durante la crisis Triásico temprano.
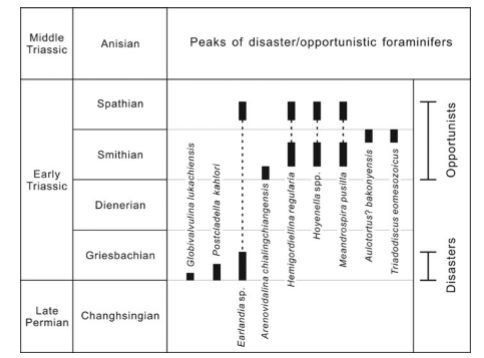
Figura 2. Rangos estratigráficos foraminíferos desastre y oportunista en el sur de China durante el final del Pérmico y el Triásico temprano.

Figura 3. Número de muestras en función del número de géneros en una sección delgada de 2,2 x 2,2 cm2 en el caso de desastres oportunista desde el Triásico Inferior y taxones normales desde el Pérmico superior y el Triásico Medio.

b) La distribución temporal de los oportunistas:

En los estratos Dieneriense del sur de China, no encontramos ningún foraminífero oportunista o de desastre. La fauna oportunista domina dentro de la de Smith y Spathian y se caracteriza por la gran prosperidad Hemigordiellina y Hoyenella (Fig. 2). El número de especímenes de Hemigordiellina y Hoyenella spp. supera 200 en una lámina delgada 2,2 × 2,2 cm2 en algunos niveles en la sección Shangsi (Fig. 3).
El límite inferior del intervalo de la fauna oportunista se define por el horizonte, donde Arenovidalina chialingchiangensis apareció por primera vez. El límite superior del intervalo de la fauna oportunista se define por el horizonte, donde la abundancia relativa del grupo oportunista disminuye a menos del 50%.
Los portunistas smithian se dividen en tres grupos en función de las gamas estratigráficas. El primer grupo dominado por Arenovidalina chialingchiangensis se produjo en la Formación Tongjiez inferior (Fig. 1). El segundo grupo dominado por Hemigordiellina regularis, Hoyenella spp. y Meandrospira pusilla se produjo en la Formación Tongjiezi medio (Fig. 1). El tercer grupo dominado por Aulotortus? Bakonyensis y Triadodiscus eomesozoicus ocurrió en la Formación Tongjiezi superior (Fig. 1). La fauna oportunistas en el Spathian consisten en Earlandia sp., regularis Hemigordiellina, Hoyenella spp. y Meandrospira pusilla (Fig. 2).

Estrategia de supervivencia como respuesta a los ambientes de estrés

Los taxones oportunistas por lo general se aprovechan de situaciones de alto estrés, generando fuertes ambientes fluctuantes como resultado de los cambios dramáticos en los ecosistemas oceánicos. Como tales, son capaces proliferar y producir una expansión de la población C y una rápida dispersión biogeográfica en ambientes estresados (Harries, Kauffman y Hansen, 1996; Kauffman y Harries, 1996).
En este estudio, se encontró que los foraminíferos desastres adquieran  poblaciones relativamente grandes en el intervalo de supervivencia temprana. Son reemplazadas por foraminíferos oportunista y otros sobrevivientes de los primeros en el siguiente período de repoblación. Ambos tuvieron un lapso de tiempo muy corto, y aparecieron en varias ocasiones en el Triásico inferior. Estas camas fósiles por lo general tienen una baja diversidad pero una alta abundancia (Fig. 3).
Las especies 'normales' (incluyendo los foraminíferos Pérmico y Triásico tardío que se han reportado en Song en 2007, 2009, 2011, 2015;. Song, Tong y Chen, 2009, 2011, y algunos no publicados para el Dongling, Meshikou. , secciones  Coli, y Bianyang)  por lo general tienen una diversidad moderada con una abundancia moderada (ver Fig. 3). Estos taxones oportunistas y desastres son muy pequeñas en comparación con las formas pre-extinción (Payne et al 2011;. Song, Tong y Chen, 2011; Regoet al 2.012.). Todos estos rasgos caracterizan a una estrategia de selección de r, es decir, alta fecundidad, tamaño corporal pequeño, corto tiempo de generación y dispersión y amplia descendencia. Cuando las condiciones ambientales tienden a mejorar los K estrategas empezaron a dominar el ecosistema bentónico.

Conclusión

Tres especies de foraminíferos desastre fueron identificados en el período inmediatamente posterior a la extinción en masa P-Tr, i.e.Postcladellakalhori, Earlandia sp. y Globivalvulina lukachiensis. Entre ellos, Postcladella Kalhori y Earlandia sp. También se ha encontrado que las especies de desastre en muchas otras regiones del mundo. Como tal, la floración (en lugar de la ocurrencia) de estas formas de desastre podrían ser utilizados como evidencia de los estratos posterior extinción en el caso de una falta de conodontos y amonoides.
La fauna desastre fue sustituidos por la fauna oportunista en Smithian y Spathian .La fauna oportunista está compuesto por Earlandia sp., Hemigordiellina regularis, Hoyenella spp., Arenovidalina chialingchiangensis, Aulotortus? bakonyensis, Triadodiscuseomesozoicus y Meandrospira pusilla. Esta fauna oportunista son los principales componentes de la fauna de recuperación (véase Song et al. 2011), y la abundancia relativa disminuye a menos del 50% en el  Spathian medio alto, de acuerdo con la mejora de los ambientes marinos.
Foraminíferos oportunistas y desastres a menudo se han encontrado en las secuelas de muchos eventos de extinción en el Fanerozoico. Este fenómeno muestra r-selección, una estrategia usada comúnmente por sobrevivientes para hacer frente a los eventos catastróficos. Después de la crisis, muchos oportunistas viven en áreas limitadas, mientras que otros son propensos a elegir una estrategia de selección de K y se convierten en los grupos dominantes durante el intervalo de recuperación.


Referencias

ALTINER,D.&ZANINETTI,L.1981.Le Triasdans la régionde Pinarbasi, Taurusoriental, Turquie: unités lithologiques, micropaleontologie, milieux de dépôt. Rivista Italiana di Paleontologia 86, 705–60.

EZAKI, Y., LIU, J. & ADACHI, N. 2003. Earliest Triassic microbialite micro- to megastructures in the Huaying area of Sichuan Province, South China: implications for the nature of oceanic conditions after the end-Permian extinction. Palaios 18, 388–402.

EZAKI,Y.,LIU,J.,NAGANO,T.&ADACHI,N.2008.Geobiological aspects of the earliest Triassic microbialites along thesouthernperipheryofthetropicalYangtzeplatform: initiation and cessation of a microbial regime. Palaios 23, 356–69.

GROVES, J. R., ALTINER, D. & RETTORI, R. 2005. Extinction, survival, and recovery of lagenide foraminifers in the Permian–Triassic boundary interval, Central Taurides, Turkey. Journal of Paleontology 79(suppl.), 1–38.

HARRIES, P. J., KAUFFMAN, E. G. & HANSEN, T. A. 1996. Models for biotic survival following mass extinction. In Biotic Recovery from Mass Extinction Events (ed. M. B. Hart). pp. 41–60. Geological Society of London, Special Publication no. 102


KAUFFMAN, E. G. & HARRIES, P. J. 1996. The importance of crisis progenitors in recovery from mass extinction. In Biotic Recovery from Mass Extinction Events (ed. M. B. Hart), pp. 15–39. Geological Society of London, Special Publication no. 102.

LA CLAVE DEL EQUILIBRIO

Como vimos en la anterior publicación, los grandes herbívoros tienen una gran capacidad de alterar los ecosistemas que habitan, pero esto puede ser problemático cuando las poblaciones son altas.
Volvemos al Pleistoceno, donde la diversidad de megaherbívoros era tal que, de no ser limitadas sus poblaciones de alguna manera, se hubiese producido una degradación de su ecosistema, pero grandes carnívoros (21.5–99 kg) y megacarnívoros (≥100 kg) ejercerían el control de las poblaciones de megaherbívoros y, consecuentemente, mantendrían el equilibrio del ecosistema.

Artículo principal: Van Valkenburgh B., Hayward M.W., Ripple W.J., Meloro C., Roth V.L. (2016) The impact of large terrestrial carnivores on Pleistocene ecosystems. Proceedings of the National Academy of Sciences of United States of America, 113: 862–867.

COMPAREMOS:

La importancia de los carnívoros en la modificación de los ecosistemas terrestres es considerablemente subestimada porque su diversidad y tamaño corporal son mucho más reducidos en la actualidad que en el pasado. 

                       Gráfico 1: relaciones de masa corporal.
En el gráfico 1 podemos ver que en general, en el Pleistoceno había más especies con masas mayores de 100 kg (en rojo) las cuales eran especies con habilidades y medios para cazar presas de gran tamaño y en general mas grandes y robustas que las actuales (en azul).


Examinando comunidades de mamíferos se encontró que a medida que aumenta el número de megaherbívoros aumenta también la probabilidad de encontrar en su entorno tres o más hipercarnívoros. De hecho, en las cuatro comunidades fósiles del Pleistoceno que se examinaron se encontró que había de dos a seis megaherbívoros y de cuatro a siete hipercarnívoros.

Una de las hipótesis que explica esta correlación es que la presencia de grandes herbívoros promueve (o permite, al menos) la coexistencia entre grandes depredadores. Dado su tamaño, los grandes herbívoros proporcionan recursos suficientes para bastantes depredadores, pero también es posible que los propios herbívoros modifiquen su entorno hacia condiciones más propicias para el éxito de la caza de los carnívoros (bien porque puedan esconderse en arbustos, bien porque el terreno les facilite la carrera).


En el Viejo Mundo, los megaherbívoros por lo general incluyen mamuts (Mammuthus sp.), rinocerontes (Stephanorhinus sp., Coelodonta sp.) y bóvidos (Praeovibos sp., Bison sp.) (Palmqvist et al. 1996) En América del Norte, la riqueza de especies de megaherbívoros fue aún mayor. En el Rancho La Brea, California, se han encontrado seis megaherbívoros del Pleistoceno tardío: proboscídeos (Mammuthus columbi y Mammut americanum), camello gigante (Camelops hesternus), bisonte (Bison antiquus) y perezosos terrestres (Megalonyx jeffersonii y Paramylodon harlani) (Stock & Harris. 1992). 

Algunos de los hipercarnívoros del Pleistoceno fueron: felinos dientes de sable (Smilodon sp., Homotherium sp.), además parientes mucho más grandes de león actual (Panthera leo spelaea y Panthera leo atrox) tanto en el Antiguo como en el Nuevo Mundo, así como la hiena de las cavernas (Crocuta crocuta spelaea) en el Viejo Mundo y un enorme oso (Arctodus simus) en el Nuevo Mundo.

El tamaño de cuerpo de las presas tiende a crecer con el tamaño del depredador (Sinclair et al. 2003) y, dada la prevalencia de grandes carnívoros en relación con los megaherbívoros, es de suponer que la presión de depredación sobre los herbívoros era mayor entonces que en la actualidad. No obstante, se sabe que ni siquiera los mayores carnívoros atacaban con frecuencia elefantes, hipopótamos o rinocerontes adultos.


Cazadores solitarios... ¿¿O SOCIALES TAL VEZ??

El comportamiento de las especies de depredadores que existen hoy en día sugiere que las condiciones en el Pleistoceno habrían favorecido la socialización y la existencia de manadas muy numerosas. Más allá de permitir el ataque a presas de mayor tamaño, trabajar en grupo permite a la mayoría de depredadores defender a sus presas una vez cazadas de posibles “ladrones de presas”; de hecho, en enfrentamientos observados entre hienas y leones, por ejemplo, salía victorioso el grupo más numeroso.

Dado el número de factores antrópicos que limitan la abundancia de grandes carnívoros (como la pérdida del hábitat, competencia por las presas ó persecución directa) es más probable que la densidad de depredadores y el tamaño de los grupos fuera considerablemente mayor en el Pleistoceno (Ripple et al. 2014). Si esto fuera así, la competencia por las presas ya cazadas habría sido mucho más frecuente y el tamaño del grupo habría sido un factor determinante en la pervivencia de las manadas.

De acuerdo con su morfología y sus parientes actuales, algunos de los grandes hipercarnívoros del Pleistoceno como el lobo gigante (Canis dirus), lobo gris (Canis lupus) y la hiena de las cavernas ( Crocuta crocuta spelaea) fueron sociales por necesidad, ya que no podían abordar una presa grande individualmente. Este hecho junto a que el éxito de la caza aumenta con el número de atacantes permite suponer que, al menos por etapas, algunos o todos los grandes felinos del Pleistoceno fueron sociales. Sin embargo, hay argumentos en favor de la sociabilidad de estos (Carbone et al. 2009) pero también los hay en contra (McCall et al. 2003).

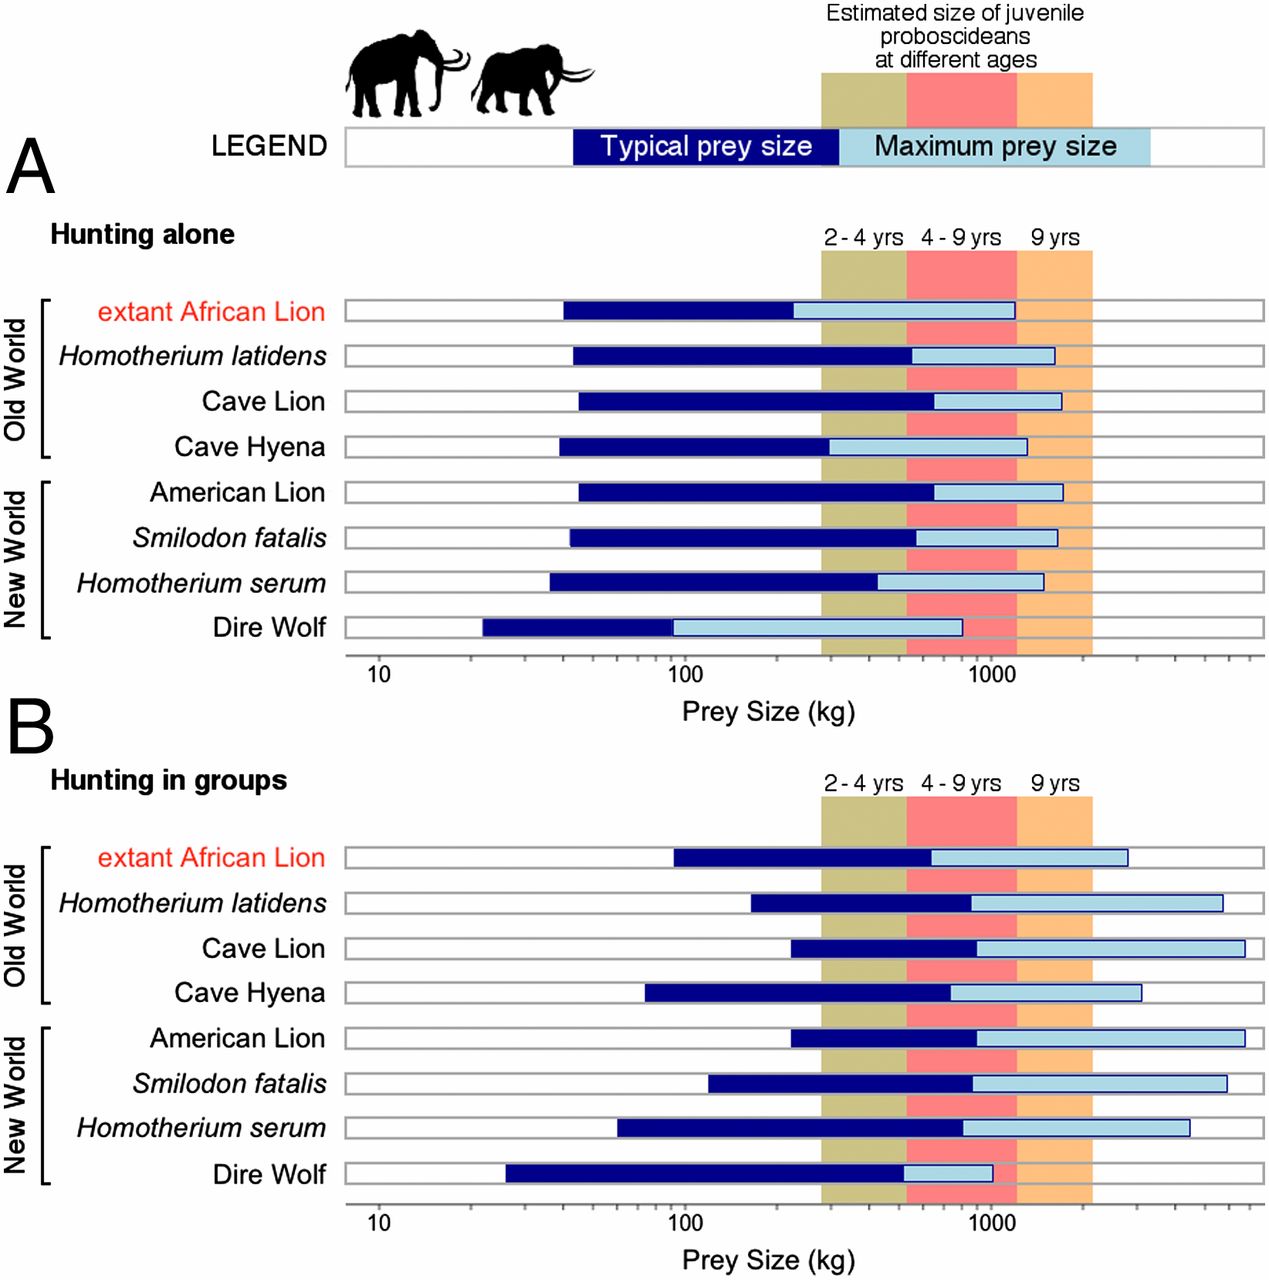
Gráfico 2: tamaños de las potenciales presas.
En el gráfico 2 se comparan los tamaños de las posibles presas que serian capaces de cazar varias de las especies del Pleistoceno con las que es capaz de cazar el león actual. Estas observaciones se han hecho tanto para la caza de forma individual (A) como en grupo (B).
También queda reflejado el tamaño de los proboscídeos según su edad en las columnas de colores.


¿Como afectaban al ecosistema?

Más allá de la capacidad de los hipercarnívoros para cazar megaherbívoros de manera habitual, lo realmente importante para la evolución de los ecosistemas es si los carnívoros eran capaces mediante la caza de limitar las poblaciones de herbívoros (Ripple & Van Valkenburgh. 2010). La opinión generalizada es que “antes de la llegada del ser humano, las poblaciones de mamuts, mastodontes y otros megaherbívoros habrían existido a niveles de saturación donde el número de individuos estaba limitado por la presencia de alimento para todos ellos” (Owen-Smith. 1988).
Probablemente, la caza selectiva de individuos juveniles de estas poblaciones habría intensificado el efecto de los hipercarnívoros sobre ellas, ya que se trata de especies con una tasa de reproducción generalmente baja y, por tanto, muy susceptibles a la presión de depredación.  En casos extremos, la falta de individuos jóvenes habría conducido irremediablemente a la extinción de la especie (Johnson. 2002) mientras que en especies con una tasa de reproducción alta el efecto no hubiese sido tan devastador.

Algunos modelos teóricos sostienen la idea de que las poblaciones de herbívoros de medio y gran tamaño habrían estado limitadas por la actividad de los hipercarnívoros del Pleistoceno (Meloro & Clauss. 2012) pero la teoría es menos clara a la hora de aplicarse a megaherbívoros. Basándose en estudios sobre el elefante africano, no está del todo claro si la propia especie puede autorregularse y mantener de forma autónoma un número estable de individuos sanos (Gough & Kerley. 2006).

Lo más probable es que los hipercarnívoros hayan limitado las poblaciones de algunos megaherbívoros mediante su depredación continua (Ripple & Van Valkenburgh. 2010), pero que haya sido solamente uno de muchos factores concurrentes. Sequías periódicas pueden afectar de manera muy severa a las poblaciones de elefantes o de rinocerontes, especialmente a individuos jóvenes o preadultos.

En el caso de los humanos el impacto de su aparición sobre los megaherbívoros (Barnosky et al. 2004) se habría visto fuertemente incrementado sobre especies que ya sufrían una presión de depredación cercana a su límite soportable y habría estado apoyada por episodios de incendios, sequías u otras situaciones extremas.


Al tratar con comundidades extintas es muy difícil averiguar ciertos comportamientos (algunos de ellos tan básicos como la socialización de estas especies), los cuales podemos tratar de inferir a través de los comportamientos de las especies actuales.  
Muy probablemente los carnívoros mantuvieron el débil equilibrio de un ecosistema que una vez llegado el ser humano no pudo recuperarse, por lo que una vez mas deberíamos atender a las valiosas pistas que nos ha dejado el pasado para de este modo llevar a cabo una conservación eficaz de la fauna actual y así proteger los procesos ecológicos que tienen lugar entre los grandes mamíferos actuales.


BIBLIOGRAFÍA.