domingo, 22 de mayo de 2016

La unión de todo

Tengo una mala noticia para mis queridos lectores, y es que hoy concluye mi última entrada de blog. Todas mis entradas se han centrado en hallazgos en distintos yacimientos de España. Todo esto me hace reflexionar sobre la importancia de los yacimientos españoles para la paleontología y los distintos ámbitos que lo relacionan con la geología. Además de ello contamos con numerosas investigaciones en otras áreas del mundo que guardan relación con lo hallado en yacimientos españoles.

... y ¿a qué nos lleva todo esto?

Recordemos que hubo una época en las que el planeta azul tenía otras características climáticas y los continentes se encontraban de manera diferente a la actual. Todo ello aún sigue siendo un tema de suma importancia y se encuentra reflejado en este artículo:


En líneas generales el artículo en cuestión nos informa que la riqueza histórica de la mayoría de los grupos taxonómicos aumenta considerablemente con el tiempo geológico. Las explicaciones para este descenso se ven reflejadas en: el sesgo en el registro fósil y las elevadas tasas netas de diversificación en los últimos períodos. Por ejemplo, la ruptura de Pangea y el aislamiento entre los continentes podrían haber aumentado las tasas de diversificación netas. En este estudio, se investigo el efecto de  las tasas de diversificación terrestres en relación con el aislamiento entre las masas de tierra provocados por la deriva continental. Para ello se utilizó la teoría neutral ecológica como medio para estudiar distintos escenarios geológicamente complejas. Los modelos muestran los efectos de eventos geológicos simulados que afectan a todas las especies por igual, sin la complejidad de añadir otros procesos ecológicos. Se encontraron con que deriva de los continentes conduce a un aumento en la diversidad única donde el aislamiento entre los continentes conduce a la especiación adicional a través de la vicarianza. Se concluye que la deriva de los continentes por sí sola no es suficiente para explicar el aumento de la riqueza de especies terrestres observado en el registro fósil.

Todo esto nos lleva a la clave de nuestro pasado, que aún perdura en los restos fósiles que vamos hallando . La relación paleoestratigráfica nos lleva a pensar que los continente han estado unidos, pues muchos restos fósiles guardan una  estrecha relación de localización ( prueba de la deriva continental). Los yacimientos constituyes pruebas solidas para corroborarlo.

INTRODUCCIÓN


El número de taxones en los registros fósiles muestran un incremento dramático a través del tiempo geológico. Por ejemplo, los tetrápodos terrestres están bien documentados en el registro fósil y muestran un fuerte aumento de la diversidad en el tiempo ( figura 1 ). Los períodos de aumento especialmente pronunciada en la diversidad coinciden con eventos tales como la ruptura inicial de Pangea en ca 180 millones de años atrás (Ma). Otros taxones también proliferaron en escalas de tiempo similares. Estos incluyen, por ejemplo, las plantas con semilla, que se sometieron a un aumento masivo de la diversidad. Del mismo modo, los escarabajos (Coleoptera) experimentaron un aumento significativo de la riqueza de especies en todo el Cretácico temprano, posiblemente asociados con la evolución de las primeras angiospermas.

Fig.1 Muestra la diversificación de tetrápodo durante el Fanerozoico en relación con el cambio en la temperatura media global . Las imagenes de la parte superior  son representaciones aproximadas de posiciones masa de tierra en (a) 180, (b) 165, (c) 135, (d ) 132, (e) 80, (f) 55, (g) 33 y (h) 12 Ma. Basado en información en Dietz y Holden, Macdonald et al . y Veevers.

Una explicación para esta aparente aumento de la diversidad es el sesgo en el registro fósil. Por otra parte, los sustratos de períodos anteriores podrían ser menos adecuado para la preservación de la materia orgánica. Por ejemplo, el notable incremento de la diversidad durante el Fanerozoico se ha atribuido a un sesgo de muestreo causado por la disponibilidad de afloramiento de roca sedimentaria; esta observación se mantiene fuerte a pesar de la continua reclasificación de los taxones, originación y extinción por fechas de especímenes ". La tendencia en la diversidad de Coleoptera con el tiempo puede reflejar de manera similar preservación espécimen en ámbar . Un sesgo de muestreo adicional puede surgir debido a que es más fácil de clasificar los taxones con representantes de hoy en día que los que no tienen familiares que viven, lo que lleva a números elevados de taxones descritos más cerca del día de hoy. En conjunto, estos efectos de muestreo pueden dar lugar a estimaciones significativamente elevados de diversidad en relación con el presente.

Alternativamente, las tendencias en el registro fósil podrían tener en consideración los cambios en la diversidad. La diversidad podría haber aumentado, debido a que el sistema todavía no ha alcanzado el equilibrio o porque las condiciones han cambiado con el tiempo y han dado lugar a mayores tasas netas de diversificación. Una explicación sería que la "diversidad engendra diversidad". La coevolución permanente entre los diferentes organismos podría conducir a funciones ecológicas cada vez más especializados cuyos nichos se fueron llenando a través del tiempo. Quizás el cambio más dramático y evidente fue la diversificación terrestre de  comunidades que ya están presentes durante el Fanerozoico durante el cambio en la distribución de los continentes. La expansión temprana de los tetrápodos terrestres se produjo en el contexto de un solo continente global, que se había dividido en siete grandes continentes separados durante finales del Cretácico ( figura 1 ). La deriva continental tiene una fuerte influencia sobre las distribuciones de clado geográficas, y ha dado lugar a oportunidades de vicarianza y con ello un posible aumento de las tasas de especialización globales y la riqueza de especies. Análogo a los efectos de la fragmentación en las que se basan  el aislamiento y la divergencia de las poblaciones individuales, ¿podría la ruptura de Pangea explicar las tendencias temporales de la riqueza de los organismos terrestres en su conjunto?

Por ello se investigó los efectos de la deriva continental en la riqueza de especies utilizando la teoría ecológica neutral  lo que supone que las propiedades de un individuo son independientes de su identidad de la especie. El uso de la teoría neutral en este contexto destaca los efectos de la dispersión, la especialización y la deriva de los continentes por su cuenta sin ninguna contribución de otras posibles explicaciones para los patrones observados (por ejemplo, generación de nicho). La teoría neutral  normalmente sólo se aplica a los gremios de especies del mismo nivel trófico (por ejemplo, árboles de los bosques tropicales húmedos). Un sistema compuesto por diversos gremios que no interactúan (o nichos), sin embargo, por lo general hacen las mismas predicciones lo que justifica el uso de la teoría neutral, al menos como un indicador para el comportamiento de línea de base. Una ventaja adicional del uso de la teoría neutral es que las técnicas de existir basadas en coalescencia para que sea manejable para simulaciones a gran escala de situaciones complejas espacialmente. La teoría neutral se ha utilizado anteriormente en escalas de tiempo geológicas para estudiar los efectos de las fluctuaciones del nivel del mar en la zona habitable a disposición de las comunidades marinas a lo largo por 2.5 millones de año (Ma) escala de tiempo. En contraste, nuestro enfoque presente en los vertebrados terrestres es diferente y se ejecuta sobre una escala de tiempo mucho más largo de aproximadamente 180 Ma. En primer lugar, se estudió un modelo neutral simple, sin dispersión entre los continentes en los que algunos resultados se pueden derivar analíticamente.Por tanto se relacionan estos resultados a las predichas por elementales relaciones de áreas de las especies (SAR) métodos que dan riqueza de especies en función del área de hábitat de acuerdo con una ley de potencia. También se realizaron simulaciones neutras que incorporan un reducido, pero de otra manera realista, el modelo del movimiento, la división y la fusión de las masas de tierra en el último 180 Ma de una manera espacialmente explícita con la dispersión. Se compararon estos modelos geológicos precisos con otras más simples, y se consideraron los efectos de los diferentes enfoques para la especiación que interactúan formalmente de la dispersión intercontinental. En particular, se comparó un modelo en el que la especiación es independiente de la dispersión con un modelo en el que la dispersión entre los continentes desencadena la especialización adicional a través de vicarianza. Mediante la incorporación de los principios ecológicos neutros en escalas de tiempo geológicas, este trabajo da un paso más hacia la reducción de la brecha entre la ecología y biogeografía histórica.

MÉTODOS

Para llegar a la relación entre la ruptura de Pangea con la diversificación, se tuvieron que realizar numerosos estudios. Por tanto los investigadores partieron de la Teoría neutralista ( Hubbell SP. 2001 The unified neutral theory of biodiversity and biogeography. Princeton, NJ: Princeton University Press) para encaminar su investigación.
 Dicha teoría parte del supuesto de que el comportamiento de un individuo es independiente de su identidad de la especie. El modelo más conocido de esta clase se desarrolla en pasos de tiempo discretos desde una condición inicial arbitraria. En cada paso de tiempo, un individuo dentro de la comunidad muere y se sustituye por la descendencia de otra que queda en la comunidad; esto da lugar a la dinámica de 'suma cero' y un número constante de individuos dados por J M el "tamaño metacomunidad '. Cada individuo tiene la misma probabilidad de reproducirse para llenar el vacío que queda después de una muerte, por lo que las especies con un mayor número de individuos son más propensos a ser elegido: los individuos son equivalentes, pero las especies pueden ser diferentes en la medida en que pueden ser representados por diferentes número de individuos. Para evitar la diversificación de la disminución en el tiempo para un monocultivo, cualquier individuo recién nacido funda una nueva especie con probabilidad y (especialización). Este modelo especialización es un proceso prolongado y geográficamente extendida se produce, pero el método de especialización es a su vez el más simple y a menudo es utilizado en modelos neutros. En este estudio, también se van  a incorporar una componente de vicarianza a la especialización en un modelo más avanzado.

A partir de fórmulas matemáticas estadisticas en relación con los datos obtenidos se pudo observar que los tetrápodos terrestres aparecen en el registro fósil poco antes de la formación de Pangea , por lo que Pangea es el punto de partida óptimo para nuestro modelo. El eón geológico actual, el Fanerozoico, ha visto cambios drásticos en la configuración de masa de tierra con cerca de constante cambio del paisaje geológico a través del tiempo por medio de la convección del manto. Hemos simulado la ruptura de Pangea a mediados del Jurásico seguido por el movimiento de los continentes resultantes de acuerdo con un esquema explícito. En pocas palabras, la ruptura inicial en Pangea, que finalmente formó el Océano Atlántico Norte, fue seguida por la división de Gondwana en Gondwana Este y Oeste, que posteriormente se dividió en siete continentes: Australia, África, Eurasia, América del Norte, América del Sur, la Antártida y la India. Estos continentes más tarde fusionan para formar masas de tierra de hoy en día.
Fig.2 Pangea


Las distancias entre pares de los continentes se aproximaron a través del uso de los mapas de Google ( www.google.co.uk/maps/~~number=plural ) para el día de hoy y se basan en la literatura  para los puntos de tiempo histórico. Se midieron las distancias entre las costas de tierra firme continental, haciendo caso omiso de las cadenas de islas, tales como los archipiélagos del sudeste de Asia. La distancia entre continentes dependía de forma continua en el tiempo debido al proceso gradual de la deriva continental. A falta de información detallada (que en cualquier caso sería demasiado complicado para el enfoque simplificado tomado aquí), que supone una velocidad constante de movimiento continental implementado como una interpolación lineal entre los puntos de tiempo adyacentes cuando fue posible estimar distancias. Suponemos que las personas no podían cruzar una masa de tierra intermedia en un solo evento de dispersión. Sin embargo, una serie de eventos de dispersión consecutivos juntos podría permitir a un linaje que saltar a través de múltiples continentes.

Las fluctuaciones del nivel del mar puede dar lugar a la tierra áreas de masas cambiantes en el tiempo. Esto es muy amplia para las áreas de la tierra, como el archipiélago indo-australiana. Sin embargo, la predicción con precisión el área de tierra sobre la profunda escalas de tiempo y globales sería difícil y más allá del alcance de este manuscrito dado, por ejemplo, la incertidumbre de la erosión potencial de los estratos expuesta. Por lo tanto, las actuales áreas de masa terrestre se ​​estima que son uniformes en toda la simulación .

Se llevaron a cabo las simulaciones de la versión geológicamente explícita del modelo para una gama de tamaños de la comunidad J M , las tasas de especiación v y parámetros de dispersión c para poner a prueba la robustez de estas opciones. Las investigaciones se centraron en algunas simulaciones sobre todo en los pequeños valores de v destinados en indicar el comportamiento de los organismos presentes.

EN CONCLUSIÓN


Llegamos a la conclusión de que la fragmentación continental es poco probable para explicar el aumento observado en las especies terrestres riqueza puramente a través de procesos neutros de dispersión y el aislamiento. Hay alternativas, efectos no neutrales de la fragmentación que podrían explicar los cambios en la diversidad. Por ejemplo, los cambios tectónicos tales como la separación de la Antártida de América del Sur llevaron a la creación de la corriente de Benguela y condujeron a un enfriamiento progresivo y secado de los climas mundiales ( figura 1 ). Estos cambios climáticos podrían haber dado lugar a condiciones ambientales que favorecen el aumento de la especialización y / o reducirse la extinción de los tetrápodos, por ejemplo mediante la creación de nuevos tipos de hábitats templados que podrían ser colonizados fácilmente. Hoy en día los patrones espaciales de la diversidad hábitats cálidos y húmedos asociados con una mayor diversidad de mamíferos, aves y anfibios (reptiles tienden a ser más diversa en los hábitats cálidos y secos). Por el contrario, el clima global se ha enfriado y secado recientemente durante el mayor aumento en la diversidad tetrápodo cuando nada si la diversidad debería disminuir. Climas locales todavía podrían haber cambiado, sin embargo, de manera que los hacen más favorables para la diversificación. Por ejemplo, el interior de los continentes se han vuelto menos árido ya la ruptura de Pangea a causa de un acceso más cercano al aire oceánico húmedo. Aumento de la superficie de las regiones costeras también podría haber abierto nuevas áreas de hábitat. La división de Pangea está bien documentado en que afecta a la dispersión clado y el aislamiento de clados. En principio, estos podrían influir en los patrones de diversidad. Sin embargo, con un modelo neutral básica, vemos que no tiene ningún efecto sobre la riqueza de especies del sistema. Esto es válido para casi todos los tamaños de la comunidad y los valores del mundial v . La excepción es cuando teórica v es tan pequeña que cada continente tiende a contener una sola unidad de la diversidad; esto no es realista para las especies, pero potencialmente relevante para los taxones superiores y la diversidad filogenética. La incorporación de la dispersión junto duración de la generación produce ningún cambio en la riqueza. Sin embargo, la dispersión conduce a una mayor probabilidad de especialización, un incremento en la riqueza de especies en el tiempo es posible. Los valores requeridos para que esto ocurra, aunque son improbable. Por lo tanto, se postula que la deriva de los continentes por sí sola no es suficiente para explicar el aumento de la biodiversidad terrestre observada en el registro fósil ya sea actuando a través de mecanismos neutrales o por medio clásico SAR.

...y ¿qué relación guarda con las entradas anteriores?

Pues bien queridos lectores guarda relación con el pasado, es decir todo los eventos que han sucedido a lo largo de los millones de años tienen su razón de ser y las pruebas fehacientes están en nuestro presente en los yacimientos, ya que como dijo Charles Lyell "El presente es la clave del pasado".
Numerosos estudios no serian nada sin los yacimientos, por ello deben conservarse en buen estado para no alterar resultados a la hora de llevar a cabo un buen estudio. 

Bibliografía/Referencias

  • Quantifying the effects of the break up of Pangaea on global terrestrial diversification with neutral theory Sean M. R. Jordan, Timothy G. Barraclough,  James Rosindell Published 14 March 2016
  • Links between global taxonomic diversity, ecological diversity and the expansion of vertebrates on land Sarda Sahney, Michael J. Benton, Paul A. Ferry Published 27 January 2010
  • Reconstruction of Pangaea: Breakup and dispersion of continents, Permian to Present 
  • Robert S. Dietz, John C. Holden First published: 10 September 1970
  • Dietz RS, Holden JC. 1970 Reconstruction of Pangaea: breakup and dispersion of continents, Permian to present. Earth Sci. Rev. 75, 4939–4956.
  • Macdonald D et al. 2003 Mesozoic break-up of SW Gondwana: implications for regional hydrocarbon potential of the southern South Atlantic. Mar. Petrol. Geol. 20, 287–308. 
  • Veevers JJ. 2006 Updated Gondwana (Permian–Cretaceous) earth history of Australia. Gondwana Res. 9, 231–260. 
  • Tiffney BH, Niklas KJ. 1990 Continental area, dispersion, latitudinal distribution and topographic variety: a test of correlation with terrestrial plant diversity. In Causes of evolution: a paleontological perspective (eds RM Ross, WD Allmon), pp. 76–102. Chicago, IL: University of Chicago Press.
  • Niklas KJ. 1994 Plant allometry: the scaling of form and process. Chicago, IL: University of Chicago Press.
  • Labandeira C, Sepkoski J. 1993 Insect diversity in the fossil record. Science 261, 310–315. 
  • Farrell BD. 1998 Inordinate fondness’ explained: why are there so many beetles? Science 281, 555–559. 
  • Knoll AH. 1992 The early evolution of eukaryotes: a geological perspective. Science 256, 622–627. 
  • Pamela R et al. 2000 The role of microbes in accretion, lamination and early lithification of modern marine stromatolites. Nature 406, 989–992. 
  • Smith AB. 2001 Large-scale heterogeneity of the fossil record: implications for Phanerozoic biodiversity studies. Phil. Trans. R. Soc. B 356, 351–336. 
  • Adrain JM, Westrop SR. 2000 An empirical assessment of taxic paleobiology. Science 289, 110–112. 
  • Sepkoski JJ Jr.. 1993 Ten years in the library: new data confirm paleontological patterns. Paleobiology 19, 43–51.
  • Smith DM, Marcot JD. 2015 The fossil record and macroevolutionary history of the beetles. Proc. R. Soc. B 282, 20150060. (doi:10.1098/rspb.2015.0060)Abstract/FREE Full TextGoogle Scholar
  • Missa O, Dytham C, Morlon H. 2016 Understanding how biodiversity unfolds through time under neutral theory. Phil. Trans. R. Soc. B 371, 20150226.
  • Wiens JJ, Donoghue MJ. 2004 Historical biogeography, ecology and species richness. Trends Ecol. Evol. 19, 639–644.
  • Kisel Y, Barraclough TG. 2010 Speciation has a spatial scale that depends on levels of gene flow. Am. Nat. 175.3, 316–334. 
  • Hubbell SP. 2001 The unified neutral theory of biodiversity and biogeography. Princeton, NJ: Princeton University Press.
  • Chisholm RA, Pacala SW. 2010 Niche and neutral models predict asymptotically equivalent species abundance distributions in high-diversity ecological communities. Proc. Natl Acad. Sci. USA 107, 15 821–15 825. 
  • Rosindell J, Wong Y, Etienne RS. 2008 A coalescence approach to spatial neutral. Ecol. Inf. 3, 259–271. 
  • Holland SM. 2013 Relaxation time and the problem of the Pleistocene diversity. Multidiscip. Digital Publ. Inst. 5, 276–292.
  • Diamond JM. 1972 Biogeographic kinetics: estimation of relaxation times for avifaunas of southwest Pacific islands. Proc. Natl Acad. Sci. USA 69, 3199–3203. 
  • Li ZX, Powell CM. 2001 An outline of the palaeogeographic evolution of the Australasian region since the beginning of the Neoproterozoic. Earth Sci. Rev. 53, 237–277. 
  • Rosindell J, Cornell SJ, Hubbell SP, Etienne RS. 2010 Protracted speciation revitalizes the neutral theory of biodiversity. Ecol. Lett. 13, 716–727. 
  • Etienne RS, Alonso D. 2007 Neutral community theory: how stochasticity and dispersal-limitation can explain species coexistence. J. Stat. Phys. 128, 485–510. 
  • Rosenzweig ML. 1995 Species diversity in space and time. Cambridge, UK: Cambridge University Press.
  • Preston FW. 1960 Time and space and the variation of species. Ecology 41, 611–627. 
  • Storch D, Keil P, Jetz W. 2012 Universal species-area and endemics–area relationships at continental scales. Nature 488, 78–81. 
  • Rosindell J, Cornell SJ. 2007 Species–area relationships from a spatially explicit neutral model in an infinite landscape. Ecol. Lett. 10, 586–595. 
  • Rosindell J, Cornell SJ. 2009 Species–area curves, neutral models, and long-distance dispersal. Ecology 90, 1743–1750. 
  • Rosindell J, Cornell SJ. 2013 Universal scaling of species-abundance distributions across multiple scales. Oikos 122, 1101–1111. 
  • Romer AS. 1958 Tetrapod limbs and early tetrapod life. Evolution 12, 365–369. 
  • Gurnis M. 1988 Large-scale mantle convection and the aggregation and dispersal of supercontinents. Nature 332, 695–699. 
  • Veevers JJ. 2004 Gondwanaland from 650–500 Ma assembly through 320 Ma merger in Pangaea to 185–100 Ma breakup: supercontinental tectonics via stratigraphy and radiometric dating. Earth Sci. Rev. 68, 1–132. 
  • Goldfarb RJ, Groves DI, Gardoll S. 2001 Orogenic gold and geologic time: a global synthesis. Ore Geol. Rev. 18, 1–75. 
  • Rogers JW. 1996 A history of continents in the past three billion years. J. Geol. 68, 91–107. 
  • McLoughlin S. 2001 The breakup history of Gondwana and its impact on pre-Cenozoic floristic provincialism. Aust. J. Bot. 49, 271–300. 
  • Lohman DJ, de Bruyn M, Page T, von Rintelen K, Hall R, Peter KL, Shih H, Carvalho GR, von Rintelen T. 2011 Biogeography of the Indo-Australian archipelago. Annu. Rev. Ecol. Evol. Syst. 42, 205–226.
  • Smith AB, Gale AS, Monks NEA. 2001 Sea-level change and rock record bias in the Cretaceous: a problem for extinction and biodiversity studies. Paleobiology 27, 241–253. 
  • Silvestro D, Zizka A, Bacon CD, Cascales-Minana B, Salamin N, Antonelli A. 2016 Fossil biogeography: a new model to infer dispersal, extinction and sampling from paleontological data. Phil. Trans. R. Soc. B 371, 20150225.
  • Humphreys AM, Barraclough TG. 2014 The evolutionary reality of higher taxa in mammals. Proc. R. Soc. B 281, 20132750. 
  • Gillespie R. 2004 Community assembly through adaptive radiation in Hawaiian spiders. Science 303, 356–359. 
  • Gavrilets S, Losos JB. 2009 Adaptive radiation: contrasting theory with data. Science 323, 732–737. r
  • Kerkhoff AJ, Moriarty PE, Weiser MD. 2014 The latitudinal species richness gradient in New World woody angiosperms is consistent with the tropical conservatism hypothesis. Proc. Natl Acad. Sci. USA 111, 8125–8130. 
  • Grenyer R et al. 2006 Global distribution and conservation of rare and threatened vertebrates. Nature 444, 93–96. 

EL FIN DE LA AVENTURA

Puede que los días sean más largos, tal vez se note que ya hace mas calor, incluso es posible que todo esté lleno de flores…  sin darnos apenas cuenta ya termina el curso. Aún queda prácticamente un mes para el verano y este viaje al Pleistoceno, como todas las buenas historias, ha llegado a su fin, pero no sin antes realizar un último esfuerzo, no vamos a librarnos de hacer la última entrada al blog, el final está cerca.


¿POR QUÉ EL PLEISTOCENO?


El Pleistoceno es una época que me resulta especialmente llamativa, está situada entre el periodo temporal que va desde hace 2.588.000 a 11.700 años, por lo que su final fue ‘’prácticamente ayer’’.
En esta época se produjeron las últimas glaciaciones (Svensson et al. 2005), las cuales produjeron modificaciones en paisajes tan espectaculares como por ejemplo los fiordos noruegos, aunque también tenemos paisajes moldeados por glaciares de esta época en nuestro país, esto pudimos verlo con nuestros propios ojos hace ya un año en el campamento de Pirineos (que recuerdos...).


Vista del valle glaciar de La Larri y su característica morfología en U.
  

Existieron especies que pueden resultar emblemáticas de esta época como los ‘’dientes de sable’’ (del género Smilodon), el oso de las cavernas (Ursus spelaeus) o el gran mamut lanudo (Mammuthus primigenius). Esta última especie representa un caso particular, ya que se han encontrado especímenes congelados con un estado de conservación tan bueno que ha permitido secuenciar parte de su genoma.

Mamut Lyuba, presenta un estado de conservación excepcional.

Otro aspecto a tener en cuenta es la aparición del primer ‘’Homo’’, uno de los últimos estudios realizados, sitúa su aparición hace unos 2,8 millones de años (Villmoare et al. 2015), así que prácticamente la evolución de nuestra especie ha ocurrido durante esta época. Por tanto, los sucesos que ocurrieron en ella marcaron nuestra evolución.


¿DE QUÉ HEMOS HABLADO?


Hemos visto que en esta época la Tierra era ‘’un mundo de gigantes’’ ya que tras la extinción de los dinosaurios, los mamíferos sufrieron una gran diversificación y un aumento del tamaño corporal, pues ocuparon los nichos ecológicos que quedaron vacantes (Smith et al. 2010). Vimos como los megaherbívoros eran capaces de afectar al ecosistema mediante la alteración de la vegetación (Bakker et al. 2016) y los ciclos biogeoquímicos (Hobbs, 1996) así como la modificación del albedo terrestre (Zimov, 2005).

La relación establecida con el segundo artículo fue a través de la estructura trófica, ya que en esta primera entrada también se habla de que los grandes carnívoros y su función estabilizadora del ecosistema controlando la abundancia de herbívoros menores y mesodepredadores  (Estes et al. 2011).


En la segunda entrada vimos como los carnívoros eran ‘’la clave del equilibrio’’. En el Pleistoceno la diversidad de los herbívoros era tan grande que de no limitar sus poblaciones se hubiese producido una degradación de su ecosistema, es aquí donde entran en juego los grandes carnívoros y megacarnívoros, que mediante la depredación ejercían el control de las poblaciones de herbívoros y mantenían el ecosistema equilibrado (Ripple & Van Valkenburgh, 2010). Además, las condiciones en el Pleistoceno favorecieron la socialización y la existencia de manadas muy numerosas de carnívoros (Carbone et al. 2009).

En estas dos entradas se habla de un modo más o menos general sobre la ecología del Pleistoceno, hablando de las especies más representativas que vivieron entonces, sus relaciones con el ecosistema y la cadena trófica. También se hace referencia al impacto que ocasionó el ser humano sobre las poblaciones de megafauna, que también fueron afectadas periodos de cambio climático, episodios de incendios, sequías y otras situaciones extremas (Barnosky et al. 2004). Por lo que llegó el momento de hablar sobre los humanos.


Los humanos recorrieron ‘’un largo camino’’ desde su salida de África, es algo que podemos comprobar actualmente, ya que habitan prácticamente en todos los lugares de la Tierra. Aunque existen varias hipótesis, a día de hoy no se tiene la certeza de cómo se ha producido esta gran migración. En el artículo tratado se intenta dar una respuesta mediante un método genético que estudia la existencia y variación de los haplogrupos M y N de las poblaciones de humanos (Kivisild, 2015). Se ha visto que el clima jugó un papel importante, a nivel mundial, las fases de calentamiento tempranas del Maximo Tardiglaciar están asociados a cambios demográficos sustanciales así como a la primera expansión de los humanos modernos en las Américas (Meltzer, 2009).


Es hora de despedirse:

Las despedidas son duras, pero es el mejor momento para hacerlo.

Ha sido un viaje interesante pero también complicado, teniendo que hacer un gran esfuerzo para comprender algunas ideas expuestas en los artículos, por lo que también puedo decir que ha sido un viaje algo movido. La parte bonita ha sido disponer de libertad para escoger los artículos entre los que reunían las condiciones establecidas, algo en lo que pienso que he tenido bastante suerte, ya que he podido tratar temas que me gustan y no me costó especial trabajo encontrarlos (bendito google scholar).
Con todo ello, hacer este trabajo y leer muchos de los otros que se han ido publicando me ha servido para tener una visión más amplia sobre el tipo de trabajo del paleontólogo, que tal vez, al desconocer las investigaciones que se llevan a cabo en este campo no era del todo consciente de la cantidad de información que nos ofrece la paleontología. 


BIBLIOGRAFÍA.

viernes, 20 de mayo de 2016

ÚLTIMOS HALLAZGOS EN ESPAÑA

RECAPITULANDO...

En entradas anteriores hablamos de dos yacimiento muy importantes en España, como son La sima de los huesos y La Gran Dolina situados en Atapuerca. Pues bien, hoy situaremos nuestra entrada de blog en dos lugares en particular:
  • Cueva de El Soplao:  se encuentra entre los municipios de Herrerias , Valdáliga y Rionansa, en la Sierra de Arnero, a una altitud de 540 m sobre el nivel del mar. El entorno constituye un enclave con espléndidas vistas sobre la Sierra de Peña Sagra, Los Picos de Europa, el valle del río Nansa y el mar Cantábrico. La cueva esta situada a 60 Km de torrelavega y a 83 Km de Santender, cerca de lugares con encanto como son San vicente de la Barquera, Comillas, Santillana del Mar, el Desfiladero de la Hermida Cabuérniga. Se caracteriza por el albergue de ambar producido hace 110 millones de años en el periodo Cretacico. En aquella época el clima era mucho mas cálido y húmedo que el actual. Ello permitió el crecimiento de frondosos bosques de coníferas resinosas de helechos gigantes, hoy extinguidos. En estos bosques vivían dinosaurios que caminaban entre árboles y helechos. Fue en esa época cuando aparecieron las primeras plantas con flores, lo que coincidió con la diversificación de los insectos polinizadores. Y son, precisamente, algunos de estos insectos y otros artrópodos que han quedado conservados en el ámbar de El Soplao.
Fig. 1 Cueva de El Soplao
  • Las Hoyas: es un yacimiento paleontológico situado en el término municipal de La Cierva, muy cerca de la ciudad de Cuenca (en la provincia del mismo nombre), Castilla-La Mancha (España). Además constituye  uno de los ejemplos de conservación excepcional del Cretácico Inferior conocido a escala mundial como fossil Lagestätte. Las Hoyas ha proporcionado: ejemplares singulares entre los que cabe destacar las aves mesozoicas Iberomesornis, Concornis, o Eualulavis; ejemplares completamente articulados como la carófita Clavatoraxis, o el anfibio albanerpetóntido Celtedens;un número notable de nuevas especies de diversos grupos como por ejemplo el de peces Pycnodontiformes y nuevos miembros de la familia Chanidae; un abundante y diverso registro de plantas desde briófitas a angiospermas; así como insectos mesozoicos de diferentes familias de hábitos tanto acuáticos como terrestres. El estudio integrado de la asociación fósil y del registro sedimentario de Las Hoyas nos ha permitido formular las bases de cómo sería la dinámica y las particularidades geobiológicas de este Ecosistema durante el Barremiense superior.
Fig 2. Imagen de Las Hoyas
Estos dos lugares se han convertido en la clave de hallazgos fósiles de importancia para la paleontología. Todo ello se recoge en un informe que captó mi atención y espero que la vuestra también:

  • New Eoptychoptera (Insecta: Diptera, Ptychopteridae) from the Lower Cretaceous of Spain por:Lukashevich, ED (Lukashevich, Elena D.); Arillo, A (Arillo, Antonio) Fecha de publicación: MAR 2016
Este artículo nos revela una nueva especie Eoptychoptera cantabrica. Hallada en depositos ámbar en El Soplao durante el albiense. Se trata de un macho con una probóscide alargada, desconocidos entre los miembros existentes de Ptychopteridae. Representa el registro más joven de las especies del género-especie  Eoptychoptera. También se han hallado crisálidas de Eoptychoptera . con un cuerno respiratorio largo, típico de ptychopterids, en las calizas Las Hoyas, donde ptychopterids fósiles adultos aún no se han descubierto. La discusión de este artículos son las preferencias climaticas de dichas especies.

MATERIALES Y MÉTODOS

El macho CES 059 procedente de El Soplao (norte de España, Cuenca Vasco-Cantábrica, en  Las Peñosas, 43 ° 18'N, 4 ° 25'W, Fig.3 ) se conserva en un trozo de ámbar con las siguientes inclusiones: Staphylinidae (Coleoptera), Scelionidae (Hymenoptera) y un pequeña fragmento de ala  de Diptera. El espécimen fue incrustada en un epoxi de colada de alta calidad (Epotek 301) de acuerdo con protocolos en Corral, López del Valle, y Alonso (1999) y Nascimbene y Silverstein (2000) . Fue fotografiada con una cámara montada en un microscopio Olympus BX51 compuesto, y se encuentra en el museo de El Soplao en Cantabria.
La LH pupa 35084 ± a partir de la Formación La Huérguina, Las Hoyas (centro-este de España, Cuenca Ibérica, 40 ° 5'N, 1 ° 29'W; Fig. 1 ) está alojado en el Museo de las Ciencias de Castilla-La Mancha . Fue fotografiada con una cámara digital Nikon D3100 Nikon unido a un microscopio estereoscópico. Dibujos se hicieron con un tubo dibujo adjunto a un microscopio estereoscópico.
Fig.3 Mapa de la Península Ibérica que muestra la ubicación  en áreas marinas del Albiense inferior y las zonas continentales y la distribución de los afloramientos cretácicos más bajas de ámbar (círculos en blanco- restos de artrópodos en ámba)r y el afloramiento de Las Hoyas (redibujado de Peñalver y Delclòs, 2010 ).


Para la comparación, se utilizó etanol adultos conservado de reciente Ptychopteridae, Tanyderidae y Blephariceridae de la colección personal del autor principal. Las fotografías de mosquitos recientes fueron tomadas usando un microscopio estereoscópico Leica M165C con una cámara digital Leica DFC425, Z-apilada usando Helicon Focus Pro 4.10 y ajustado en Adobe Photoshop ® CS3 10.0.
Fig. 4 Distintos tipos de disposición de venas en  las alas de Eoptychoptera

CONCLUSIONES


Lo hallado en esos yacimientos dio lugar a la descripción de Eoptychoptera cantabrica y la Eoptychoptera. Ambas se encontraban de manera muy distinta, pues la primera estaba en inclusiones de ámbar mientras que la segunda eran pupas (es el estado por el que pasan algunos insectos en el curso de la metamorfosis que los lleva del estado de larva al de imago o adulto) conservadas en calizas.
Lo que se discote en ambas especies es su preferencia climatica y la diferencia de piezas bucales en ambas especies.
No obstante se concluyó que el macho  Eoptychoptera cantabrica hallado en inclusione de ámbar que  procedentes del Cretácico Inferior en  El Soplao muestra una probóscide alargada, desconocidos en el Ptychopteridae existentes. Se sugire una posible secuencia evolutiva a partir de Eoptychoptera , donde un corto clypeus y una labella moderada se combinan con un labro alargado. El Leptychoptera del Cretacico, muestra una labella y un clypeus con una dilatación paralela con el acortamiento del labrum . Por último, en los últimos Ptychoptera , el labrum se convierte en algo  minúsculo, casi atrofiado, mientras que el labella y clypeus vuelven enormes. El Leptychoptera patrón sugiere que la asociación trófica de ptychopterids existentes con homópteros productores de melazo puede ser bastante antiguo, pero ninguna característica visible impide a uno relacionar que E. cantabrica  tenía la costumbre de morder a través de las piezas bucales.
Sin embargo la hipótesis especulativa permanecerá hasta que se descubre una muestra con claridad visibles estiletes bien desarrollados.

Para finalizar...


El artículo acerca de los restos fósiles encontrados en estos dos yacimientos me hace pensar en la de cosas que aún nos falta por descubrir, la de especies que se nos escaparon, escapan y escaparan a lo largo del tiempo. Aún hay mucho trabajo que realizar en España, ya que tenemos a nuestra disposición yacimientos de vital importancia para ir rellenando huecos en la filogenia e incluso abrir nuevos frentes para expandir nuestro propio conocimiento.

BIBLIOGRAFÍA Y REFERENCIAS


  • New Eoptychoptera (Insecta: Diptera, Ptychopteridae) from the Lower Cretaceous of Spain por:Lukashevich, ED (Lukashevich, Elena D.); Arillo, A (Arillo, Antonio) Fecha de publicación: MAR 2016
  • Las Hoyas
  • Alexander, 1916C.P. Alexander New or little-known crane-flies from the United States and Canada: Tipulidae, Ptychopteridae. Diptera, part 3
  • Allen, 1998  P. Allen Purbeck-Wealden (early Cretaceous) climates Proceedings of the Geologists' Association, 109 (1998), pp. 197–236
  • El soplao
  • Andersen et al., 2013 T. Andersen, L.K. Hagenlund, O. Haland, G.M. Kvifte, J. Skartveit New records of lower Diptera (“Nematocera”) from Finnmark, northern Norway Norwegian Journal of Entomology, 60 (2013), pp. 182–189
  • Arillo et al., 2015  A. Arillo, E. Peñalver, R. Pérez-de la Fuente, X. Delclòs, J. Criscione, P.M. Barden, et al. Long-proboscid brachyceran flies in Cretaceous amber (Diptera: Stratiomyomorpha: Zhangsolvidae) Systematic Entomology, 40 (2015), pp. 242–267
  • Azar and Nel, 2012 D. Azar, A. Nel Evolution of hematophagy in “non-biting midges” (Diptera: Chironomidae) Terrestrial Arthropod Review, 5 (2012), pp. 15–34.
  • D. Azar, I. Veltz, A. Nel Mandibulate chironomids: primitive or derived? (Diptera: Chironomidae) Systematic Entomology, 33 (2008), pp. 688–699
  • R.C. Blakey Library of paleogeography
  • A. Borkent The frog-biting midges of the world (Corethrellidae: Diptera) Zootaxa, 1804 (2008) 1–456
  •  F.J. Brinston, S. McKeever, D.V. Hagan Comparative study of mouthparts of the phlebotomine sand flies Lutzomyia longipalpis, L. shannoni, and Phlebotomus papatasi (Diptera: Psychodidae) Annals of Entomological Society of America, 86 (4) (1993), pp. 470–483

jueves, 12 de mayo de 2016

Una novedosa forma de muestreo

Artículo original: Mammalian mitochondrial capture, a tool for rapid screening of DNA preservation in faunal and undiagnostic remains, and its application to Middle Pleistocene specimens from Qesem Cave (Israel)

Viviane Slona (a) Isabelle Glockea (a) Ran Barkai (b), Avi Gopher (b), Israel Hershkovitz (c), Matthias Meyer (a).

a Department of Evolutionary Genetics, Max Planck Institute for Evolutionary Anthropology, Leipzig, Germany
b Department of Archaeology and Ancient Near East Cultures, The Lester and Sally Entin Faculty of Humanities, Tel-Aviv University, Israel
c Department of Anatomy and Anthropology, Sackler Faculty of Medicine, Tel-Aviv University, Israel

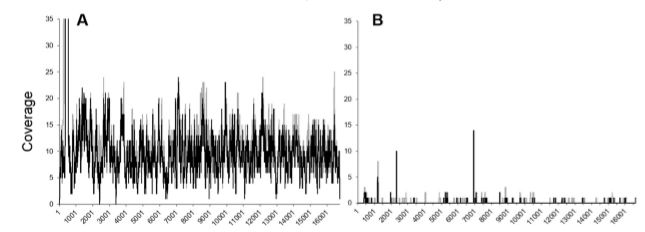
Los restos óseos de faunas prehistóricas son a menudo demasiado fragmentaria para permitir la identificación a nivel de especie en base a la morfología, lo que complica los intentos de recuperar las secuencias de ADN antiguo de estos restos. Se diseñó un nuevo enfoque que permite la detección a gran escala de los restos no diagnóstico, para la conservación de ADN mitocondrial antiguo. Después de la extracción de ADN y los preparativos de la biblioteca de ADN, las bibliotecas se enriquecen de ADN mitocondrial utilizando un conjunto de sondas, que cubren la totalidad de los genomas mitocondriales de 242 especies de mamíferos. Se demuestra que la eficiencia de enriquecimiento mitocondrial usando sondas de captura de mamíferos no es sustancialmente menor en comparación con el enriquecimiento utilizando sondas específicas de la especie.

Las excavaciones en la cueva Qesem (Israel), que data de 420-200 ka, han dado un gran conjunto de restos óseos y dentales, incluyendo un pequeño número de dientes de homínidos. A medida que los acontecimientos recientes en la extracción de ADN antiguo, y métodos de preparación de la biblioteca han permitido la generación de los datos de secuenciación de muestras del Pleistoceno medio, que tuvo como objetivo investigar la viabilidad de la recuperación de las moléculas de ADN antiguo de especímenes procedentes de la cueva Qesem. La investigación actual se llevó a cabo utilizando cuarenta y dos restos de fauna de seis diferentes áreas de la cueva, como un estudio preliminar que podría ser utilizado, permanece para su posterior análisis genético. Por desgracia, las bibliotecas de ADN a partir de muestras de Qesem Cave produjeron pocas secuencias que se pueden asignar a un genoma mitocondrial de los mamíferos. Estas secuencias no muestran la estructura del antiguo daño en el ADN que se espera de secuencias endógenas de esa edad. Por lo tanto, no hemos podido detectar la presencia de antiguas moléculas de ADN endógenas en los restos de fauna de la cueva Qesem.

Los recientes acontecimientos en la extracción de ADN antiguo (Dabney et al., 2013) y los métodos de preparación de la biblioteca (Gansauge y Meyer, 2013) han hecho que sea factible recuperar material genético de muestras antiguas fuera de permafrost, ya en el Pleistoceno Medio (Dabney et al., 2013 y Meyer et al., 2014). Sin embargo, la preservación de las moléculas de ADN en el tiempo, tanto en términos de cantidad y calidad, es muy variable, ya que pueden verse afectados, entre otros, por la temperatura del suelo, la acidez, la salinidad, la exposición a la luz solar o la disponibilidad de agua libre y oxígeno ( Lindahl, 1993 Bollongino et al., 2008 y Sawyer et al., 2012). En particular, los climas cálidos parecen afectar negativamente a la conservación de las moléculas de ADN antiguo (Bollongino et al., 2008 y Allentoft et al., 2012). Aunque se necesitan 100 mg o menos de polvo de hueso / diente por técnicas de extracción de ADN actual (Dabney et al., 2013), el muestreo sigue siendo un proceso destructivo. Por lo tanto, la preservación antiguo ADN se determina mejor en los restos de fauna o fragmentos no diagnóstico, antes de probar los fósiles de homínidos, en el supuesto de que los restos óseos de lugares similares en un sitio arqueológico habrían estado expuestos a condiciones ambientales similares.

La detección de muestras antiguas para la preservación de ADN se dirige de forma rutinaria el genoma mitocondrial (MT), un pequeño, circular y no recombinar-molécula de ADN que se hereda por vía materna. La ocurrencia de ADNmt en las copias por célula más altos, en comparación con el ADN nuclear, aumenta las posibilidades de recuperación de ADN antiguo (Pääbo et al., 2004). Además, el rápido ritmo de evolución ADNmt permite la identificación de organismos discretos basados ​​en secuencias mitocondriales, que es particularmente importante cuando se trabaja con fragmentos de hueso o de los dientes de origen incierto. En el pasado, la reacción en cadena de la polimerasa (PCR) se ha utilizado para amplificar tramos cortos de ADN mitocondrial que llevan diferencias de secuencia distintivos entre especies estrechamente relacionadas, por ejemplo en el gen de citocromo b (Loreille et al., 1997 y Burger et al., 2002 ). Sin embargo, este enfoque no es aplicable a una amplia gama de taxones vagamente relacionados. Además, los métodos basados ​​en la PCR no son lo suficientemente sensibles como para detectar los pequeños rastros de ADN altamente degradado que pueden estar presentes en muestras muy antiguas o en los procedentes de sitios bajo condiciones climáticas difíciles (Dabney et al., 2013). Por el contrario, los métodos basados ​​en bibliotecas permiten la amplificación de todos los fragmentos de ADN recuperados en un extracto de ADN. Esto se consigue uniendo engarces de ADN con secuencias conocidas a cada fragmento de ADN antes de la amplificación por PCR. bibliotecas de ADN pueden entonces ser secuenciados directamente en un secuenciador de alto rendimiento, recuperando así las secuencias de fragmentos de ADN al azar. Esta simple estrategia es a veces suficiente para determinar la fuente de especies de una muestra antigua (Blow et al., 2008), pero debido a la dominancia de ADN microbiano en la mayoría de los extractos de ADN antiguo, que tiene un costo prohibitivo para el cribado de grandes conjuntos de muestras. Una alternativa más rentable es enriquecedor bibliotecas de ADN para secuencias mitocondriales. Esto se logra mediante la hibridación de la biblioteca para piezas sintéticas de ADN ( 'cebos') que llevan la secuencia de interés. captura por hibridación ha utilizado con éxito para generar secuencias del genoma del ADNmt, incluso a partir de ADN muy degradado, como de oso y restos de homínido Sima de los Huesos (España) (Dabney et al., 2013 y Meyer et al., 2014). Una limitación de captura de hibridación es que la selección de los cebos de captura apropiadas requiere un conocimiento a priori de la especie en estudio.


 Tabla1 Identificación de especies de las muestras estudiadas y características de la biblioteca de ADN generados a partir de cada uno, por área de muestreo.                                                                                                                                                                                                                                     Se describen un enfoque novedoso, "captura de mamíferos mitocondriales ", que permite la detección a gran escala de los restos de fauna y no diagnóstico, para la preservación de ADN antiguo. Para este propósito, utilizamos una piscina cebo que incluye secuencias del genoma de ADNmt de 242 especies de mamíferos, entre ellos la mayoría de las especies (o parientes cercanos de los mismos) que se encuentran en los sitios de mediados y finales del Pleistoceno típicos. Se demuestra la eficacia de la captura de mamíferos mitocondrial de muestras de osos de cuevas ya se sabe que contienen ADN, y el uso de este método para determinar el estado de conservación de ADN en el Pleistoceno Medio restos de la cueva Qesem.

Tabla 2.Lista de las especies de mamíferos incluido en el grupo de sondas de captura de mamíferos mitocondrial.

Qesem Cave es una cámara kárstico situado en un terreno de piedra caliza montañosa a unos 12 kilómetros de la moderna ciudad de Tel-Aviv (Israel). Hominin ocupación de la cueva osciló entre hace 420 y 200 mil años (ka) (Barkai et al., 2003, Gopher y col., 2010 y Mercier et al., 2013), como lo demuestra el descubrimiento de varios dientes de homínidos (Hershkovitz et al., 2011), artefactos líticos pertenecientes a la Acheulo-Yabrudian Complejo Cultural (Barkai y Gopher, 2013), la evidencia para el uso de fuego (Karkanas et al., 2007, Barkai y Gopher, 2013 y Shahack-Gross et al. , 2014), y miles de restos óseos y dentales de fauna (Stiner et al., 2009, Stiner et al., 2011 y Blasco et al., 2014). Los sedimentos en el sitio consisten sobre todo en las capas de color oscuro de arcilla, muy probablemente procedente de la infiltración de terra rossa (Karkanas et al., 2007). La temperatura media anual de la región es de aproximadamente 20 ° C. La precipitación media es de ~ 500 mm por año, a pesar de la precipitación anual puede variar drásticamente.

El análisis morfológico de los restos dentales de homínidos de Qesem cueva revela su similitud con las posteriores Los seres humanos Skhul / Qafzeh temprana anatómicamente modernos, aunque con algunos rasgos neandertales similar (Hershkovitz et al., 2011), dando a luz varios escenarios evolutivos que representan estos rasgos anatómicos . Los datos genéticos de los restos dentales permitirían seguir investigando la identidad de los homínidos Qesem Cave, así como para dilucidar su relación con otros homínidos arcaicos para los que las secuencias de ADN ya han sido generados (por ejemplo, Meyer et al., 2012, Meyer et al., 2014 y Prüfer et al., 2014). La abundancia de restos de fauna en la cueva Qesem ofrece la oportunidad de estudiar la preservación de ADN antiguo en diferentes áreas de la cueva. Este estudio preliminar podría ser utilizado para seleccionar hominin sigue para un análisis genético, disminuyendo así muestreo destructivo de estos fósiles valiosos. Por otra parte, muchos de los restos de fauna de la cueva Qesem son demasiado fragmentarios para permitir la identificación a nivel de especie en base a su morfología (Stiner et al., 2009 y Blasco et al., 2014). La identificación de las especies en función de su material genético ayudaría a echar más luz sobre los patrones del entorno y de la caza de los homínidos de Qesem.

Los restos óseos de los sitios arqueológicos a menudo incluyen una gran proporción de fragmentos no diagnóstico, como es el caso en la cueva Qesem (Stiner et al., 2009 y Blasco et al., 2014). Se demuestra que el enriquecimiento selectivo de secuencias mitocondriales de dos osos de las cavernas antiguas es comparable utilizando sondas específicas de la especie y el uso de la sonda conjunto de los mamíferos. En particular, ya que ambos genomas mitocondriales humanos y neandertales se incluyen en el conjunto de la sonda, que podría ser utilizado para identificar previamente no reconocido de homínidos antiguos restos, siempre que las secuencias interceptado puede autenticado como ADN antiguo endógeno. Por lo tanto, esta sonda conjunto constituye una poderosa herramienta para la detección de restos óseos y dentales sin identificar la presencia de ADN antiguo endógeno. Además, la identificación de especies de restos de fauna no diagnóstico, en función de su material genético podría contribuir a la reconstrucción filogenética de las especies existentes y extintos, así como a los estudios zoo-arqueológica y paleo-ambientales llevadas a cabo en los sitios prehistóricos.


   Figura 1.Genoma mitocondrial después del enriquecimiento con sondas específicas osos de cueva (gris), en comparación con el enriquecimiento con las sondas mitocondriales de mamíferos (negro).                                                                                                                                                                                                                                                                                                                               Además, aunque las sondas de captura mitocondriales de mamíferos son menos eficientes que especies específicas de las sondas en la recuperación de secuencias mitocondriales, especialmente para muestras en las que el ADN es altamente degradado, como el ~430 oso de las cavernas ka de Sima de los Huesos, el conjunto de sonda de mamífero potencialmente puede ser utilizado para capturar secuencias mitocondriales de restos de fauna de una especie de mamífero conocidas. Tal estrategia eliminaría el proceso costoso y requiere mucho tiempo de diseño específico de la especie sondas para cada nueva especie de mamífero estudiados en un marco ADN antiguo; así como ayudar en la verificación de la identificación de especies putativo en los casos de la morfología ambigua. Como experimentos de laboratorio y la secuencia se pueden realizar en paralelo para múltiples muestras de ambas especies conocidos y desconocidos, la captura de mamíferos mitocondrial permite un procesamiento eficiente de un gran número de muestras en el cribado de la antigua preservación de ADN.

Conclusión:

A pesar de utilizar métodos de preparación de extracción de ADN y de biblioteca que se han desarrollado específicamente para hacer frente a las moléculas de ADN antiguo acortados y dañadas (Dabney et al., 2013 y Gansauge y Meyer, 2013), no fuimos capaces de recuperar las secuencias de ADN que podría ser inequívocamente atribuidos a el genoma endógeno de cualquiera de los restos de fauna probadas de Qesem cueva. Sin embargo, el conjunto de sonda de captura de mamíferos mitocondrial, que fue diseñado para el enriquecimiento mitocondrial de especies de mamíferos no identificado, ha demostrado ser una herramienta eficaz para el cribado a gran escala de los conjuntos óseos no diagnóstico, para la preservación de ADN antiguo. El uso de este método para evaluar la conservación del ADN  pueden facilitar las decisiones futuras sobre el muestreo.

Referencias:

    • Allentoft et al., 2012
    • M.E. Allentoft, M. Collins, D. Harker, J. Haile, C.L. Oskam, M.L. Hale, P.F. Campos, J.A. Samaniego, M.T. Gilbert, E. Willerslev, G. Zhang, R.P. Scofield, R.N. Holdaway, M. Bunce
    • The half-life of DNA in bone: measuring decay kinetics in 158 dated fossils
    • Proceedings of the Royal Society B: Biological Sciences, 279 (2012), pp. 4724–4733
    • Barkai and Gopher, 2013
    • R. Barkai, A. Gopher
    • Cultural and biological transformations in the Middle Pleistocene Levant: a view from Qesem Cave, Israel
    • ,in: T. Akazawa, Y. Nishiaki, K. Aoki (Eds.), Dynamics of Learning in Neanderthals and Modern Humans, Cultural Perspectives, Replacement of Neanderthals by Modern Humans Series, vol. 1, , Springer, Japan (2013), pp. 115–137
    • Barkai et al., 2003
    • R. Barkai, A. Gopher, S.E. Lauritzen, A. Frumkin
    • Uranium series dates from Qesem Cave, Israel, and the end of the Lower Palaeolithic
    • Nature, 423 (2003), pp. 977–979
    • Blasco et al., 2014
    • R. Blasco, J. Rosell, A. Gopher, R. Barkai
    • Subsistence economy and social life: a zooarchaeological view from the 300 kya central hearth at Qesem Cave, Israel
    • Journal of Anthropological Archaeology, 35 (2014), pp. 248–268
      • Blow et al., 2008
      • M.J. Blow, T. Zhang, T. Woyke, C.F. Speller, A. Krivoshapkin, D.Y. Yang, A. Derevianko, E.M. Rubin
      • Identification of ancient remains through genomic sequencing
      • Genome Research, 18 (2008), pp. 1347–1353
      • Bollongino et al., 2008
      • R. Bollongino, A. Tresseta, J.D. Vignea
      • Environment and excavation: pre-lab impacts on ancient DNA analyses
      • Comptes Rendus Palevol, 7 (2008), pp. 91–98
    • Gansauge and Meyer, 2013
    • M.-T. Gansauge, M. Meyer
    • Single-stranded DNA library preparation for the sequencing of ancient or damaged DNA
    • Nature Protocols, 8 (4) (2013), pp. 737–748
    • Gansauge and Meyer, 2014
    • M.-T. Gansauge, M. Meyer
    • Selective enrichment of damaged DNA molecules for ancient genome sequencing
    • Genome Research, 24 (2014), pp. 1543–1549
    • Gilbert et al., 2005
    • M.T. Gilbert, H.J. Bandelt, M. Hofreiter, I. Barnes
    • Assessing ancient DNA studies
    • Trends in Ecology and Evolution, 20 (10) (2005), pp. 541–544
    • Gopher et al., 2010
    • A. Gopher, A. Ayalon, M. Bar-Matthews, R. Barkai, A. Frumkin, P. Karkanas, R. Shahack-Gross
    • The chronology of the late Lower Paleolithic in the Levant based on U-Th ages of speleothems from Qesem Cave, Israel
    • Quaternary Geochronology, 5 (2010), pp. 644–656
        • J. Dabney, M. Knapp, I. Glocke, M.-T. Gansauge, A. Weihmann, B. Nickel, C. Valdiosera, N. García, S. Pääbo, J.-L. Arsuaga, M. Meyer
        • Complete mitochondrial genome sequence of a Middle Pleistocene cave bear reconstructed from ultrashort DNA fragments
        • Proceedings of the National Academy of Sciences of the United States of America, 110 (2013), pp. 15758–15763
    • Karkanas et al., 2007
    • P. Karkanas, R. Shahack-Gross, A. Ayalon, M. Bar-Matthews, R. Barkai, A. Frumkin, A. Gopher, M.C. Stiner
    • Evidence for habitual use of fire at the end of the Lower Paleolithic: site-formation processes at Qesem Cave, Israel
    • Journal of Human Evolution, 53 (2007), pp. 197–212

  • Sawyer et al., 2012
  • S. Sawyer, J. Krause, K. Guschanski, V. Savolainen, S. Pääbo
  • Temporal patterns of nucleotide misincorporations and DNA fragmentation in ancient DNA
  • PLoS ONE, 7 (3) (2012), p. e34131
    • Stiner et al., 2009
    • M.C. Stiner, R. Barkai, A. Gopher
    • Cooperative hunting and meat sharing 400–200 kya at Qesem Cave, Israel
    • Proceedings of the National Academy of Sciences of the United States of America, 106 (2009), pp. 13207–13212
    • Stiner et al., 2011
    • M.C. Stiner, A. Gopher, R. Barkai
    • Hearth-side socioeconomics, hunting and paleoecology during the late Lower Paleolithic at Qesem Cave, Israel
    • Journal of Human Evolution, 60 (2011), pp. 213–233