Mostrando entradas con la etiqueta algas. Mostrar todas las entradas

lunes, 11 de marzo de 2019

Y en aguas frías, las diatomeas.

Buenos días, tardes o noches a los ávidos lectores de este blog que buscan conocer e informarse un poco más sobre nuestro pequeño planeta Tierra. Aroa vuelve de nuevo lista para informar y expandir el conocimiento de seres microscópicos. 
1. Diatomeas al microscopio, increíbles.
Si en la primera entrada hable sobre los foraminíferos (Pero... ¿qué narices hacen los foraminíferos?) en esta  voy a introduciros a las diatomeas, que podemos ver como sus primas lejanas. Son algas unicelulares, aunque muchas especies se agregan en cadenas o grupos en forma de estrella. Están revestidas por paredes celulares constituidas principalmente por sílice (SiO2) cuyo color característico es debido a los pigmentos carotenoides (Castro & Huber. 2007). Viendo esto podéis pensar que porque os hablo otra vez de algas unicelulares que seguro hacen más de lo mismo. Pues no. Las diatomeas, a parte de ser productores primarios en mar abierto, son especiales ya que habitan en temperaturas concretas que dependen de la especie (la gran mayoría se encuentran en aguas frías). Esta característica que las vuelve curiosas es la base del artículo que me ha llevado a realizar esta entrada (Mimmi, O., Juggins, S., Miettinen, A., Witkowski, A. & Weckström, K. 2019. The biogeography and ecology of common diatom species in the northern North Atlantic, and their implications for paleoceanographic reconstructions. Marine Micropaleontology, 148: 1-28).
2. Dibujos de Ernst Haeckel
En este estudio se evidencia como, a partir de la toma de fósiles de diatomeas, pueden reconstruirse el clima y los cambios del medio que tuvieron lugar en el pasado en las zonas donde se hallen. En concreto para esta investigación se estudiaron diatomeas de 52 especies diferentes procedentes del Atlántico Norte, el Mar de Labrador, los Mares Nórdicos y la Bahía de Baffin con la intención de conocer su biogeografía y ecología. Para ello analizaron la respuestas de las especies a concentraciones de banquisa/hielo marino (sea ice) de abril y a temperaturas de la superficie del mar (sea surface temperature, SST) de agosto. Con los resultados se comprobó que diferentes especies se amoldaban a diferentes temperaturas y condiciones, siendo que todas tenían alguna relación significativa con la temperatura de superficie del mar y sólo 15 de ellas con el hielo marino. Como curiosidad, se vio que en estas zonas la especie utilizada como indicadora común de hielo marino (Fragilariopsis cylindrus) mostraba una abundancia similar tanto en zonas de alta concentración de hielo como en zonas de baja concentración, lo que evidencia su falta de relación con la banquisa.


3. Fragilariopsis cylindrus. A) Imagen a microscopio B) Abundancia en las diferentes zonas de recogida C) Gráfica respecto a la temperatura de superficie D) Gráfica respecto al hielo marino


En conclusión, podemos ver que las diatomeas (al igual que los foraminíferos) son esenciales para el conocimiento de nuestro medio ambiente ya que nos permiten saber las situaciones paleoceanográficas de las zonas marinas como se ha visto también, a parte de en el artículo mencionado, en muchas otras investigaciones, por ejemplo, diatomeas del mioceno encontradas en la zona del pacifico en Colombia (Plata et al., 2018). 

4. Extracción de los fósiles en Colombia del artículo mencionado

Debo por último agregar que debemos tener en cuenta que las diatomeas no sólo aportan información del pasado, si no que también pueden indicarnos el daño irreparable que causamos al planeta con el calentamiento global que altera las temperaturas a las que viven estas pequeñas algas preciosas al microscopio y tan esenciales para los ecosistemas marinos. Así me despido, alertando sobre el irremediable cambio climático al que estamos sometiendo a la Tierra y como debemos tenerlo en cuenta, tanto por estos pequeños seres maravillosos como por nosotros mismos (parece que esta despedida se va a volver costumbre en mi)

5. Con lo bonitos que son los osos polares haremos que acaben siendo equilibristas

REFERENCIAS

- Castro, P. & Huber, M.E. 2007. Biología marina. McGraw-Hill España, 100-101 pp.
- Mimmi, O., Juggins, S., Miettinen, A., Witkowski, A. & Weckström, K. 2019. The biogeography and ecology of common diatom species in the northern North Atlantic, and their implications for paleoceanographic reconstructions. Marine Micropaleontology, 148: 1-28
- Plata, A., Bárcena, M.A., Vallejo, D.P., Trejos, R., Pardo-Trujillo, A., Flores, J.A. & Sierro, F.J. 2018. First record of middle Miocene marine diatoms from the Colombian Pacific (NW South America) and their paleoceanographic significance. Marine Micropaleontology, 140: 17-32

IMÁGENES

sábado, 24 de mayo de 2014

Varamientos masivos repetidos de mamíferos marinos en la región de Atacama, Chile, apuntan a una muerte repentina
 Introducción
 A lo largo de millones de años los varamientos masivos han sido muy abundantes y sus causas han sido muy particulares. En esta entrada se discutirán las conclusiones a las que se han llegado en el artículo D. Pyenson, N., S. Gutstein, C., F. Parham, J., P. Le Roux, J., Carreño Chavarría, C., Little, H., Metallo, A., Rossi, V., M. Valenzuela-Toro, A., Velez-Juarbe, J., M. Santelli, C., Rubilar Rogers, D., A. Cozzuol, M. & Mario E. Suárez, M. 2014. Reapeated mass strandings of Miocene marine mammals from Atacama Region of Chile point to sudden death of sea. Proceedings of the royal society Proc. R. Soc. B 281: 20133316, que trata este tema. El yacimiento destaca, entre otras razones, porque está formado sobre todo por esqueletos de rorcuales, poco comunes (al contrario que los ya documentados en varias ocasiones de ballenas).
Fig. 1: ejemplos de algunos de los cetáceos presentes en el yacimiento: 4 cachalote, 6 y 7 rorcuales. 
 Contexto geológico y paleontológico
 El yacimiento Cerro Ballena contiene unos aproximadamente 40 esqueletos de ballenas rorcuales, cachalotes, focas, perezosos acuáticos, morsas y depredadores óseos, machos y hembras. Pero no es el único de la zona. A unos 50 km del yacimiento existe otro análogo que conserva 14 individuos de la especie Megaptera novaeangliae. Los alrededores de la cuenca de Caldera, donde se encuentra Cerro Ballena, contienen sedimentos fosilíferos marinos pertenecientes a Mioceno y Plioceno. La correlación con la Formación Pisco y con distintos horizontes de la Cuenca Sacaco, ambas en Perú, permitió datar los esqueletos. La sección de la Formación Bahía Inglesa en la que se encuentra Cerro Ballena se encuentra entre los horizontes de la anterior cuenca, por lo que se deduce que los fósiles están comprendidos entre el Mioceno y el Plioceno. Todo esto queda englobado en las cuencas tectónicas Preandinas entre la Precordillera y el Altiplano. En sentido estricto corresponden a un graben (J. Pueyo, J., 1991).
 
Fig. 2: mapa del Cerro Ballena en la Región de Atacama con la paleo-costa de la cuenca de la Caldera esquematizada.
Fig. 3: información estratigráfica y sedimentológica sobre el yacimiento. Incluye una columna con la diversidad de vertebrados expresada en porcentaje para cada nivel o estrato.
 Descripción de los restos encontrados
 Los análisis tafonómicos del yacimiento revelan varios puntos de interés en común con varamientos masivos de mamíferos marinos modernos. En primer lugar, entre las especies de mamíferos destacan por su abundancia los esqueletos de grandes ballenas barbadas, del clado/familia Balaenopteridae, que parecen ser de las mismas especies y de distintos estados ontogénicos. Otras especies de mamíferos marinos incluidas son Arcrophoa (y un nuevo morfotipo), Scaldicetus, Odobenocetops y Thalassacnus natans (T. natans). En segundo lugar, la tafonomía de los vertebrados marinos fue dividida en tres categorías, articulados, ya sea total o parcialmente, desarticulados (miembros asociados) y aislados (miembros separados). En el caso de los vertebrados que no eran cetáceos los materiales esqueléticos se clasificaron en asociados, semiarticulados y/o desarticulados. Los esqueletos de rorcuales se conservaron intactos e incluso casi enteros gracias a que la sedimentación fue más o menos constante. Esto se ha comprobado al compararlo con pisos mareales modernos y, además, el tamaño de grano apenas varía. Además, su eje mayor estaba orientado perpendicularmente al flujo de la corriente, una característica análoga a los esqueletos de los varamientos modernos.  La posición de su parte ventral sugiere que antes de ser enterrados murieron mientras eran arrastrados por la corriente y su presencia en varios niveles del cerro indica la existencia de un evento de estas características más moderno.

Fig. 4: esqueletos de un rorcual adulto y juvenil desde diferentes perspectivas. Para más información visite http://cerroballena.si.edu
 Resultados de los estudios realizados
  Ensayos realizados en tejidos del estómago de Scomber scombrus han confirmado la presencia de altas concentraciones de saxitoxinas que, junto al extraño comportamiento que tuvo una de las ballenas y los lapsos geográficos y temporales del evento, corroboran el hecho de que se produjo una floración de toxinas algales dañinas (HABs). Las saxitoxinas son unas de las ficotoxinas que contribuyen a la intoxicación paralítica de crustáceos y otros organismos. La ingesta de alimento con contenido de esta toxina puede producir también parálisis (Arturo Hernández, C., 2003). La presencia de óxidos de hierro indica que las concentraciones de este elemento eran altas porque procedían de la escorrentía de los Andes (escorrentía ferruginosa), lo que favoreció su proliferación y limitó el enriquecimiento del plancton del que se alimentaban los cetáceos. Estas floraciones pueden ser causadas tanto por el hombre como por la naturaleza. En el caso de la naturaleza suelen estar ligadas a incremento de temperatura en climas tropicales que producen la proliferación de cianobacterias, la evolución de las mismas que las permite ser más competentes para competir y sobrevivir, el descenso de depredadores que limitan el crecimiento de las cianobacterias y la edad relativa de la eutrofización. La proliferación de estos organismos suele ocurrir en verano, aunque puede tener lugar en cualquier estación, pueden durar días o semanas (dependiendo de la extensión del lugar afectado) y su dominancia suele estar relacionada con la reducción de N y CO2 en el agua (Kenneth Hudnell, H. 2008), como suele ocurrir hoy en día en sitio como Florida (Murrell & Lores, 2004).

Fig. 5: ejemplos de saxitoxinas producidas por dinoflagelados y efectos en el medio ambiente.
 Las similitudes que hay entre Cerro Ballena y los varamientos han ayudado a entender y comprender la causa de la muerte y los factores que hicieron posible la concentración de huesos existente y su preservación. La proximidad de individuos adultos y juveniles de rorcuales y  la proximidad a unos 10 m de diferentes taxones de vertebrados sugieren un enfoque espacial post-mortem anterior al enterramiento. Esta posibilidad queda reforzada por variaciones intraespecíficas e interespecíficas en los taxones. Además las HABs serías las causantes de que no hubiera barrido de vertebrados ni traumas en los esqueletos. También se han encontrado dientes de tiburones y restos de istiofóridos, una familia del suborden Xiphioidei (J. Richards, W., 2004), lo que sugiere que estos depredadores son similares a los anteriores en cuanto a la susceptibilidad ante las HABs, algo que ya se ha visto en varamientos modernos. Los restos aislados de T. natans pueden haber aparecido en el yacimiento de forma incidente o por inhalación de las HABs. En conjunto la tafonomía del cerro indica que la muerte de mamíferos marinos se produjo varias veces, relativamente rápido y tanto de forma extendida como reducida geográficamente, otro rasgo en común con las muertes producidas en las mismas condiciones en el mundo moderno.
 El ambiente deposicional en el que se encontraron los restos enterrados era supramareal, argumento que se basa en evidencias icnológicas y sedimentológicas. Por ejemplo, abundantes trazas de Psilonichnus (interpretadas también como señas de excavación), Skolithos y Ophiomorpha.  Las primeras son verticales y con forma de J, Y o U; las secundas también son verticales, cilíndricas, simples y producidas por alimentación de organismos endobentónicos; y las segundas sistemas de madrigueras (A. Buatois et al., 2011). La presencia de estos icnofósiles no sólo en el sustrato, también en los propios huesos, indica que sirvieron de alimento para los organismos que los originaron.
 Comparar Cerro Ballena con otros varamientos modernos no ayudó a explicar todas las características del cerro, como por ejemplo cuál fue el mecanismo que dispuso varamientos masivos alternos. En este caso supone el desconocimiento de dicho mecanismos. No pudo ser por tsunamis porque no hay estructuras sedimentarias características de los mismos.
 Conclusiones
 La densidad de asociaciones entre los fósiles de Cerro Ballena es la mayor en todo el mundo, tanto de fósiles de cetáceos en general como de rorcuales concretamente. Esta asimetría ecológica surge del cambio de línea de base de las ballenas barbudas. Las pruebas que evidencian la muerte por HABs en el registro fósil son limitantes en tan solo algunos casos, puesto que es difícil atribuirlo como un agente casual. En el Mioceno tardío este evento se produjo repetidas veces, coincidiendo con una bajada del nivel del mar por un aumento del volumen de hielo de la Antártida (M. Censarek, 2002). Las HABs por tanto intoxicaron a múltiples especies de vertebrados marinos por ingesta y/o inhalación causando su muerte de manera relativamente rápida, los restos flotaron hasta la costa donde entraron en un estuario y a partir de las olas generadas por tormentas fueron enterrados prácticamente sin desarticular ni dañar.

Fig. 6: fotografía en perspectiva de Cerro Ballena.
 Bibliografía
 Arturo Hernández, C. 2003. Respuesta de lasalud pública a las armas biológicas y químicas. Organización Mundial de la Salud y Organización Panamericana de la Salud, Pan American Health Org, 175 pp.
 A. Buatois, L. & Mándalo, M.G. 2011. Ichnology:Organism-Substrate Interactions in Space and Time. Cambridge University Press, 15, 59, 60 pp.
 Kenneth Hudnell, H. 2008. CyanobacterialHarmful Algal Blooms: State of the Science and Research Needs. Springer, 4, 734pp.
J. Pueyo, J. 1991. Génesis de formaciones evaporíticas: modelos andinos eibéricos. Ediciones Universitat Barcelona, 389 pp.
 M. Censarek, B. 2002. Thermal history of themiddle and late Miocene Southern Ocean: diatom evidence. Alfred-Wegener-Institut für Polar-und Meeresforschung, 104 pp.
 Murrell & Lores. 2004. Phytoplankton and zooplanktonseasonal dynamics in a subtropical estuary: importance of cyanobacteria. Journal of Plankton Research Vol. 26 No. 3.
 Para más información
 Sobre blooms de algas en Europa: De Jong, F. 2007. MarineEutrophication in Perspective: On the Relevance of Ecology for EnvironmentalPolicy. Springer.

viernes, 23 de mayo de 2014

EDIACARA, NUEVO FOSIL NUEVA ESPECIE

Nilpenia rossi, nuevo género de nuevas especies, que se describen desde el miembro de Ediacara (Cuarcita Rawnsley, Australia del Sur), proporciona evidencia macroscópica de un habitante sésil en sedimentos del precámbrico.

Nilpenia, que van hasta 30 cm de diámetro, se compone de dos zonas, un área central compleja, rodeada por radiación de estructuras de ramificación dicotómica, que disminuyen en diámetro desde el centro hasta los bordes exteriores.
Otros elementos  de la biota Ediacara se interpretan por haber sido incrustados en tapete, pero Nilpenia crecieron de forma única dentro de los milímetros superiores de los sedimentos, desplazando sedimento real con el crecimiento. Esta superficie de sedimento se ondulaba y cohesionaba y bien puede haber incluido una estera endobentónica. La red de ramificación en la superficie superior de los organismos habría estado en contacto con el agua.
Las relaciones filogenéticas de la biota de Ediacara no están bien limitadas y Nilpenia no es una excepción. Sin embargo, la morfología y ecología de Nilpenia representan una nueva estrategia presente en el Ediacaran y no es común el crecimiento en la actualidad.
Esta entrada está basada en:

  • Droser, M., Gehling, J., Dzaugis, M., Kennedy, M., Arroz, D. & Allen, M., 2014. A new Ediacaran fossil with a novel sediment displacive life habitat. Journal of Paleontology, 88: 145 - 151.

La cordillera Flinders de Australia del Sur, expone una de las mejores sucesiones de rocas del neoproterozoico en el mundo e incluye la sección tipo del período de Ediacara. Tanto la estructura como las asociaciones de fósiles Ediacara del área Flinders Ranges, proporcionan información del complejo maquillaje ecológico del primer hábitat multicelular de la tierra (Droser et al., 2006). En particular, extensas exposiciones de plano las camas permiten el análisis de un número significativo de muestras in situ, incluyendo abundantes variantes tafonómicos.

El miembro fosilífero Rawnsley cuarcita se encuentra 50-500 m por debajo de una disconformidad Cámbrico basal  y se compone de capas de arenisca de grano medio depositadas en ambientes de poca profundidad marina con esteras o tapetes microbianos extendidas (Gehling y Droser, 2012).
                                                                                                                                               

Mapa de localidad y de la columna estratigráfica.
Nilpenia rossi n. gen. n. sp. localidad está indicada por la estrella.
Los fósiles son del miembro Ediacara Rawnsley cuarcita.
Se examinaron diversas camas dentro del miembro Ediacara en el sitio de fósiles de Patrimonio Nacional Ediacara en Nilpena, más de 350 muestras se registraron en varios horizontes dentro de una sola facie distintiva de asociación de los miembros de Ediacara. Se producen exclusivamente en las cimas de la cama, ya que las contrapartes esperadas en las láminas limosas suprayacentes no se conservan. Raros senderos atribuibles a Helminthoidichnites son los únicos otros fósiles que se producen en estas tapas de cama.

Nilpenia rossi aparece más comúnmente en delgadas laminas de areniscas de centímetros de espesor que preservan ondulaciones asimétricas de corriente en las cimas de la cama. El tamaño de grano y la evidencia de la deposición de tracción intermitente sugiere un ambiente marino de baja energía. En un plano de estratificación dado, Nilpenia se producía en abundancia. No encontraron evidencias de que los organismos o sus fósiles fueron transportados. La preservación de las superficies onduladas, así como los cuerpos fósiles indican que estas superficies no se modificaron y deben haber sido durante mucho tiempo lo suficientemente estable para el crecimiento del organismo.

Nilpenia rossi, preservadas como moldes externos en las cimas de la cama. 1, holotipo circular en forma de abanico con ranuras de ramificación dicotómica y un centro bien desarrollado conservado en relieve positivo. 2, borde bien definido de chapa ondulada, surcos y crestas compactados. 3, superficie maximizada. 4,5, espécimenes en forma de abanico con ramificaciones dicotómicas. 6, en forma de abanico, ranuras disminuyen de diámetro. 7, ranuras de diámetro decreciente radialmente. 8, la forma sobre la onda, el borde exterior distinta de la hoja. 9,10, pequeñas muestras en forma de abanico con puntos de origen sin medio. Las barras de escala = 1 cm.
La abrumadora mayoría de los espécimenes son menores de 10 cm de diámetro; las muestras pueden ser de hasta casi 30 cm de diámetro. Las ranuras dicotómicamente ramificadas se interpretan como el colapso, la red radial superficialmente enterrada de tubos  que formaban parte de una lamina corrugada radialmente, donde los tubos se derrumbaron después del entierro. Los fósiles resultantes consisten en una red de ranuras de ramificación esbozado por crestas débiles en la superficie de la arena.

Reconstrucción de una muestra en forma de abanico de Nilpenia

La morfología inusual y tafonómica de Nilpenia rossi limita las posibles asociaciones filogenéticas.
Las secciones delgadas revelan que no era un perforador, pero a su vez desplazaba sedimentos al crecer.

Los especímenes de Nilpenia se han interpretado anteriormente como trazas fósiles condritas (Jenkins, 1995) y Oldhamia (Gingras et al., 2011).  Nilpenia se presenta en rama dicotómica, carece claramente del patrón de bifurcación regular de condritas. Oldhamia recta es una traza fósil característica de las rocas del Cámbrico más recientemente interpretado como una huella fósil (Seilacher et al., 2005).

Nilpenia tiene también semejanza con una raíz pero la morfología de sólo unos pocos especímenes sería coherente con este tipo de origen. También es diferente de otras formas de Ediacara en que no tiene definidos los bordes con una morfología externa consistente y una forma geométrica regular.

La morfología macroscópica es similar a un alga incrustante, las algas pueden ramificarse dicotómicamente pero en el caso de Nilpenia el crecimiento coordinado entre las diferentes ramas no es consistente con un alga y por lo general no viven en el sedimento. Pero si muestra una estrategia de crecimiento similar a los hongos y líquenes. Posiblemente creció más en el sedimento para obtener más recursos.

Las interpretaciones sobre la morfología bruta únicamente junto con la naturaleza  del fondo marino de Ediacara no permiten una interpretación clara de las relaciones filogenéticas de este caso. Nilpenia debe considerarse como un organismo de afinidades desconocidas con un patrón de crecimiento convergente en el de hongos existentes, líquenes y algas incrustantes con una ecología a diferencia de otros de la biota de Ediacara y quizás a diferencia de las ecologías comunes hoy en día.


REFERENCIAS
  • Drozer, M. L., Gehling, J. G., & Jensen, S. R. 2006. Assemblage palaeoecology of the Ediacara biota: the unabridged edition ? Palaeogeography, Palaoeoclimatology, Palaeoecology, 232:131-147.

  • Gehling, J. G. & Droser, M. L. 2013. How well do fossil assemblages of the Ediacara Biota time ? Geology, 41:447-450.

  • Gingras, M., Hagadorn, J. W., Seilacher, A., Lalonde, S. V., Pecoits, E., Petrash, D. & Konhauser, K. O. 2011. Possible evolution of mobile animals in association with microbial mats. Nature Geoscience, 4:372-375.

  • Jenkins, R. J. F. 1995. The problems and potential of using animal fossils and trace fossils in terminal Proterozoic biostratigraphy. Precambrian Research, 73:51-69.

  • Seilacher, A., Buatois, L. A. & Mangano, M. G. 2005. Trace fossils in the Ediacaran-Cambrian transition: behavourial diversification, ecological turnover and enrironmental shift. Palaeogeography, Palaeoclimatology, Palaeoecology, 227:323-356.


viernes, 18 de abril de 2014

UN ALGA MULTICELULAR CON PRESERVACION EXCEPCIONAL

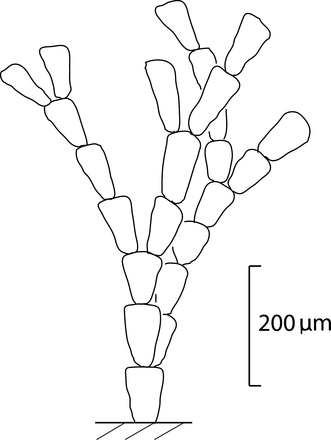
Elainabella deepspringensis, nueva especie, nuevo genero, de un milímetro de ancho, no biomineralizada, fósil conservado tridimensionalmente con ramas segmentadas y estructura celular aparente. Un único ejemplar recuperado de un intervalo de esquisto negro dentro de la porción Ediacara del Miembro Esmeralda de la Formación Deep Spring en el monte Dunfee en Esmeralda County, Nevada, U.S.A. La interpretación del fósil como un talo de un alga multicelular. El análisis espectral EDS indica que la preservación excepcional no se debe a la fosfatación o piritización. Más bien, parece ser un caso de conservación de tipo esquisto de Burgess, que implica la querogenización de organismos no mineralizados. Los fósiles en los esquistos está estrechamente asociado con estromatolitos, y sugiere que E. deepspringensis puede haber sido un epibionte en estromatolitos u otros sustratos firmes.
Esta entrada está basada en el trabajo de investigación de:
  • Stephen M. Rowland & Margarita G. Rodríguez. 2014. A Multicellular Alga with Exceptional Preservation From The Ediacaran of Nevada. Journal of Paleontology, 88(2): 263-268

El intervalo Ediacaran-Cámbrico, en la Gran Cuenca del Sur es una de las secciones de referencia estándar para la correlación global y la caracterización de los eventos asociados con la transición Proterozoico-Fanerozoico (Ahn et al, 2011). La sucesión Ediacaran - Cámbrica en la región White-Inyo-Esmeralda de California del ese y el oeste de Nevada es especialmente importante debido a la presencia de facies intercaladas  siliciclásticas y carbonato, permitiendo así el uso de quimioestratigrafía de isotopo de carbono, así como bioestratigrafía de  trazas fósiles (Corsetti y Hagadorn, 2003).


Localización del área de campo y el contexto estratigráfico. La columna estratigráfica izquierda muestra la litología, la quimioestratigrafía y las características bioestratigráficas de la Formación Deep Spring en el monte Dunfee y también a posición de Elainabella. La columna a la derecha muestra las características bioestratigráficas y litológicas del intervalo de transición Neoproterozoico-Cámbrico en la región White-Inyo-Esmeralda de la Gran Cuenca del Sur. Ambas columnas se han adaptado de Corsetti y Hagadorn (2003).

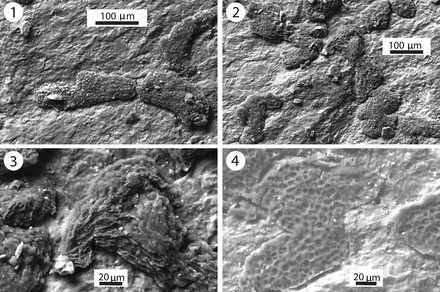
El material recogido de un intervalo de esquisto negro, unos 45 metros por encima de la base del miembro de Esmeralda en el monte Dunfee presentó fósiles no calcificados en buen estado de conservación. El estudio de Stephan Rowland y Margarita Rodríguez se describe un taxón de este conjunto de material. El espécimen fue revestido y examinado en el laboratorio de la UNLV Electron  Microanalysis and Imaging con un microscopio electrónico de escaneo, equipado con detectores de electrones secundarios y retrodispersados y un sistema Oxford ISIS EDS carbono.


Micrografías electrónicas de barrido del espécimen. 1.- bifurcamiento del talo segmentado. 2.- zona central del talo. 3.- segmento alargado del talo, estructura interpretada como cuchillas, paredes de las células alargadas. 4.- patrón reticular, interpretado como estructura celular.

La energía dispersiva espectroscópica de rayos X de la Elainabella deepspringensis revela muy fuertes picos de carbono y oxigeno, con pequeñas cantidades de fosforo, azufre, calcio y esto siguiere que el fósil conserva su composición orgánica, y que no ha sido fosfatado o piritizado. La historia tafonómica de este fósil es por lo tanto diferente de los embriones de animales en tres dimensiones conservados y los talos de algas con estructura celular en la Formación Doushantuo, en que la fosfatación era el proceso clave (Xiao et al., 1998 , 2004).


Reconstrucción propuesta de Elainabella deepspringensis, Flexible, erguida, talo bifurcado unido a una superficie rígida. 

Las características morfológicas de Elainabella no encajan cómodamente en cualquiera de los conocidos de tipo Ediacara. La morfología segmentada y ramificada de Elainabella es similar a la morfología de algunas algas rojas, verdes y heterokontofitas existentes, aunque por supuesto los taxones existentes son típicamente mucho mas grandes (Bold y Wynne, 1985).

El talo de Elainabella tiene una estructura reticulada visible, diferencia marcada con las algas verdes  codiacean, con células multinucleadas que carecen de paredes transversales (Lee,1999).
  
 Los autores de la investigación llegan a la conclusión de que Elainabella es un alga multicelular con afiliación incierta. Convergencia morfológica es común entre los clados de algas multicelulares, lo que frusta la asignación de un alga fósil a un taxón particular.

Otra característica remarcable es la preservación de tipo de esquisto Burgess. La preservación de este fósil sugiere que los trabajos futuros sobre la biota de Deep Spring en el monte Dunfee puede arrojar nuevas luces en la paleontología de Ediacara.

REFERENCIAS
  •  AHN, S. Y., L. E. BABCOCK, AND J. S. HOLLINGSWORTH. 2011. Revised stratigraphic nomenclature for parts of the Ediacaran-Cambrian Series 2 succession in the southern Great Basin, U.S.A. Memoirs of the Association of Australasian Palaeontologists, 42: 105-114.
  • BOLD, H. C. AND M. J. WYNNE. 1985. Introduction to the Algae: Structure and Reproduction. Prentice-Hall, Englewood Cliffs, New Jersey, 720 p.
  • CORSETTI, F. A. AND  J. W. HAGADORN. 2003. The Precambrian-Cambrian transition in the Southern Great Basin, U.S.A. The Sedimentary Record, 1: 4-8.   
  • LEE, R. E. 1999. Phycology, 3/e. Cambridge, Cambridge University Press, 614 p.
  • XIAO, S., Y. ZHANG, AND A. H. KNOLL. 1998. Three-dimensional preservation of algae and animal embryos in a Neoproterozoic phosphorite. Nature, 391: 553-558.
  • XIAO, S., A. H. KNOLL, X. YUAN, AND C. M. PUESCHEL. 2004. Phosphatized multicellular algae in the Neoproterozoic Doushantuo Formation, China, and the early evolution of florideophyte red algae. American Journal of Botany, 91: 214-227.