Mostrando entradas con la etiqueta Amniota. Mostrar todas las entradas

jueves, 14 de febrero de 2019

¿Ornitorrincos en el Triásico? Pues...¡si!

¡Hola a tod@s! Bienvenid@s a mi primera entrada del Blog de Paleontología de la UCM, soy Ester Saucedo y os quiero hablar de un reciente descubrimiento... ¡Un "primo" de los Ornitorrincos!
Eretmorhipis carrolldongi era un animal marino de, aproximadamente, 70 cm de largo con cuatro patas palmeadas, ojos y cabeza muy pequeños respecto al tamaño del resto del cuerpo, y como aspecto curioso, de su columna vertebral sobresalían unas láminas de hueso (como Stegosaurus, aunque de mucho menor tamaño). Tras esta pequeña introducción, primero os voy a hablar un poco del Ornitorrinco. Aquí os dejo una foto de una cría de este curioso animal, ¿a qué es una ricura?


Figura 1: Bebé Ornitorrinco. Fuente: "Pinterest".


El Ornitorrinco (Ornithorhynchus anatinus) es un animal muy curioso... se podría decir que todo él es una especie de Quimera: Pico de pato, pelaje y cuerpo que se asemejan al aspecto de un Castor, (incluida su cola en forma de pala), y reproducción ovípara (Si, ponen huevos). 
Pertenece a la orden de los Monotremas (mamíferos que siguen teniendo algunas características típicas de los reptiles, como la reproducción ovípara, o la cloaca (canal donde confluyen tracto digestivo, urinario, y reproductor)). A modo de curiosidad, los Equidnas ("Puerco espines") y los Ornitorrincos son los que forman este grupo. Os dejo unos enlaces al final de la entrada que aumentan la información.


Figura 2: Esqueleto de Ornitorrinco. 
       

Son endémicos del este de Australia y de la isla de Tasmania, siendo un símbolo de esas tierras. Otra característica que merece la pena mencionar es que son venenosos. Poseen un espolón en las patas posteriores (traseras), aunque esta característica solo se da en los machos.


Figura 3: Espolón en ext.posterior de Ornitorrinco macho.
                           

Ahora si, vamos a conocer a ese "supuesto pariente" de este tan curioso animal que es el Ornitorrinco.
Como ya mencionaba al inicio de esta entrada, se ha descubierto un especimen de Eretmorhipis carrolldongi. Un reptil marino descubierto en Hubei (China) que vivió en el Triásico temprano (se inicia hace unos 252,2 Ma y termina hace 247,2 Ma (millones de años). En este período, la zona dónde se encontraron los fósiles estaba cubierta de un mar no muy profundo (1m aprox.), sobre una plataforma de carbonato de extensión de más de 160 Km. Los fósiles fueron hallados en huecos profundos bajo esta plataforma carbonatada.


Figura 4: primer fósil con cráneo de E. carrolldongi.


Figura 5:
Vista dorsal de los cráneos de Ornithorhynchus anatinus y Eretmorhipis carrolldongi. (a) E. carrolldongi. (b) O. anatinus, basado en una imagen publicada. Colores: negro, fenestraciones craneales; marrón, surco prenasal; cartílagos azul claro, prenasal y labial; amarillo claro, hueso; Rosa, surco para cartílago labial. Símbolos: exn, nariz exterior; fn, fenestraciones nasales, ubicada debajo de exn; lc, cartílago labial; Ig, surco labial para cartílago labial; nc, cápsula nasal; op, os paradoxum; orbe, órbita pf, foramen pineal; pg, surco prenasal; pnc, cartílago prenasal de homología desconocida; utf, fenestración temporal superior; * Foramen sin nombre para el paso de una rama del nervio etmoidal; ** Foramen análogo a *. Las líneas de puntos marrones marcan la extensión anterior del exterior de la nariz y, por lo tanto, de la cápsula nasal y las estructuras asociadas, esclareciendo que el espacio intercrural de Eretmorhipis está frente a la cápsula nasal, a diferencia de Ornithorhynchus. Las barras de escala son de 1 cm de largo.


Por sus restos óseos se ha podido comprobar que la relación de parentesco entre estos dos animales puede ser posible. Algunos aspectos que coinciden son el tamaño de la cabeza y los ojos respecto al cuerpo (los ojos diminutos, entorpecían la visión y caza de presas), el hocico, del que se ha podido comprobar que sujetaba un pico cartilaginoso, y la gran abertura interna en el mismo, igual que en los Ornitorrincos. También se ha podido comprobar que en la parte inferior tenía unos mecanorreceptores (tacto) que probablemente le ayudaran a detectar presas. El estudio también mostró que es uno de los amniotas (clado de vertebrados tetrápodos) más antiguos, si no el que más.

Creo que las partes más destacables son los ojos y el hocico. En el estudio realizado por Cheng, L. et al., muestran que la mandíbula de Eretmorhipis era singular respecto a otros miembros de la orden Hupehsuchia (ya extinta) en que las dos ramas mandibulares son casi idénticas en un porcentaje de 90%. Esto hace que el perfil mandibular coincida con el cráneo. Este aspecto en otro miembros difería en que sus mandíbulas eran rectas y muy delgadas. Se sugirió que quizá entre las ramas mandibulares de Eretmorhipis era posible una alimentación parecida a la del Pelícano de nuestros días, en las que con la abertura de la boca ingería agua y con ello, otros seres vivos.

En ese nuevo esqueleto encontrado se muestra por primera vez el aspecto lateral que tenía Eretmorhipis, del que han podido extraer las conclusiones de que la cola y la zona del abdomen eran bastante rígidos, con lo cual, parece ser que solo podía flexionar caderas y cuello (¡pobrecillo!).

Como no, hay muchas imágenes que muestran la idea aproximada de como sería realmente Eretmorhipis carrolldongi. Por desgracia, al ser un animal ya extinto, nunca lo sabremos. Aquí os dejo uno de los dibujos que creo que mejor lo representan, y con esto, me despido hasta la siguiente entrada en el Blog. Espero que os haya gustado :)


Dibujo realizado por "Prehistorybyliam" en "DevianArt"

Ester.

Información y definiciones sobre la fauna tratada en los párrafos 1, 2 y 3:

He elegido las páginas de Wikipedia porque creo que es una gran fuente de información apta para todos los públicos


Imágenes:
https://www.pinterest.es/pin/408631366175054169 (Figura 1)
https://www.expertoanimal.com/curiosidades-sobre-el-ornitorrinco-21229.html (Figura 2)
https://www.quo.es/naturaleza/g1805/el-ornitorrinco-caracteristicas/ (Figura 3)
https://www.deviantart.com/prehistorybyliam/art/Eretmorhipis-783558933


REFERENCIAS:


  • Cheng, L., Yan, Ch., Motani, R., Jiang, D-Y., Tintori, A. & Rieppel, O. 2019. Early Triassic marine reptile representing the oldest record of unusually small eyes in reptiles indicating non-visual prey detection. Scientific Reports,9: 152 (2019).
  • Howland, H. C., Merola, S. & Basarab, J. R. The allometry and scaling of the size of vertebrate eyes. Vision Res 44, 2043–2065, https://doi.org/10.1016/j.visres.2004.03.023 (2004).
  • C. Gramling. Tiny eyes make a bizarre, ancient platypus-like reptile even weirder. Science News Online, January 24, 2019.
  • viernes, 12 de junio de 2015

    De reptil en reptil, nuestro recorrido termina aquí.

    Como si de una partida al juego de la oca se tratase, hemos llegado al final del tablero. Nuestro recorrido ha finalizado, pero siempre acompañados por nuestros grandes amiguitos: las tortugas, las serpientes, los cocodrilos y nuestros más recientes protagonistas, los dinocéfalos.

    Empezamos la partida…
    En la primera tirada del dado tuvimos la suerte de poder viajar hasta distintos rincones de nuestro planeta (Canadá, Inglaterra, Estados Unidos y España). En ellos se descubrieron diversos fragmentos de caparazones de tortuga (figura 1) que nos llevaron a plantearnos cuál era realmente el hábitat en el que vivían y se desarrollaban.


    Figura 1. Porque las tortugas también pueden ser una gochas.

    viernes, 13 de junio de 2014

    Vuelta al mar, evolución en los océanos

    Introducción 

    Si alguien ha leído mis entradas sabrá que el tema de las mismas han sido los océanos, específicamente la evolución en los océanos de unas criaturas que siempre me han llamado fuertemente la atención, los reptiles y mamíferos marinos y por extensión el resto de los tetrápodos marinos. Desde las ballenas actuales, los amenazadores mosasaurios del mesozoico, los elegantes plesosaurios que hoy en día recuerdan a todos al famoso monstruo de leyenda escocesa, los simpáticos delfines y sus lejanísimos pero sorprendentemente parecidos primos del Mesozóico los ictiosaurios o, por qué no, los pingüinos que despiertan en todos simpatía, todos ellos tetrápodos marinos. Criaturas que volvieron al mar desde la tierra, buscando alimento o refugio se sumergieron de nuevo en las aguas y las aguas les cambiarían a ellos para siempre.

    Imagen de un rorcual extraida de National Geographic.

    Mas el espíritu puramente sentimental solo fue el principio, tras bucear un poco en la bibliografía vi en ellos un interesantísima muestra de cómo opera la evolución en los océanos, y por que no la evolución en general. Había sobre estos seres una enorme variedad de estudios  y gran cantidad de restos fósiles que los hacian ideales para que los investigadores pudieran llegar a entender su evolución. A lo largo de 3 entradas hemos intentado hacer una aproximación a la adaptación al agua que han llevado a cabo los tetrápodos terrestres repetidamente desde el Triásico hasta casi la actualidad. Durante el curso de la elaboración de las entradas surgió la contraposición de dos teorías sobre cómo opera la evolución, la teoría de la reina roja y la teoría del bufón de la corte. Todo llevo a una reflexión más profunda, ya no solo sobre la reconquista del mar por los descendientes de seres que crearon nuevas y complejas estrategias para poder salir de el, si no sobre como opera la evolución para dar lugar a los seres que se suceden en la extensa historia de este pequeño planeta azul en medio del vacío interestelar.

    Las entradas publicadas 

    Hagamos primero un repaso de lo que cada entrada nos ha aportado: 

    En la primera entrada publicada: “Macroevolución de los tetrápodos marinos: motores físicos y biológicos a lo largo de 250 millones de años de evolución en los ecosistemas marinos.” se habló de los tetrápodos marinos a un nivel general. EL artículo de base utilizado de era un artículo bibliográfico situado al principio de una revista lo que le daba un carácter mucho más variado, atacando el tema desde varias épocas y apoyándose en los artículos actualizados que se publicaban en ese mismo número. Esta entrada es la más extensa de las tres y ofrece una visión global de la evolución de los tetrápodos terrestres que reconquistan el medio marino. 

    En segunda entrada publicada: “Nuevo fósil lleva una reinterpretación del origen del viviparismo en los primeros reptiles completamente marinos.”, tratamos el tema desde un punto de vista más específico. En el artículo de Montani et al. (2014) se venía a analizar un nuevo fósil de ictiopterigio basal en posición de alumbramiento, y llevaba a los investigadores a plantearse si realmente fue el viviparismo una adaptación al mar o algo heredado de tierra. Una herencia de tierra encajaría con la rápida ocupación de los medios marinos que realizaron estos animales. 

    Por último en la tercera entrada “La evolución en los medios marinos, una aproximación a través de los mosasaurios” Se habló del artículo de polcyn et al. (2014), donde estudiando a los mosasaurios se puede ver un ejemplo de conquista del medio marino. Primero una primera fase de conquista del medio marino favorecido por lo que este ofrece, seguido de una fase de diversificación normalmente debida a factores físicos, cambios ambientales debidos a cambios astronómicos y tectónicos y a la propia búsqueda de nuevos nichos. Y la última fase de desaparición, en el caso de los mosasaurios en el evento KT debido a cambios ambientales a los que les fue imposible adaptarse pese a su capacidad adaptativa que habían mostrado en eventos de extinción más pequeños a lo largo del Cretácico Superior. 

    Los tetrápodos marinos, ideas principales sobre su evolución 

    Más las entradas están ahí para quien desee leerlas, ahora desarrollemos las ideas que se han tratado y quizás alguna que no se trató. 

    “Nada en biología tiene sentido sin la luz de la evolución” decía Theodosius Dobzhansky en 1973 en un artículo en el que él, si bien desde su evolucionismo teísta, defendía la teoría de la evolución como la gran explicación de lo que observamos en la naturaleza. 

    Los tetrápodos marinos son un orden amplio y como tales nos dan una visión amplía del proceso evolutivo. Dentro de ellos hemos podido ver formas distintas de adaptarse al océano si bien han llegado siempre a formas parecidas y a soluciones similares. La convergencia de la evolución de estos seres se ha tratado en otras entradas de este blog, por ejemplo en la entrada sobre melanismo convergente en reptiles marinos. En mis propias entradas he hablado sobre este tema por ejemplo al describir las formas pisciformes que adquieren los tetrapodos al volver al mar, que convergen a las mismas formas de los peces. y existen multitud de ejemplos.

    Y esto nos lleva a la primera idea interesante de la evolución en estos animales y extrapolable por supuesto a otros, la constricción evolutiva que puede significar la forma de la que procedes. Así, como veíamos cuando hablamos de la evolución de los tetrápodos, ciertas características exigen de herencias para desarrollarse. El más claro ejemplo en los tetrápodos marinos es el desarrollo de la alimentación suspensivora que evolucionó en las ballenas. Se ha propuesto que las neoformas de la zona de la orofaringe de los mamíferos que se desarrollaron con la evolución de la masticación (figura 1), fueron en última instancia las que les permitieron desarrollar esta forma de alimentación a base de ingestión masiva de piezas pequeñas (Collin & Janis 1997). Los reptiles se vieron limitados a la predación presa a presa nunca pudiendo desarrollar ni ocupar nichos que podrían haber significado posibilidades evolutivas.

    Figura 1: Muestra la diferencia en la zona de la orofaringe que permitió la el desarrolló de la alimentación suspensívora. Abajo el mamífero presenta dos conductos lo que les permite respirar y succionar a la vez
    Fuente: Collin & Janis (1997)


    El siguiente punto importante que se extrae de las entradas, relacionado con el anterior, es la ventaja evolutiva que puede significar una herencia específica. El viviparismo es sin duda una ventaja a la hora de ocupar el mar de nuevo después de haber desarrollado una enorme cantidad de adaptaciones a la tierra como el propio método de reproducción representado por el huevo amniota. El huevo amniota que se desarrolla como adaptación a medios secos y que por tanto no puede sobrevivir en el agua. Aquellos tetrápodos amniotas que necesitan poner huevos tienen la necesidad de volver a tierra a depositarlos lo que dificulta una adaptación completa al mar, pues se mantiene la necesidad de desplazarse por tierra de alguna manera. Así pues aquellos amniotas que ya eran vivíparos u ovovivíparos cuando comenzaron a ocupar medios acuáticos tuvieron más facilidad para decir adiós a la tierra para siempre y evolucionar hacia formas acuáticas que se extendieron por los océanos. Recordemos al ictiopterigio de la segunda entrada, que ya daba a luz muy poco después de la extinción del Pérmico en los mares del Triásico, o el primer mamífero que daría lugar a las ballenas, un pequeño mamífero terrestre perteneciente a los artiodactilos (Thewissen et al. 2009) el cual era un placentario y por tanto viviparo. 

    Beluga dando a luz.
    http://savenaturesavehuman.blogspot.com.es/2012/04/beluga-whale.html

    La ultima idea importante que se desarrolla, ya sea en mar o en tierra, es la causa que produce un determinado cambio en la vida. ¿Que lleva al surgimiento de una nueva especie o grupo? ¿Que lleva a la diversificación y a la explosión de un grupo que pasa de un género a decenas de ellos? La respuesta que hemos podido encontrar en la literatura es que no es nunca un solo factor el que producirá un cambio de gran escala. No solo eso sino que los científicos no estarán siempre de acuerdo en cuál es el factor que provocara estos cambios. Cuando hablábamos de la evolución de los tetrápodos en sus 250 millones de historia vimos como el registro fósil mostraba correlación con los cambios ambientales que había sufrido el medio (figura 2), de igual manera ocurría en el registro fósil de los mosasaurios estudiado mas a fondo en la tercera entrada. Los científicos pueden trazar y correlacionar determinados pasos evolutivos observados con lo que estaba pasando en el planeta a nivel geológico y astronómico. Y lo mas interesante es que estas correlaciones se demuestran una y otra vez verdaderas, la evolución a gran escala parece ir condicionada por el cambio mismo del planeta lo que nos lleva al siguiente punto.

    figura 2: Figura que muestra los periodos de existencia de los principales clados de tetrapodos marinos desde el Triásico hast anuestros dias enfrentados con los distintos factores físicos que se han podido medir por distintos metodos.
    fuente: Pyenson et al. 2014


    La evolución, sus motores, las teorías 

    La causa de los cambios es al final un tema que abordaban los artículos de una u otra manera. Las dos teorías principales, la darwinista teoría de Van Valen de la reina roja o la teoría del bufón de la corte, están presentes en las ideas de cada investigador. La primera, expuesta por primera vez por Leigh Van Valen en 1973 que recibe su nombre de la teoría de "La Reina Roja" de "Alicia través del espejo", nos dice que la evolución esta regida por el equilibrio de presiones biológicas, especialmente la competencia, como decía la reina roja del libro "corre todo lo que puedas para mantenerte en el mismo lugar" (Benton 2009). Las segunda teoría, la teoria de "Bufon de Corte", estipula que la evolución, especialización y extinción rara vez ocurren sin la presencia de un cambio impredecible en el medio físico, siendo los factores físicos como cambios climáticos y ambientales los que determinan los cambios en la forma de los animales y de la vida en la tierra en general (Benton 2009). Por supuesto tanto Darwin como Van Valen dejaron sitio para influencias abióticas en su visión principalmente botica de la evolución (Benton 2009).

    Pero está claro que las causas son más complejas y normalmente se hablara de un multinivel en el que en algunos puntos puede prevalecer una teoría y en otros otra o en algunos casos combinarse. Los biólogos tradicionalmente han siempre tendido a pensar en términos de la teoría de la reina roja mientras que los geólogos han derivado más hacia la teoría del bufón de la corte (Benton 2009). 

    La reina roja puede ser la que mande a escalas pequeñas temporales, a niveles microevolutivos. Pero la observación del registro fósil muestra una clara tendencia a la evolución puntuada regida por cambios ambientales a niveles temporales mayores, de unos 100000 años, cuando hablamos de macrovelución (Benton 2009) tal como hemos visto en los tetrápodos marinos. Podría decirse que las tendencias microevolutivas, muchas veces más bioticas y en el terreno de la reina roja, son rotas por los grandes cambios físicos que sufre la tierra y que producen las grandes extinciones y las explosiones de especialización que se producen y que dan lugar a lo que vemos en el registro fósil (Erwin 2001).

    Incluso pueden encontrarse casos donde surgimientos asociados a competencia pura entre grupos se han descartado con estudios posteriores. Un caso claro de esto podría ser el surgimiento de los dinosaurios que vinieron a sustituir a los crurotarsos como grupo dominante a finales del Triásico. En un principio siempre se asoció a un competencia directa de los dos grupos en la que la superioridad de los dinosaurios llevo a su diversificación en deprimento de los crurotarsos a los que superaron. Sin embargo estudios recientes (Brusatte et al. 2008) hablan más bien de un cambio ambiental que llevo a la disminución de los crurotarsos y una ocupación de los espacios dejados por estos por parte de los dinosaurios. Dinosaurios y crurotarsos convivieron 30 millones de años sin que los primeros superaran a los segundos, y solo fue después de la disminución de los crurotarsos cuando los dinosaurios comenzaron a ocupar el espacio que estos dejaron. Sería una vez más un cambio abiótico el causante de una pauta macroevolutiva clara tal como hemos visto en las entradas.

    Conclusiones finales

    Sin querer alargar más esta entrada solo cabe concluir que: de lo leído en los artículos se ha obtenido una idea clara de asociación de la evolución con los cambios ambientales. Los cuales parecen regir la vida en el planeta. 

    Estamos siempre sujetos a los cambios geológicos que son los que parecen acabar teniendo la ultima palabra en la evolución a lo largo de largos periodos de tiempo, cuando no son cambios catastróficos debidos por ejemplo a la colisión de un meteorito. Los cambios en la posición de los continentes tienen enorme influencia en la historia de la vida creando nuevas especies, cambiando las condiciones de los mares y favoreciendo surgimiento, especiación y extinción de grupos enteros en periodos inmensos de tiempo. 

    Aunque competencia entre especies influye cuando estamos hablando de escalas microevolutivas y tiene su palabra en procesos a gran escala también, pero las tendencias macroevolutivas nos llevan siempre a los cambios físicos. Recordemos los gráficos de la primera entrada que nos mostraban las extinciones masivas (figura 1) y como nuevos grupos sufrían explosiones evolutivas para ocupar rápidamente los huecos dejados. Como los ictiosaurios ocuparon rápidamente los mares del Triásico o como un pequeño mamífero se hizo con los mares tras la desaparición en el KT de los grandes reptiles marinos. Los cuerpos de las criaturas que no habían sufrido grandes cambios morfológicos de repente experimentaban una explosión de formas que les llevaban, por ejemplo, desde un pequeño animal peludo que se buscaba la vida en las aguas costeras y continentales de principios del Cenozóico a convertirse en unos millones de años en un gigante engullendo plancton en los océanos fríos o en un cazador de calamares gigantes en los abismos.

    Lo que hoy vemos sobre la tierra es el resultado de millones de años de cambios. Cambios constantes que fueron dejando tras de si millones de seres que no pudieron adaptarse a los cambios que les vinieron encima. No siempre sobrevivió el más fuerte si no muchas veces el que tubo más suerte, aquel ser en el cual una característica otorgada por la evolución resulto ser adecuada y le dio las herramientas para sobreponerse a lo que otros que hasta ese momento eran los amos de la tierra no pudieron. 

    Y es que la vida se aferra a su existencia, encajando los golpes constantes del medio en el que ha surgido y que, como los martillazos de un herrero de ideas cambiantes, la van moldeando de mil formas posibles.

    La paleontología se adentra en el océano del pasado en busca de las respuestas que el registro fósil nos pueda dar sobre la vida sobre la tierra, sobre que nos ha traído a ser lo que somos a nosotros y a lo que nos rodea. Busca sin cesar respuestas a multitud de preguntas y muchas preguntas quedaran sin responder, pero, lo interesante siempre es el camino pues que terrible seria la vida si de repente ya lo supiéramos todo. 

    Muchas gracias si han llegado hasta aquí y tengan ustedes buen verano.

    Referencias 

    Benton. M. J. (2009). The Red Queen and the Court Jester: Species Diversity and the Role of Biotic and Abiotic Factors Through Time. Science 323 nº. 5915 pp. 728-732

    Brusatte, S. L. Benton, M. J. Ruta, M. & Lloyd, G. T. (2008).Superiority, Competition, and Opportunism in the Evolutionary Radiation of Dinosaurs. Science Vol. 321 no. 5895 pp. 1485-1488

    Collin, R. & Janis, C.M. (1997). Morphological constraints on tetrapod feeding mechanisms: why where there no suspension-feeding marine reptiles? J.M. Callaway, E.L. Nicholls (Eds.), Ancient Marine Reptiles, Academic Press, California

    Erwin, D. H. (2001). Macroevolution is more than repeated rounds of microevolution. Evolution & Development,Vol 2, Issue 2, pages 78–84a pp. 461–466.

    Motani R, Jiang D-y, Tintori A, Rieppel O & Chen G-b (2014) Terrestrial Origin of Viviparity in Mesozoic Marine Reptiles Indicated by Early Triassic Embryonic Fossils. Plos one

    Polcyn, M. J. ,Jacobs, L.L. ,Araújo, R. ,Schulp, A.S. & Mateus, O. (2014). Physical drivers of mosasaur evolution. Palaeogeography. Palaeoclimatology. Palaeoecology. 400, pp. 17–27.

    Pyenson, Nicholas D., Kelley, Neil P., Parham & James F. (2014). Marine tetrapod macroevolution: Physical and biological drivers on 250 million years of invasions and evolution in ocean ecosystems. Palaeogeography Palaeoclimatology Palaeoecology, 400: 1-8


    Thewissen, J. G. M., Cooper, L. N., George, John C. & Bajpai, S. (2009).From Land to Water: the Origin of Whales, Dolphins and Porpoises. Evo Edu Outreach 2: 272–288

    miércoles, 11 de junio de 2014

    REPTILES


    Las entradas que he realizado en este blog han tratado sobre reptiles de un periodo especifico Cretácico y de su identificación bien por vertebras o por dientes.
    He querido que estas entradas trataran de reptiles dado que me parecen muy importantes ya que supusieron la auténtica colonización del medio terrestre.

    En el Carbonífero superior un orden de anfibios (Anthracosauria) dio origen a los reptiles, en concreto a Captorrinomorfos, y esto supuso la colonización del medio terrestre ya que mostraban numerosas adaptaciones para evitar la deshidratación que supone la vida en un ambiente fuera del agua. Estas características son: un ventrículo parcialmente separado, una epidermis con escamas para evitar la evaporación del agua corporal, conductos excretor y reproductor independientes y un huevo protegido por cáscara (amniota).
    La complejidad del huevo amniota sugiere que la transición entre los anfibios y los reptiles no tuvo lugar más que una vez, y que por lo tanto el grado evolutivo de los reptiles es monofilético. Así el huevo amniota se convirtió en la característica evolutiva más importante de los reptiles y constaba de:
    Una membrana protectora calcificada en cuyo interior una serie de membranas alimentan y protegen al embrión. El embrión está conectado a un saco vitelino (un saco de sustancias de reserva de las que se alimenta el embrión durante su estancia en el interior del huevo) y a una cavidad alantoidea (donde se acumulan las sustancias de desecho en forma de precipitados nitrogenados). A su vez la membrana amniótica, que cubre la cavidad amniótica (donde se sitúa el embrión), lo protege del contacto de la cascara cubriéndolo.
    Este huevo supuso la total independencia del medio acuático por parte de los reptiles, ya que la cavidad amniótica rellena de líquido semeja el ambiente acuático necesario para el desarrollo del embrión.
    Para clasificar las nuevas líneas evolutivas que surgieron en los reptiles amniotas, científicos realizaron una clasificación basándose en el número de ventanas o aberturas en la región temporal del cráneo. Según esta clasificación hay cuatro tipos de cráneos:

     
    Figura 1. Tipos de cráneos de reptiles amniotas basada en el número de ventanas en la región temporal el cráneo.


    Según este carácter el árbol evolutivo de los amniotas sería:


    Figura 2. Árbol evolutivo de los amniotas. En rojo están los grupos a los que pertenecen los reptiles que he tratado en mis otras entradas.

    Como se ve en la figura 2, todos los amniotas, tanto los extintos como los que aún viven se agrupan en dos grupos iniciales:
    -          Synapsida: que dieron lugar a los mamíferos.
    -          Sauropsida: los reptiles propiamente dichos.

    En esta entrada nos vamos a centrar en los Diapsida y más en concreto en los órdenes de reptiles mencionados en mis otras entradas.


    Plesiosauria:

    El orden Plesiosauria (plesiosaurios) consiste en dos superfamilias. El Pliosauroidea (pliosaurios) son típicamente de cuello corto, mientras que Plesiosauroidea (plesiosaurios) son típicamente de cuello largo. Sin embargo, las generalizaciones basadas en la longitud del cuello se consideran poco fiables ya que la investigación sobre la evolución y filogenia plesiosaurio sigue revelando una historia más complicada. La familia Polycotylidae, por ejemplo, es un grupo del Cretácico Tardío de plesiosaurios de cuello corto que se consideraron tradicionalmente como pliosaurios. Sin embargo, hay evidencias craneales (Carpenter, 1997) que apuntan a una afinidad plesiosauroidea para ellos. Del mismo modo, los géneros de pliosauroidae Eurycleidus y Attenborosaurus son pliosaurios con cuellos relativamente largos.


    Figura 3. Esqueleto de Meyerasaurus victor en vista ventral (inferior) (de Smith [2008], redibujado de Fraas [1910]).


    Plesiosauria se caracteriza por la presencia de un conjunto de caracteres derivados y adaptaciones secundarias extremas a la vida en el agua. Todos los plesiosaurios tienen cuatro grandes aletas y cuerpos generales rígidos. El esqueleto postcraneal de plesiosaurios se puede dividir en el esqueleto axial (la columna vertebral y las costillas) y el esqueleto paraxial (cinturas de las extremidades y las extremidades). Todos ellos poseen las siguientes sinapomorfias (caracteres derivados compartidos) en su esqueleto (Rieppel, 1997; Carroll, 1988; Storrs, 1993):
    -          Ventralmente expandido (alargado) cinturas pectoral y pélvicas. Las cinturas pectorales se expanden en placas delgadas ventrales, el principal elemento de la cintura pectoral son los coracoides y la escápula siempre que éstos cumplan en la superficie lateral (exterior) que forman una cavidad glenoidea para acomodar la extremidad anterior. La escápula puede o no puede cumplir en la línea media dependiendo de la especie. Un gran complejo de clavícula-interclavícula está presente en los primeros plesiosaurios, pero se pierde en formas posteriores.
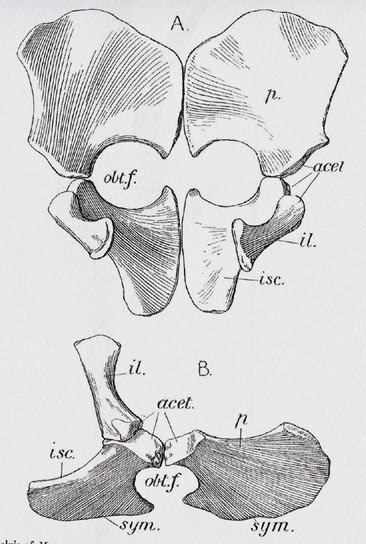
    La cintura pélvica al igual que en la cintura pectoral los elementos forman placas expandidas. El pubis está situado por delante y el isquion posteriormente. El ilion es un pequeño elemento que sirve de puente entre la cintura escapular y las costillas sacras y sólo contacta con el isquion en plesiosaurios.

    Figura 4. Cintura pectoral, A: anterior, y B de lado.

     
    Figura 5. Cintura pélvica, A: anterior y B: de lado.


    -          Ausencia de huesos nasales.
    -          Ausencia de contacto entre ilion y pubis.
    -          Tronco relativamente corto (cuerpo) y la cola.
    -          Gastralia muy bien desarrolladas y posicionadas entre la cintura pectoral y pélvica es una cesta de apretadas costillas ventrales o gastralia. Cada fila se compone de un elemento central en forma de boomerang, y cerca de tres simples gastralia en cada lado.
    -          Acortamiento y ensanchamiento de huesos de las extremidades e hiperfalangia: tanto el primer plano y las patas traseras se han convertido en aletas en forma de alas, y se parecen mucho entre sí. El propodial (húmero / fémur) es relativamente largo, los epipodiales (radio, cúbito / tibia, peroné) se acortan, haciéndose más anchos que largos en algunos taxones. Los mesopodiales son en forma de disco. Los metapodiales y falanges (huesos de los dedos) son bastante cortos y entallados. Muestran hiperfalangia (aumento en el número de huesos en los dígitos). Puede o no puede haber más o menos número de huesos accesorios en la zona epi-mesopodial, dependiendo de la especie.


    Figura 6. Extremidades vistas desde abajo, A: extremidad posterior y B: extremidad anterior.

    -          Dos agujeros pequeños subcentrales nutritivos (aberturas pequeñas, presumiblemente para los vasos sanguíneos o los nervios) en la superficie ventral del centrum (una excepción: Brachauchenius y los agujeros reducidos en algunos otros pliosaurios).


    Squamata:

    Son un grupo de gran éxito, esta familia de reptiles incluye lagartos (por ejemplo, gekkota, Escincos, camaleones), serpientes y anfisbenas. Con más de 7.000 especies, están presentes en todos los continentes excepto en la Antártida, y han invadido en ambientes marinos (por ejemplo, serpientes de mar, Mosasaurios), así como la diversificación en muchas formas terrestres especializadas diferentes, incluyendo animales de madriguera (por ejemplo anfisbenas), planeadores (por ejemplo, Draco), los corredores bípedos (por ejemplo, Basiliscus), los escaladores (como los camaleones) y depredadores activos (por ejemplo Varanus).

    Además de la condición de reptil ovivíparo, algunos grupos dan a luz a crías vivas (vivíparos). Lo más sorprendente es que hay al menos ocho grupos que contienen una especie con sólo miembros femeninos, que se  reproducen por partenogénesis.

    Squamata es el grupo hermano de Rhynchocephalia (Tuatara y parientes extintos), compartiendo un ancestro común alrededor de hace 250 millones de años al comienzo del Mesozoico. Juntos, forman el grupo monofilético Lepidosauria.

    Sinapomorfias:
    Kinesis craneal (un alto grado de flexibilidad entre los huesos de la parte posterior del cráneo, que permite movimientos relativos entre ellos).
    Hemipenes apareados (presentes en todos los lepidosaurios) son totalmente eversible.
    Dentición pleurodont (dientes fijados en el lado de las superficies interiores de las mandíbulas, y reemplazados periódicamente).
    Pérdida de gastralia (costillas ventrales del vientre).
    Quinto metatarsiano de doble gancho, funcionalmente análogo al talón de los mamíferos.
    Complejidad de la articulación mesotarsal (en comparación con lepidosaurios no squamata).

    Características:
    Debido a que vivían en las zonas secas, desarrollaron escamas y placas para protegerse de la desecación.
    Ellos desarrollaron gruesas capas de la epidermis y de la dermis con el fin de protegerse a sí mismos. La epidermis es una estructura uniforme de material muerto que ya no puede crecer; lagartos y serpientes cambian de piel periódicamente.
    La coloración y patrón de los lagartos y las serpientes se determina por el tipo y la disposición de las células de pigmento que son controladas por los nervios o las hormonas. El color o patrón de un lagarto y serpiente cambia cuando se está ocultando o realizando un ritmo diario de actividad.


    Figura 7. Cráneos de Lepidosauria. Articulaciones del cráneo y la mandíbula (flechas) ayudan a distinguir los miembros del orden Squamata (lagartos y serpientes) el uno del otro y de los miembros del orden estrechamente relacionado Rhynchocephalia. Cráneo de un Tuatara (a), un miembro de la orden Rhynchocephalia, es relativamente rígida. Los pivotes de la mandíbula inferior del extremo inferior del hueso cuadrado (verde) y el hueso quadratojugal adyacente. En cráneos de squamata, incluyendo los camaleones (b), la mandíbula pivota desde el extremo inferior del hueso cuadrado. El extremo superior del hueso cuadrado también disfruta de una cierta libertad de movimiento, una condición conocida como streptostyly, por lo que es posible que el animal mueva la parte posterior de la mandíbula inferior más libremente en la manipulación de presa. Muchos squamata tienen una articulación adicional en el cráneo que permite flexionar el hocico hacia arriba y hacia abajo. En la mayoría de los lagartos (c), esa articulación está detrás de los ojos (mesokinesis). Pero en las serpientes (d), esta articulación se encuentra en frente de los ojos (prokinesis). Las serpientes tienen otras articulaciones del cráneo y de la mandíbula flexibles; la víbora (d), por ejemplo, también puede rotar sus huesos de la mandíbula superior que tienen los colmillos.

    Una regresión en el arco del lóbulo temporal proporciona espacio para los músculos más grandes.
    Las dos primeras vértebras en la parte de atrás (eje y Atlas) se modifican de tal manera para hacer posible un movimiento de rotación del cráneo. Para poder ver bien el entorno y defenderse de los depredadores.
    El estribo y los huesos individuales en los tímpanos reconocen bajas frecuencias. Por lo tanto, los lagartos y las serpientes eran capaces de oír los depredadores y sus presas.
    Los dientes están anquilosados ​​o fijados por el tejido calcificado. Los dientes están fijos en la parte superior de una cresta ósea en la mandíbula. A lo que se llama dentición acrodont.
    La cintura pélvica consta de tres elementos vinculados: ilion, pubis e isquion.
    El íleon se conecta en un extremo a dos vértebras sacras por costillas y en el otro extremo de dos elementos de la cintura ventral, pubis e isquio, por tejido conectivo fibroso.


    Saurischia:

    La característica principal de Saurischia es la pelvis, pero también tiene otras. Los saurisquios tienen la pelvis como la de los lagartos, lo cual es diferente a la pelvis de aves ornitisquios. Saurisquios incluye a muchos dinosaurios, incluyendo los saurópodos y los terópodos.
    La pelvis tiene la sínfisis mirando hacia la parte delantera del animal, a diferencia de los ornitisquios, que tienen el pubis señalando hacia la parte posterior del animal como un pájaro.


    Figura 8. Pelvis de Saurischia y Ornitischia.

    Sauropoda eran grandes herbívoros como Apatosaurus y Diplodocus. Theropoda eran carnívoros bípedos, como Compsognathus (tamaño de una gallina), Deinonychus, Velociraptor, Dilophosaurus y Tyrannosaurus.

    Los dinosaurios saurisquios tienen un conjunto de características únicas. Las siguientes son las características básicas, a parte de la pelvis, de un dinosaurio Saurischia:

    -          Herbívoros.
    -          Cabezas pequeñas con forma de espátula o los dientes en forma de lápiz para rasgar bien las plantas.
    -          Por lo general, caminaron a cuatro patas, pero pudieron extenderse hasta dos con el fin de alcanzar el follaje.

    Los terópodos aparecieron por primera vez durante el Triásico tardío hace unos 230 millones de años (Ma) y se incluyeron como los únicos grandes carnívoros terrestres del Jurásico Temprano por lo menos hasta el final del Cretácico, hace unos 65 Ma. En el Jurásico, las aves evolucionaron de pequeños terópodos especializados coelurosauria, y están hoy representados por 9.900 especies vivas. Entre las características que unen los dinosaurios terópodos con las aves son los pies de tres dedos, una espoleta, huesos llenos de aire, ovivíparos y (en algunos casos) plumas.

    Si bien históricamente se  generalizada a los terópodos como carnívoros, de hecho muestran una amplia gama de dietas. Todos los hallazgos iniciales de fósiles de terópodos mostraron que eran principalmente carnívoros. Especímenes terópodos conocidos por los científicos en los siglos 19 y principios del 20 todos mostraban afilados dientes con bordes dentados para cortar carne, y algunos ejemplares aún mostraron evidencia directa de la práctica abusiva. Por ejemplo, un fósil de Compsognathus fue encontrado con un lagarto en su estómago, y una muestra de Velociraptor se encontró encerrado en combate con un Protoceratops.

    Los primeros terópodos no carnívoros encontrados fueron therizinosaurs, originalmente conocidos como segnosáuridos. Therizinosaurs poseían grandes abdómenes para la elaboración de alimentos de las plantas, y las pequeñas cabezas con pico y dientes en forma de hoja. Continuando el estudio de los terópodos maniraptora y sus relaciones mostró que therizinosaurs no fueron el único miembro de este grupo que no fuera carnívoro. Varios otros linajes de maniraptora muestran adaptaciones para una dieta omnívora.


    Crocodilia:

    Las 22 especies de cocodrilos existentes son notablemente similares. Diversos detalles morfológicos han sido utilizados para subdividir en tres familias, Alligatoridae (los caimanes, Caiman, Palaeosuchus, Melanosuchus y caimanes Alligator), Crocodylidae (Crocodylus y Osteolaemus cocodrilo enano) y el Gavialidae (el gavial Gavialis y Falso gavial Tomistoma) cuyas afinidades son inciertos dentro y fuera del grupo. Australia tiene dos especies de cocodrilos, de agua salada o cocodrilo de estuario, Crocodylus porosus y cocodrilo de agua dulce, Crocodylus johnstoni.

    Los cocodrilos son estudiados como reptiles con forma de lagarto, con cabeza y tronco bien blindados y con la piel y escamas córneas, reforzadas con placas óseas. En Crocodylia modernos, la cabeza es generalmente aplanada y el hocico alargado. Las cápsulas nasales se encuentran cerca de la punta de la boca y las fosas nasales que puede cerrar en las narinas externas tienden a elevarse por encima de la punta de la boca; así sumergidos son poco visibles cuando cazan a presas terrestres. Los miembros de Alligatoridae tienden a tener hocicos grandes, mientras que los de la Crocodylidae van desde amplio a largo y delgado. En gaviali el hocico es extremadamente delgado.

    El esqueleto de cocodrilo es típico de la de los tetrápodos en general y de los archosaurios, en particular, con el cráneo y la pelvis particularmente especializados. También de interés son la estructura de las vértebras de la cabeza (atlas y axis), los osteodermos, y la gastralia, o costillas de estómago, que protegen la superficie ventral.

    Como archosaurios, los cocodrilos son diápsidos, aunque la ventana post-temporal se reduce. La ventana palatal y mandibular externa y los latero-esfenoides osificados están presentes. La pared de la caja craneana está osificada, pero supra-temporales y post-frontales están ausentes. El pterigoideo y hueso cuadrado se adhieren ajustados a la pared lateral de la caja craneana y la muesca ótica cierra posteriormente. Todas las especies carecen de agujero parietal. El premaxilar, se amplía postero-dorsalmente, aislando los fosas nasales externas de los maxilares. Fosas nasales internas se prolongan posteriormente por un paladar secundario que se forma de los procesos palatinos de los premaxilares, maxilares, palatinos y pterigoideos y las coanas secundarias abiertas dentro de los pterigoideos.

    La piel de los cocodrilos es gruesa y córnea, y está revestido de escamas no solapadas conocidas como scutes, dispuestas en filas y patrones regulares. Estas escamas están siendo producidas por la división celular en la capa subyacente de la epidermis, el estrato germinativo, y la superficie de los escudos individuales sacude periódicamente. La superficie exterior de los escudos se compone de la relativamente rígida beta-queratina, mientras que la región bisagra entre los escudos contiene sólo la más flexible alfa-queratina.

    Muchos de los escamas se ven reforzadas por placas óseas conocidas como osteodermos, que son del mismo tamaño y forma que las escamas superficiales pero crecen por debajo de ellas. Estas son las más numerosas en la espalda y el cuello del animal y pueden formar una armadura protectora. A menudo tienen, crestas, bultos prominentes y están cubiertos en beta-queratina resistente. La mayor parte de la piel de la cabeza se fusiona con el cráneo. La piel en el cuello y los flancos está suelta, mientras que en el abdomen y la parte inferior de la cola están revestidas en grandes escamas cuadradas dispuestas en filas ordenadas.


    Bibliografía y referencias:


    Carpenter, K. 1997. Comparative cranial anatomy of two North American Cretaceous Plesiosaurs. 191-216. In Callaway, J. M and Nicholls, E. L. (eds.). Ancient Marine Reptiles. Academic press. London. 501pp.

    Carroll, R. L. 1988. Vertebrate Paleontology and Evolution. Freeman. New York. 698pp.

    Fraas, E. 1910. Plesiosaurier aus dem oberen Lias von Holzmaden. Palaeontographica, 57, 105-140.

    Rieppel, O. 1997. Part 2: Sauropterygia. Introduction. 107-119. In Callaway, J. M and Nicholls, E.L. (eds). Ancient Marine Reptiles. Academic press. London. 501pp.

    Smith, A. S. 2008. Fossils explained 54: plesiosaurs. Geology Today. 24, (2), 71-75.

    Storrs, G. W. 1993. Function and phylogeny in sauropterygian (Diapsida) evolution. American Journal of Science. 293-A. 63-90.


    Trabajos utilizados:

    Phil R. Bell, Federico Fanti, Mark T. Mitchell and Philip J. Currie (2014) Marine Reptiles (Plesiosauria and Mosasauridae) from the Puskwaskau Formation(Santonian-Campanian), West-Central Alberta. Journal of paleontology, V. 88 nº 1 p. 187-194.


    Gren, J. A. & Lindgren, J. (2014): Dental histology of mosasaurs and a marine crocodylian from the Campanian (Upper Cretaceous) of southern Sweden: incremental growth lines and dentine formation rates. Geological Magazine, V. 151 nº 1, p. 134-143.