Mostrando entradas con la etiqueta Neotheropoda. Mostrar todas las entradas

domingo, 6 de marzo de 2016

El dinosaurio jurásico más antiguo

Artículo:

The Oldest Jurassic Dinosaur: A Basal Neotheropod 

from the Hettangian of Great Britain

  • David M. Martill, 
  • Steven U. Vidovic, 
  • Cindy Howells, 
  • John R. Nudds

Los dinosaurios terópodos son extremadamente raros en el Jurásico inferior y la mayoría de los informes son solamente de restos fragmentarios. Esta rareza se traduce en una diferencia considerable en nuestro conocimiento de estos animales en un momento determinado, todo parece indicar que los terópodos se diversificaron con rapidez. Los primeros terópodos reportados en Europa fueron en Escocia, Inglaterra, Francia y Bélgica  y corresponden al Hettangiense, pero todos  estos hallazgos son de material fragmentario.
Imagen 1 Esquema del mapa que muestra Lavernock Point en el lado de Gales del estuario Severn.

Materiales, métodos y análisis utilizados

Los bloques más grandes se secaron durante dos semanas bajo periódico húmedo para evitar la contracción rápida y agrietamiento de un fino barniz de lutita en la superficie de piedra caliza. Los diversos laboratorios limpiaron y prepararon mecánicamente para exponer los huesos usando un polvo abrasivo. Pequeñas fracturas de huesos fueron reparados usando pegamento. Losas con los huesos representados como moldes externos fueron fundidas en un compuesto de silicio, replicado en fibra de vidrio y resina, y pintados para restaurar huesos que se sabe que han estado presentes y se presumen perdidos en el mar. Existe la posibilidad de que parte de la muestra permanece en el acantilado, pero la repetición de un examen cuidadoso de la pared del acantilado no consiguió hallar nuevos huesos.
Para establecer la posición filogenética de la muestra se analizó en un análisis cladístico compuesta de 366 caracteres y 46 taxones, de los cuales 18 se encuentran fuera de Dinosauria.
Gracias a él análisis fue posible atomizar 25 de los caracteres compuestos en la lista de caracteres de Ezcurra y Brusatte lo que resulta en más de 28 caracteres. Un carácter compuesto adicional se redujo de tres estados de caracteres a dos. Para demostrar el efecto de atomización caracteres compuestos se llevó a cabo un experimento utilizando procedimientos jacknife (navaja de bolsillo). El análisis de la navaja de bolsillo se realizó de forma manual utilizando Microsoft Excel para generar caracteres aleatorios de omisión en cada repetición del procedimiento.
El índice de retención de conjunto (PRI) que es independiente del número de carácter no cambió entre el análisis original y el nuevo análisis, debido a que la codificación era exactamente la misma. Del mismo modo, una gráfica de la diferencia entre longitud vs. el número de caracteres eliminados demostró la misma velocidad de decaimiento de longitud para ambas matrices. Sin embargo, la, nueva matriz más grande fue de sólo 15 pasos, a pesar de otros 25 caracteres adicionales. Además, la diferencia en la longitud relativa tomada de las líneas de regresión de la trama jacknife  fue de aproximadamente 60 pasos menos para la matriz más grande. Por lo tanto, la jacknife demuestra los beneficios de la atomización de caracteres compuestos.
El análisis final se realizó en TNT mediante el uso de "nueva tecnología". Se utilizaron pesos predeterminados para ajustar los pesos de los caracteres durante el análisis, con el fin de combatir los errores de codificación o conflictos de carácter que no se resolvió mediante la atomización de caracteres compuestos. El MPT resultante se almacena en la memoria RAM del ordenador se analizó adicionalmente con ATB intercambiando algoritmo de búsqueda en "tradicional" de TNT para resolver los MPT máximos posible.

¿Cómo datamos a este nuevo espécimen?

A pesar de que no se encuentra in situ, el nuevo dinosaurio está contenido en uno de los dos horizontes de piedra caliza dentro de la formación de Blue Lias inferior, y específicamente dentro de la parte baja del acantilado. Por desgracia, este horizonte es una parte de la secuencia la cual no se ha datado cronológicamente, son sitios por debajo de la primera aparición de la amonita Psiloceras planorbis, históricamente utilizado por estratígrafos británicos para definir la base del Jurásico, y por encima de la última aparición de un marcador de conodontos del Triásico, Chirodella verecunda Swift, 1995.
En las secciones europeas y norteamericanas en todo el Triásico / Jurásico la primera aparición de la ammonites apsiloceratacean está marcada por la aparición de Psiloceruserugatum, seguido de P.imitansand P.antecedans, todos los cuales se utilizan para definir subzonas debajo de la primera aparición de P.planorbis. En Austria P.spelaetirolicum, P.cf.pacificum y P.exgr. P. tilmanni aparecieron en estratos por debajo de P.planorbis mientras que en Bélgica y noreste de Rusia, Primapsiloceras primulum se encontraron en estratos por debajo de P. planorbis. Estas subzonas del Jurásico temprano no han sido detectadas en la secuencia de estratos. Sin embargo, se encontraron ammonites precediendo Psiloceras planorbis en la parte basal de la formación Blue Lias  a sólo 22 km al  sur de Lavernock Point .Estos hallazgos incluyen ejemplos de P. cf.erugatumand Neophyllites sp., lo que demuestra que los ammonites  del Jurásico llegaban a las Islas Británicas.
La pregunta sigue siendo, si el nuevo dinosaurio atribuirse al Triásico tardío, o al Jurásico temprano, el punto de vista geoquímico puede ayudar a resolver la edad estratigráfica precisa del estrato en el que se encontró el dinosaurio. Varios estudios isotópicos han situado el hallazgo cerca del límite Triásico-Jurásico.
Imagen 2 Registro estratigráfico de Lavernock Point.

Un estudio realizado en Lavernock Point, encontró una anomalía negativa δ13C org en la parte superior de Langport del grupo Triásico, mientras que un análisis exhaustivo e integrado de una sección en el lado sur del estuario de Severn en St Audries 'Bay, también detectó una anomalía negativa de isótopos δ13C org que comienza justo por encima de las últimas apariciones de conodontos, pero antes de la primera aparición de la amonita. Esta excursión negativa también se ha detectado en otro lado, y en una sección en el estado de Nueva York, EE.UU., Ward et al. Este análisis sirvió para situar la base del Jurásico.

¿Triásico tardío o Jurásico temprano?

Situamos la base del Jurásico en los Alpes del Norte austriacos. En esta localidad se define la base del Jurásico en la primera aparición de los ammonites Psiloceras spelae tirolicum. Estas especies de ammonites  afloran aproximadamente 5 metros por encima de la localización isotópica propuestas como la base del Jurásico.
Teniendo en cuenta que el nuevo dinosaurio se produce en una posición estratigráfica por encima de la anomalía isotópica δ13 Corg; que se produce por encima de un límite litológico claro que representa una facie distinta que cambia de poca profundidad a la profundización de las condiciones marinas; que se asocia con una fauna Jurásico, y analiza que el polen también pertenece al Jurásico, el nuevo dinosaurio debe situarse a principios del Hettangiense. Por lo que lo más probable es que pertenece a la subzona  P.erugatum del P.tilmanni , datada en unos 201,3 ± 0.2million años.

Una vez resuelto el problema de su datación nos encontramos con un nuevo problema, su situación filogenética.

Problema filogenético:

Imagen 3 Análisis cladístico de Dracoraptor hanigani.
Dracoraptor hanigani posee 18 apomorfías, algunos de los cuales convergen con los artrópodos más derivados, también conserva las condiciones plesiomórficas, tales como tres dientes en el premaxilar.
Dracoraptor hanigani es claramente un dinosaurio saurischian a causa de su construcción pélvica, mientras que la posesión de dientes de sierra entre otros caracteres demuestra sus semejanzas a los terópodos. El análisis cladístico sitúa a Dracoraptor dentro de Neotheropoda, pero es basal en el clado. Dracoraptor se puede distinguir de Neotheropoda del Triásico tardío y Jurásico Temprano en una variedad de criterios, no necesariamente apomórficos. Sin embargo, Dracoraptor posee una combinación de caracteres basales que hacen que sea difícil colocarlo filogenéticamente. La fosa antorbital superficial del maxilar y la presencia de una muesca de obturador en el isquion indica afinidades Neotheropoda pero muchos de las otros sinapomorfias Neotheropoda no pueden ser identificados en Dracoraptor.
Dracoraptor conserva muchas características basales dentro de los artrópodos. Es probable que las operaciones de preparación de la muestra permitan la identificación de caracteres adicionales que pueden resolver mejor sus afinidades filogenéticas.

La presencia de Dracoraptor en estratos marinos puede ser de poca importancia en relación con la ecología del animal, pero lo hemos restaurado como un animal que habitaba en la línea de costa.
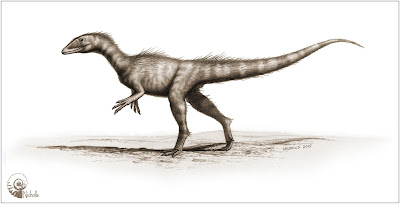
Imagen 4 Dracoraptor hanigani restaurado como una mezcla entre predador y carroñero.


Referencias
1.Benton MJ, Martill DM, Taylor MA. The first Lower Jurassic dinosaur from Scotland: limb bone of a ceratosaur theropod from Skye. Scottish Journal of Geology, 1995; 31:177–82. doi: 10.1144/sjg31020177
o    View Article
·         PubMed/NCBI
·         Google Scholar
2.Owen R. II. Scelidosaurus harrisonii Owen of the Lower Lias. A monograph of the fossil Reptilia of the Lias formations. Palaeontographical Society Monographs, London. 1863; 14:1–26.
·         View Article
·         PubMed/NCBI
·         Google Scholar
3.Woodward AS. Note on a megalosaurian tibia from the Lower Lias of Wilmcote, Warwickshire. Annals and Magazine of Natural History, Series 8, 1908; 1:257–65. doi: 10.1080/00222930808692397
·         View Article
·         PubMed/NCBI
·         Google Scholar
4.Andrews CW. On some remains of a theropodous dinosaur from the Lower Lias of Barrow-on-Soar. Annals and Magazine of Natural History, Series 9 1921; 8:570–76. doi: 10.1080/00222932108632620
·         View Article
·         PubMed/NCBI
·         Google Scholar
5.Cuny G, Galton PM. Revision of the Airel theropod dinosaur from the Triassic-Jurassic boundary (Normandy, France). Neues Jahrbuch für Geologie und Paläontologie, Abhandlungen. 1993; 187:261–88.
·         View Article
·         PubMed/NCBI
·         Google Scholar
6.Delsate D, Ezcurra MD. The first Early Jurassic (late Hettangian) theropod dinosaur remains from the Grand Duchy of Luxembourg. Geologica Belgica, 2014; 17:175–81.
·         View Article
·         PubMed/NCBI
·         Google Scholar
7.Allain R, Tykoski R, Aquesbi N, Jalil N-E, Monbaron M, Russell D, et al. An abelisauroid (Dinosauria: Theropoda) from the Early Jurassic of the High Atlas Mountains, Morocco, and the radiation of ceratosaurs. Journal of Vertebrate Paleontology, 2007; 27:610–24. doi: 10.1671/0272-4634(2007)27[610:aadtft]2.0.co;2
·         View Article
·         PubMed/NCBI
·         Google Scholar
8.Hammer WR, Hickerson WJ. A crested theropod dinosaur from Antarctica. Science. 1994; 264:828–30. pmid:17794724 doi: 10.1126/science.264.5160.828
·         View Article
·         PubMed/NCBI
·         Google Scholar
9.Raath M.A. Morphological variation in small theropods and its meaning in systematics: evidence from Syntarsus rhodesiensis; pp. In: Carpenter K, Currie PJ. (eds.), Dinosaur Systematics: Approaches and Perspectives. New York. Cambridge University Press, 1990; 91–105.
10.Rowe T. A new species of the theropod dinosaur Syntarsus from the Early Jurassic Kayenta Formation of Arizona. Journal of Vertebrate Paleontology. 1989; 9:125–36. doi: 10.1080/02724634.1989.10011748
·         View Article
·         PubMed/NCBI
·         Google Scholar
11.Talbot M. Podokesaurus holyokensis, a new dinosaur of the Connecticut Valley: American Journal of Science. 1911; 31:469–79. doi: 10.2475/ajs.s4-31.186.469
·         View Article
·         PubMed/NCBI
·         Google Scholar
12.Welles SP. New Jurassic dinosaur from the Kayenta Formation of Arizona. Bulletin of the Geological Society of America. 1954; 65:591–98. doi: 10.1130/0016-7606(1954)65[591:njdftk]2.0.co;2
·         View Article
·         PubMed/NCBI
·         Google Scholar
13.Carrano MT, Hutchinson JH, Sampson SD. New information on Segisaurus halli, a small theropod dinosaur from the Early Jurassic of Arizona. Journal of Vertebrate Paleontology. 2005; 25:835–49. doi: 10.1671/0272-4634(2005)025[0835:niosha]2.0.co;2
·         View Article
·         PubMed/NCBI
·         Google Scholar
14.Xu X, Zhao X, Clark JM. A new therizinosaur from the Lower Jurassic Lower Lufeng Formation of Yunnan, China. Journal of Vertebrate Paleontology. 2001; 21: 477–83. doi: 10.1671/0272-4634(2001)021[0477:antftl]2.0.co;2
·         View Article
·         PubMed/NCBI
·         Google Scholar
15.Barrett P. The affinities of the enigmatic dinosaur Eshanosaurus deguchiianus from the Early Jurassic of Yunnan Province, People’s Republic of China. Palaeontology. 2009; 52:681–88. doi: 10.1111/j.1475-4983.2009.00887.x
·         View Article
·         PubMed/NCBI
·         Google Scholar
16.Huene F. Die fossile Reptil-Ordnung Saurischia, ihre Entwicklung und Geschichte, Monographien zur Geologie und Palaeontologie. 1932; 1:1–361.
·         View Article
·         PubMed/NCBI
·         Google Scholar
17.Tucker ME, and Burchette TP. Triassic dinosaur footprints from south Wales: Their context and preservation. Palaeogeography, Palaeoclimatology, Palaeoecology. 1977; 22:195–208. doi: 10.1016/0031-0182(77)90028-1
·         View Article
·         PubMed/NCBI
·         Google Scholar
18.Kermack D. New prosauropod material from South Wales. Zoological Journal of the Linnean Society, 1984; 82:101–17. doi: 10.1111/j.1096-3642.1984.tb00538.x
·         View Article
·         PubMed/NCBI
·         Google Scholar
19.Yates AM. A new species of the primitive dinosaur Thecodontosaurus (Saurischia: Sauropodomorpha) and its implications for the systematics of early dinosaurs. Journal of Systematic Palaeontology. 2003; 1:1–42. doi: 10.1017/s1477201903001007
·         View Article
·         PubMed/NCBI
·         Google Scholar
20.Storrs G. Tetrapods. In: Swift A, Martill DM. (eds) Fossils of the Rhaetian Penarth Group. Palaeontological Association London, Field Guides to Fossils Series. 1999; 9: 223–38.
21.Galton PM. Bones of large dinosaurs (Prosauropoda and Stegosauria) from the Rhaetic Bone Bed (Upper Triassic) of Aust Cliff, southwest England. Revue de Paléobiologie, Genève. 2005; 24:51–74.
·         View Article
·         PubMed/NCBI
·         Google Scholar
22.Newton ET. On a megalosaurid jaw from Rhaetic beds near Bridgend (Glamorganshire). Quarterly Journal of the Geological Society of London. 1899; 55:89–96. doi: 10.1144/gsl.jgs.1899.055.01-04.08
·         View Article
·         PubMed/NCBI
·         Google Scholar
23.Galton PM, Yates AM, Kermack D. Pantydraco n. gen. for Thecodontosaurus caducusYates, 2003, a basal sauropodomorph dinosaur from the Upper Triassic or Lower Jurassic of South Wales, UK. Neues Jahrbuch für Geologie und Paläontologie—Abhandlungen. 2007; 243:119–25. doi: 10.1127/0077-7749/2007/0243-0119
·         View Article
·         PubMed/NCBI
·         Google Scholar

miércoles, 11 de junio de 2014

Los Terópodos

Introducción
Los terópodos, son un suborden de dinosaurios saurisquios que vivieron desde el Triásico superior hasta el Cretácico superior(hace aproximadamente entre 228 y 65 millones de años, desde el Carniano hasta el Mastrichtiano), en lo que hoy es América, Europa, África, Asia, Oceanía y la Antártida. No obstante la extinción de finales del Cretácico, este orden ha pervivido hasta nuestros días bajo la forma de las aves modernas, sus directos descendientes.
La palabra terópodo quiere decir “pie de bestia” y como los sauropodomorfos y los ornistiquios, los terópodos tienen su origen durante el Triásico al evolucionar desde formas semejantes a los ornitodiros lagosúquidos. El terópodo más primitivo encontrado es Herrasaurus y aunque muchos autores no lo han considerado como un verdadero terópodo, ya que este conservaba rasgos antiguos, de una forma semejante a el, surgieron los verdaderos terópodos, en un primer lugar los Ceratosaurios y los Carnosauridos durante finales del Triasico, y los Allosauridos durante principios del Jurasico, junto con otros tipos durante el Cretacico.
La mayoría de los terópodos mantuvieron la postura bípeda carnívora, pero evolucionaron hacia una gran variedad de formas y tamaños siendo los mas espectaculares de todos los que originaron las aves.
Hasta los años 80 los terópodos se dividían en dos grupos según su tamaño; los pequeños y agiles eran los Celurosaurios, que fueron los que originaron las aves, mientras que los grandes predadores como el Allusaurus se agrupaban en los Carnosaurios, que evolucionaron de los Celurosaurios primitivos.Esta clasificación decayó tras el descubrimiento de un terópodo de tala media durante los 60 y 70 llamado Deinonychus. Asi una de las clasificaciones más aceptada es la que vemos a continuación.


Características de los terópodos:
· Dientes normalmente comprimidos lateralmente, curvados con los dos extremos serrados.
· Articulación intramandibular presente, extremo posterior del hueso anular en posición anterior al articular, unión entre palatino y maxila extensa.
· Cráneo neumatizado, cavidades nasales que comunican lateralmente con un gran divertículo en la fosa anterorbita, otros divertículos se extienden por el palatino y los huesos periorbitales, otros divertículos presentes desde la garganta al oído medio y caja craneal.
· Hueso lacrimal que se extiende hasta la zona superior del cráneo.
· El hueso opistótico siempre se encuentra fusionado al occipital.
· Normalmente 23 vertebras presacrales.
· Epipofisis prominentes en las vértebras cervicales.
· Escapula con forma de correa, larga y estrecha, huesos bastante neumatizados, como las costillas, vertebras…
· Humero menor del 50% la longitud del fémur.
· Metacarpos porosos para la fijación de ligamentos, falanges de la mano alargadas, perdida o reducción de los dedos 4 y 5.
· Garras largas, curvadas y afiladas.
· Mayor diversidad que los dinosaurios herbívoros pero las especies menos localizadas especialmente.

Los terópodos basales
Los Herrerasauridae son considerados los dinosaurios más primitivos, vivieron durante finales del Triásico y no llegaron al Jurásico.
Hay polémica sobre si deben ser considerados terópodos primitivos o antecesores de las dinosaurios presaurisquios.
Ya que presentan rasgos intermedios entre ambos. Medían entre 2 y 11m, tenían dientes curvados y puntiagudos, cuello corto y brazos y patas largos. Huesos de la cadera inclinados hacia la parte posterior como los de los Ornistiquios y el pubis todavía en el extremo tenía forma de bota como los terópodos avanzados.
Los huesos de las patas tenían algunas similitudes también con los de los Saurópodos, por lo que también podrían haber sido los Herrerasauridos sus antecesores.
La especie característica es la representada a continuación, Herrerasaurus ischigualastensis.


Los siguientes grupos que surgieron a continuación se consideraron verdaderos terópodos y se agrupan bajo el término de Neotheropoda. El grupo mas primitivo de los neoteropodos son los Ceratosauria, que vivieron desde finales del Triásico a finales del Jurásico que se extinguieron.
A menudo presentaban sobre sus cabezas crestas que posiblemente se empleaban en luchas con machos rivales. A este grupo pertenece también Coelophysis, un dinosaurio del que se han encontrado multitud de esqueletos, algunos completamente articulados. Tras su estudio las teorías creadas apuntan a un posible viviparismo y canibalismo.

Los coelofísidos y los neoceratosaurios forman un grupo evolutivo (Ceratosauria) que se desmarca de las líneas posteriores de terópodos que se agrupan bajo el nombre de Tetanurae. Se ha sugerido que estos dos grupos pueden no formar una línea evolutiva apartada del resto de terópodos, ya que algunos caracteres evolucionados encontrados en los neoceratosauros no se encuentran en los coelofísidos, por lo que los neoceratosaurios podrían estar más cercanos a los tetanurinos que a los coelofísidos.
Los tetanurinos o "colas tiesas" son un grupo de líneas evolutivas paralelas que parecen haber evolucionado hacia formas cada vez más avianas que aparecieron a principios del Jurásico. Por ejemplo, sus cajas torácicas indican que tenían un sistema sofisticado de sacos pulmonares como los que tienen las aves actuales. Se deduce de esto una alta tasa metabólica que parece indicar la aparición de una cierta endotermia.
Esta rama evolutiva incluye a las aves y a los más clásicos terópodos, como el Allosaurus y el Tyrannosaurus. Todos ellos perdieron el dedo IV de la mano, su maxila estaba enfrente de los ojos, la escápula tenía forma de cinta y la fíbula se había reducido enormemente, además de otros caracteres que indican una ascendencia común. Se ha tendido a dividir a los tetanuros en otros dos grupos evolutivos, los Carnosaurios y los Coelurosaurios, aunque son más bien cajones desastre en los que se reúnen formas muy diferentes.
El primer grupo que se separó de los tetánuros fueron los Torvosauroidea, también conocidos como Megalosaurios. Evolucionaron desde un antepasado común con los ceratosaurios durante 
finales del Triásico y parecen haber sido los grandes predadores durante mediados del Jurásico hasta que fueron desplazados por los Allosauridos; sus formas durante el Cretácico eran semiacuáticas y piscívoras, confinadas principalmente a Gondwana.  Desparecieron a principios del Cretácico. Representan un grupo temprano que no encaja con los ceratosaurios y los otros tetanuros, aunque la tendencia actual es a considerarlos como un grupo primitivo de los tetanuros; durante mucho tiempo fueron incluidos dentro de los Carnosaurios. Los Torvosaurios o megalosaurios se dividen en tres familias, la Megalosauridae, Spinosauridae y Eustreptospondylidae, pero sólamente hablaremos de las dos primeras.


Los aveterópodos
Los aveterópodos consitituyen la línea evolutiva que continúa tras la escisión de los Torvosauroidea de los tetanuros. Básicamente, los Avetheropoda constituyen las líneas de los terópodos avanzados, las aves y los allosauridos, como se ve en el árbol evolutivo del principio de la página.
A mediados del Jurásico se separó la primera línea, los Carnosaurios, que actualmente están formados únicamente por los Allosauridos. Antiguamente los carnosaurios englobaban a todos los terópodos de gran tamaño, incluido el Tyrannosaurus, hoy día, el término Carnosaurio se refiere más a un ecotipo que a un grupo evolutivo y que estaría formado por grandes terópodos carnívoros, con grandes cráneos, cuellos cortos y pequeños miembros delanteros.
El grupo de los Alosauridos, originado a principios del Jurásico, está formado por tres familias que forman un grupo monofilético, y que son Sinraptoridae, Allosauridae yCarcharodontosauridae.
    ·  Los Sinraptoridae son los alosauridos más primitivos, ya que aparecieron a principios del Jurásico en China. Presentaban numerosas crestas elaboradas sobre la cabeza (figura derecha, Sinraptor dongi). 
 ·  Los Allosauridae evolucionaron desde un antepasado común con los sinraptores y los desplazaron durante el Jurásico superior. Los dos grupos eran bastante semejantes en tamaño y apariencia, siendo las diferencias entre ambos pequeños detalles. A este grupo pertenece el tan conocido Allosaurus además de otros comoNeovenator, Valdoraptor. Allosaurus fragilis fue uno de los mayores carnívoros de su época hasta que aparecieron los Tyrannosauridos 50 millones de años después. Sus largas y musculosas patas traseras soportaban las casi dos toneladas de peso de un enorme cuerpo; la cola contrarrestaba el peso de la parte delantera del cuerpo, donde un cuello grueso con forma de S sujetaba la cabeza, con sus inmensas mandíbulas provistas de dientes largos, curvos y aserrados. 
 ·  Los Carcharodontosauridae fueron parientes de los anteriores y florecieron en Gondwana durante el Cretácico. En esta familia se agrupan los mayores carnívoros que poblaron la Tierra, superando incluso el tamaño que posteriormente alcanzó Tyrannosaurus. Su cabeza era larga y estrecha, los dientes rectos, a modo de cuchillos. A este grupo pertenecen Bahariasaurus, Carcharodontosaurus, Giganotosaurus y posiblementeAcrocanthosaurus, aunque es considerado por algunos como perteneciente al grupo anterior.


Siguiendo el árbol evolutivo, la línea que queda tras la escisión de los carnosaurios en los aveterópodos es la de los Coelurosauria. Inicialmente este término englobaba todos los dinosaurios de pequeño tamaño, desde Coelophysis a Ornithomimus, de la misma forma que Carnosauria incluía a los mayores.
El primer grupo que se separó de los Celurosaurios es la familia de los Compsognathidae, a finales del Jurásico. Compsognathus longipes medía apenas alrededor de un metro de longitud y pesaba unos 3.5 kg; tenía una cabeza larga terminada en un hocico pronunciado. Sus restos se encontraron en un yacimiento alemán.
Ornitholestes hermanii y Coerulus fragilis continuaron la línea de los aveterópodos; el primero era un carnívoro de unos 2 m y 25 kg, con una cola que llegaba al metro de longitud y una cabeza pequeña pero con una mandíbula fuerte. Coerulus era más o menos similar de tamaño, pero se diferenciaba por su cabeza más corta y alta que la del anterior además de un cuello más largo. Ambos fueron encontrados en Norteamérica y vivieron durante el Jurásico Superior. Considerados ya Maniraptoriformes, una forma semejante a ellos, posiblemente Scipionyx, fue la que originó a finales del Jurásico las líneas evolutivas de los Ornitomimosaurios y Tiranosauridos por una parte y la de los Maniraptores por otra.
Los Ornithomimosauria:
Se trata de ligeros terópodos de unos 5 m de longitud, con miembros traseros largos y delgados, cabeza pequeña y cuello largo. Sus mandíbulas eran alargadas y carecían de dientes pero estaban equipadas con un pico córneo. Los miembros anteriores no estaban muy reducidos, su desarrollo era bastante débil; la muñeca y la mano no eran del tipo de agarre de otros terópodos. Vivieron durante el Cretácico. De los géneros más conocidos de este grupo destacamos Ornithomimus y Gallimimus; el segundo podía medir hasta 8 m de longitud y unos 4 de altura. La presencia de un pico quitinoso en Gallimimus puede sugerir una alimentación filtradora herbívora semejante a la de un pato, lo que apoyaría el hecho de los numerosos gastrolitos encontrados en sus estómagos.

Los Tyrannosauroidea:
Constituye junto con la línea anterior un grupo aparte de los Maniraptores y en ella se encuentra el tan famoso Tyrannosaurus rex que vivió durante el Cretácico. Se pueden definir como celurosaurios gigantes más emparentados con los ornitomímidos que con los allosauridos. Fueron de los últimos y más grandes dinosaurios carnívoros; su inmensa cabeza, de alrededor de metro y medio de longitud, tenía una mandíbula provista de dientes de extremos serrados de hasta 15 cm de largo. En comparación con sus miembros traseros, los delanteros eran enanos y tan sólo tenían dos dedos. Se observa una reducción en los terópodos de sus manos delanteras, y en este grupo esta reducción parece haber llegado al máximo y si no se hubieran extinguido al finales del Cretácico quién sabe si las hubieran perdido; las dos especies más evolucionadas del grupo, Albertosaurus megagracilis y T. rex cumplían esta regla y apenas usaban sus manos. Este tamaño de las manos y su tamaño corporal han sido la causa de que se crea que estos animales no alcanzaran velocidades suficientemente altas para realizar ataques y ser verdaderos depredarores, siendo por tanto carroñeros y usarían sus amplias fosas nasales para localizar la comida en descomposición. La polémica está abierta.


Los maniraptores
Consitituyen la otra línea evolutiva que se separó a principios del Cretácico de los Tiranosauridos y Ornitomimosauridos y se define como aquellos dinosaurios más cercanos a las aves que a los ornitomimosaurios. De acuerdo con la clasificación filogenética, las aves descienden de este grupo.
Se caracterizan por tener una serie de elementos modificados en la muñeca, entre ellos la presencia del hueso semilunar, único en este grupo de reptiles, que permitiría un vuelo más seguro. Tienen además las clavículas unidas por una fúrcula, esternón, un pubis que apunta hacia abajo en lugar de tener una posición delantera típica de los saurisquios, una cola corta, brazos largos, manos más largas que los pies y el dedo central de la mano más alargado que el resto. Muchas de estas modificaciones comienzan a preparar la estructura que más tarde permitiría el vuelo.
Como se ve en el árbol del principio de la página, los miembros más aceptados del grupo son los Therizinosaurios y Oviraptores por una parte y los Dromaeosaurios y Troodontidos por otra, además de las aves.

Los Oviraptosauria y Therizinosauroidea:
Los oviraptosaurios eran un grupo de dinosaurios de tamaños variables que vivieron durante finales del Cretácico en Asia y estaban caracterizados por unas mandíbulas sin dientes que formaban un pico córneo; el hueso dental tenía dos apéndices separados por unas grandes aberturas laterales. Son el segundo grupo de terópodos sin dientes y se diferencian de los ornitomimosaurios por la presencia del pico y la configuración de la mandíbula inferior. Estaba dividido en dos familias, de las que la familia Oviraptoridae es quizás la más conocida.

Los therizinosauroideos se diferencian de los anteriores por tener pequeños dientes bulbosos con dentículos alineados paralelos al eje longitudinal del diente, vértebras cervicales muy pneumatizadas y caderas muy anchas entre otros.Therizinosaurus cheloniformis (imagen derecha), de entre 8 y 12 m de longitud y unas 6 toneladas es el miembro más característico de esta familia. Se cree que era un dinosaurio que vivía en ambientes desérticos ya que posee numerosas adaptaciones para estos ambientes; destacar entre ellas las largas garras que se piensa que usaba para excavar en la arena en busca de raíces; además, sus pies casi cuadrados y un bajo punto de gravedad contribuirían a evitar caídas en el suelo tan inestable de las dunas.

Los Troodontidae y Dromaeosauridae:
Aunque estos dos grupos tienen caracteres propios que los eliminan como antecesores de las aves, son sin duda los terópodos avianos más cercanos a las aves.
Los troodóntidos son un pequeño grupo de unas cinco especies poco conocido entre los manirraptores. Eran pequeños terópodos de patas largas que permitían una locomoción rápida, con un gran cerebro en relación al tamaño del cuerpo, cráneos muy neumatizados, numerosos dientes y una garra larga, retráctil y curvada en el segundo dedo del pie, aunque no tan larga como la de los dromeosaurios y que posiblemente no usara para cazar. Una especie representativa es Troodon formosus, un reptil de unos 2 m de longitud que vivió a finales del Cretácico y cuyos restos fueron encontrados en EEUU y México. La característica más sorprendente de este grupo es sin duda su gran cráneo, cerebro y órbitas oculares, dispuestas casi hacia el frente; esto hace pensar en un gran desarrollo de la vista, cuya casi posición binocular les permitiría enfocar y calcular las distancias para cazar los pequeños mamíferos de los que se alimentaría.

Los dromeosauridos 
Eran pequeños y ágiles reptiles carnívoros, de unos 2 o 3 m de longitud. Destacan de ellos la mandíbula musculosa, el esternón osificado, los brazos relativamente largos con manos con capacidad de agarre, un pubis retrovertido y paralelo al isquion, metatarsos cortos y sobre todo, una potente garra en los dedos 2 del pie, curva y retráctil, el doble de larga que la de los otros dedos cuya función era matar las presas. Deinonychus antirrhopus, que ha sido encontrado en Norteamérica en rocas de principios del Cretácico medía unos 3 m y pesaba los 80 kg; su nombre, que significa "garra terrible", hace honor a la potente garra típica del grupo; han aparecido de él más de 8 esqueletos articulados y desarticulados. Velociraptor mongoliensis (a la derecha)aparecío en formaciones de finales del Cretácico en Mongolia y China; tendía el tamaño de un perro, de 1.8 m de longitud y 45 kg de peso y de él se han encontrado más de 6 cráneos y esqueletos completos. Uno de sus fósiles se encontraba asociado con Protoceratops andrewsi, un ceratópsido al cual estaba dando muerte con sus garras, pero tenía sus miembros delanteros en las fauces del Protoceratops. Se diferencia de Deinonychus por su cráneo más bajo y dientes más espaciados. Utahraptor ostrommaysorum, encontrado en los últimos años es un dromeosaurido de gran talla, en torno a los 6 m de longitud y algo más de una tonelada de peso; recientemente se han encontrado fósiles de otros dromeosauridos gigantes.


El origen de las aves y Archaeopteryx
Las primeras protoaves (Archaeornithes) evolucionaron desde pequeños celurosaurios desde finales del Jurásico. Sus pequeñas plumas les permitían un cierto planeo o pequeños vuelos hacia los árboles para evitar ataques de depredadores terrestres. Durante la extinción de finales del Jurásico numerosos dinosaurios de gran talla se extinguieron y quedaron libres numerosos nichos que fueron ocupados por estas protoaves que perdieron en parte su capacidad de vuelo al hacerse predadores terrestres u omnívoros. Otras especies originaron formas más preparadas para el vuelo, y durante los primeros 5 - 10 millones de años del Cretácico sufrieron una gran radiación evolutiva originando gran cantidad de órdenes y familias.
La gran extinción de finales del Mesozoico puso fin a esta especie de jardín del Edén; los dinosaurios, pterosaurios, reptiles marinos y un gran número de aves y mamíferos desaparecieron. Tan sólo sobrevieron entre los arcosaurios una línea de endotermos que llegó al Cenozoico y se conocen como Neornithes o pájaros modernos.

Para hacernos una idea...


Bibliografía:

Paginas de interés:
http://satori.geociencias.unam.mx/27-1/(06)Torres.pdf/

Documentales interesantes acerca del tema:
" Caminando entre bestias" BBC
" Depredadores prehistóricos" BBC
" A la sombra de los dinosaurios" BBC
" El ocaso de los dinosaurios" Discovery channel
" Gigantes del oceano" National Geographic