Mostrando entradas con la etiqueta teropodos. Mostrar todas las entradas

sábado, 2 de mayo de 2020

Adalatherium


Como os lo prometí, aquí tenéis el articulo que escribí para Wikipedia que lamentablemente no resulto. 
Se ha descubierto un esqueleto parcial de un pájaro primitivo, Rahona ostromi, gen. et sp. nov., a finales del Cretáceo Superior de Madagascar. Este espécimen, aunque presenta características de aves como un hallux invertido y papilas cubitales, conserva características que indican una ascendencia de terópodo, incluyendo una pata púbica y articulaciones vertebrales hipófobaso-hipántricas. 

Rahona tiene un segundo dedo robusto e hiperextensible en la pata trasera que termina en una garra rssimilar a una enfermedad, una característica única de terópodos Troodontidae y Dromaeosauridae.

El registro fósil de las formas de mamíferos (mamíferos y sus parientes más cercanos) de la era mesozoica del supercontinente meridional Gondwana es mucho menos extensa que la de su contraparte del norte, Laurasia 1,2. Entre las formas de mamíferos del Mesozoico la Gondwanatheria es uno de los clados menos conocidos, previamente representado por un solo cráneo y mandíbulas y dientes aislados 3,4. Como resultado, la anatomía, la paleobiología y las relaciones filogenéticas de los gondwanatherianos siguen sin estar claras.

El descubrimiento de un esqueleto articulado y muy bien conservado de un gondwanatherianos de la última edad (72,1-66 millones de años) del Cretácico período de Madagascar que asignamos a un nuevo género y especie, Adalatherium hui. Hasta donde sabemos, el espécimen es el esqueleto más completo de un Gondwana.

La mamaliaforma mesozoica que se ha encontrado, incluye la única forma material postcraneal y el ramus ascendente del dentado conocido por cualquier gondwanatheriano. El anális filogenético que incluye el nuevo taxón recupera a las Gondwanatheria como la hermana al grupo de Multituberculata. El esqueleto, que representa uno de los más grandes de los Gondwanan (Mamíferos del Mesozoico), es particularmente notable por exhibir muchas características únicas en combinación con características que son convergentes con las de los teriántropos mamíferos. Esta singularidad es consistente con una historia de linaje para A. hui de aislamiento en Madagascar durante más de 20 millones de años.

Los ambientes insulares promueven trayectorias evolutivas entre los mamíferos y otros vertebrados que contrastan con los de los continentes, y que dan como resultado una demostración anatómica, fisiológica y diferencias conductuales 5,6. Estas diferencias han sido previamente atribuidas a regímenes de selección notablemente distintos que implican factores como recursos limitados, la reducción de la competencia interespecífica y la escasez de depredadores y parásitos 7, 8, 9, 10. Aunque hay numerosos ejemplos de los efectos insulares en los mamíferos de la era cenozoica 11, 12 13, 14, los efectos del aislamiento a largo plazo en las islas es prácticamente desconocido en los mamíferos del Mesozoico y biotas mesozoicas en general.

El excelente estado de los restos del espécimen "abrió una nueva ventana" para que las personas conocieran la apariencia y el estilo de vida de los gondwanatherianos. 

Espero que lo hayáis disfrutado. 


1. Kielan-Jaworowska, Z., Cifelli, R. L. & Luo, Z.-X. Mammals from the Age of Dinosaurs:Origins, Evolution, and Structure (Columbia Univ. Press, 2004).

 2.Meng, J. Mesozoic mammals of China: implications for phylogeny and early evolution of mammals. Natl Sci. Rev. 1, 521–542 (2014).

3 Kielan-Jaworowska, Z., Cifelli, R. L. & Luo, Z.-X. Mammals from the Age of .Dinosaurs: Origins, Evolution, and Structure (Columbia Univ. Press, 2004).

4. O’Connor, P. M. et al. A new mammal from the Turonian–Campanian (Upper Cretaceous) Galula Formation, southwestern Tanzania. Acta Palaeontol. Pol. 64, 65–84 (2019).

5. Sondaar, P. Y. in Major Patterns in Vertebrate Evolution (eds Hecht, M. K. et al.) 671–707 (Plenum, 1977).

6.Van der Geer, A., Lyras, G., de Vos, J. & Dermitzakis, M. Evolution of Island Mammals: Adaptation and Extinction of Placental Mammals on Islands (Wiley-Blackwell, 2010).

7.Sondaar, P. Y. in Major Patterns in Vertebrate Evolution (eds Hecht, M. K. et al.) 671–707 (Plenum, 1977).

8. Azzarolli, A. in Palaeontology, Essential of Historical Geology (ed. Gallitelli, E. M.) 193–213 (S.T.E.M. Mucchi, 1982).

9.Losos, J. B. & Ricklefs, R. E. Adaptation and diversification on islands. Nature 457, 830–836 (2009).

10. McNab, B. K. Geographic and temporal correlations of mammalian size reconsidered: a resource rule. Oecologia 164, 13–23 (2010).

11.Sondaar, P. Y. in Major Patterns in Vertebrate Evolution (eds Hecht, M. K. et al.) 671–707 (Plenum, 1977.

12.Benton, M. J. et al. Dinosaurs and the island rule: the dwarfed dinosaurs from Haţeg Island. Palaeogeogr. Palaeoclimatol. Palaeoecol. 293, 438–454 (2010).

13.Ünay, E., De Bruijn, H. & Saraç, G. The Oligocene rodent record of Anatolia: a review. Deinsea 10, 531–537 (2003).

14.Métais, G. et al. Eocene metatherians from Anatolia illuminate the assembly of an island fauna during deep time. PLoS ONE 13, e0206181 (2018).

Referencias para profundizar.
15.Krause, D. W., Hoffmann, S., Hu, Y., Wible, J. R., Rougier, G. W., Kirk, E. C., ... & Evans, A. R. (2020). Skeleton of a Cretaceous mammal from Madagascar reflects long-term insularity. Nature, 1-7.
16. Forster, C. A., Sampson, S. D., Chiappe, L. M., & Krause, D. W. (1998). The theropod ancestry of birds: new evidence from the Late Cretaceous of Madagascar. Science, 279(5358), 1915-1919.

viernes, 14 de febrero de 2020

Tyrannosaurus rex al descubierto


                                Dos jóvenes Tyrannosaurus rex.

En enero un grupo de paleontólogos liderado por Holly N. Woodward de la Universidad centro por las ciencias de la saud, en el estado de Oklahoma donde imparte clases como profesor  asociado  de anatomía y paleontología,  realizaron un estudio sobre el famoso Tyranosaurus rex. En la prestigiosa  revista  científica Science.

Primero vamos a realizar una breve pasada  sobre la historia  de cómo  se descubrió  el primer  fósil de este terópodo.

 Fue descubierto en 1905  por  Barnum Brown (paleontólogo quién fue el primero que encontró los primeros fósiles del Tyrannosaurus rex). 

Barnum Brown- (1872-1963)


En Hell Creck Formation es una formación geológica (HCF) en Montana (famosa por los fósiles hayados del Cretácico Superior).


Hubo tanto interés tanto científico como popular que hasta la fecha se han realizado diversos estudios que se centraron sobretodo en la parte biomecánica y el estudio de la morfología de su esqueleto, además de generar hipótesis de su biología y su comportamiento. Documental: Dinosaurios en combate 1-Supervivientes al límite; (min 4:10-7:48). 

Pero esos estudios no nos aportaban información más concisa por ejemplo; su edad ontogenética, los años que tenían antes de morir, tasa de crecimiento, la madurez del esqueleto, y madurez sexual entre otros. Por ello en los ultimos años se ha empleado en las investigaciones la histología ósea. A raíz de esto se determinó que Tyrannosaurus rex alcanzaba el tamaño adulto en dos décadas aproximadamente. Para profundizar más emplearon las muestras de dos esquelétos de dos especímenes (BMRP 2002.4.1 bautizado como "Jane" del que se encontró casi todo el cráneo y material postcraneal y BMRP 2006.4.4 cuyo fósil estaba más fragmentado llamado "Petey").
Cráneo del especímen BMRP 2002.4.1 "Jane


Para realizar el estudio se analizó el fémur y la tibia de ambos ejemplares, se pudieron analizar las marcas de crecimiento cíclicas, (Cyclical growth marks, CGMs) técnica utilizada para determinar los periódos donde  el metabolismo y consigo el crecimiento del individuo en épocas favorables y las no favorables donde queda reflejado en los tejidos óseos inmaduros, en un individuo adulto esto no podría apreciarse. La  CGM es una técnica muy empleada actualmente para el estudio de vertebrados extintos.


Esta imagen nos muestra una detallada comparación entre las muestras óseas de "Jane y Petey". (La imagen A pertenece al corte transversal de la corteza media, observado en un plano polarizado, la imagen C es un corte longuitudinal, también pertenece a BMRP 200.4.1 y la B y D a BMRP 2006.4.4 teniendo los mismos cortes que A y C respectivamente).

El resultado de la CGM determinó que "Jane" tenía 13 años cuando murió, mientras que "Petey" tenía 15.  Además se apreció que ambos tenían una CMGs variable entre las muestras del fémur y la tibia. Como no mostraban la EFS (External Fundamental System)  una técnica histológica muy empleada actualmente que nos indica que el tamaño de un individuo adulto ha sido alcanzada, se pudo determinar de que aún no habían alcanzado la edad adulta.


Al principio cuando se descubrieron estos fósiles, se pensó que representaban individuos adultos enanos de un género  Tyrannosaurus, y  Nanotyrannus término que Carr y Wiliamson definieron que era sinónimo Tyrannosaurus en 2004.  Y a raíz de aquello numerosos investigadores asignaron  Nanotyrannus como individuos adultos del taxón basándose solo en las características morfológicas.

Thomas Carr (Paleontólogo)


Se planteó entonces dos hipótesis, que el taxón Nanotyrannus es un taxón válido pero que los dos individuos analizados son jóvenes de esa especie que no alcanzaron la edad adulta. O que junto con otros fósiles del tamaño similar a los fósiles analzados representan a individuos jóvenes Tyrannosaurus rex. 

Pero, si un especímen adulto Tyrannosaurus rex alcanzaba la madrurez a los 20 años, alcanzando una masa musular media de 9502 kg aproximadamente. Mientras que "Jane y Petey" que tenían 13 y 15 años respectivamente y que por consiguiente estaban en estadíos de desarrollo por la edad a ser casi adultos no llegaban ni a la mitad de la longuitud de un adulto... Entonces ¿Verdaderamente son Nanotyrannus?

La respuesta es que probablemente no sea así ya que la biología de un individuo joven puede ser diferente a la de un adulto. Un ejemplo de ello son los Alligator, es decir en los cocodrilos se ha observado que  hay un cambio de la morfología del esqueleto hasta que alcanza la edad adulta.

Como conclusión,  aún tenemos muchísimas cosas que descubrir y cosas que creemos que son de una forma determinada, pero con nuevas técnicas de estudios, y conocimientos nos damos cuenta de que estabamos muy equivocados. Y este es un ejemplo de ello es decir, al principio cuando se descubrieron ejemplares de Tyrannosaurus rex, como tenían algunas características óseas que no lo presentaban los fósiles adultos que se habían encontrado con las técnicas que se tenían antes no sabían si introducir un nuevo taxón, o si eran individuos que no habían alcanzado la edad adulta.

Y como hemos comprobado a lo largo de la entrada, con las nuevas técnicas de estudio de histología ósea se ha podido determinar no solo la edad de los individuos, sino también desmentir la hipótesis de que los restos pudieran pertenecer a una especie diferente a la del Tyrannosaurus rex.


                         Esto es todo por ahora, ¡Nos vemos en la siguiente entrada! ☺

Referencias:


  • Holly N., Katie T., Scott A.,  Lindsay E., John R., & Nathan M. Growing. 2020. Tyrannosaurus rex: Osteohistology refutes the pygmy "Nanotyrannus" and supports ontegenetic niche partitioninig in juvenile Tyrannosaurus. Science Advances, 6-1. DOI: 10.1126/sciadv.aax6250.


Paginas web de interés:
    
          Ecured:

  • EcuRed. Barnum Brown. [Web de internet]. Disponible en: https://www.ecured.cu/Barnum_Brown. [Con acceso el 11/2/20].

          The Hell Creck Formation:

  • The Hell Creck Formation [Web de internet]. Disponible en: https://ucmp.berkeley.edu/science/parks/hellcreek.php. [Con acceso el 11/2/20].

          Pubmed:

  • PubMed CGM. (2012) [Web de internet]. Disponible en: https://www.ncbi.nlm.nih.gov/pubmed/22763443. [Con acceso el 12/2/20].

          PDF Erickson:


  • PDF Erickson et. al. 2004. Disponible en: http://www-personal.umich.edu/~wilsonja/Titanosauria/Body%20size.html. [Con acceso el 12/2/20].

          Cambridge Core:

  • Cambridge Core, Journal of Zoology, Gregory M. Erickson, A. Kristopher Lappin, Kent A. Vliet (2003). Disponible en: http://wwwpersonal.umich.edu/~wilsonja/Titanosauria/Body%20size.html. [Con acceso el 13/2/20].


lunes, 30 de abril de 2018

El hermano mayor del Oviraptor.


Hoy volvemos con una nueva entrega sobre Oviraptor, y es que este dinosaurio no deja de darnos guerra. 
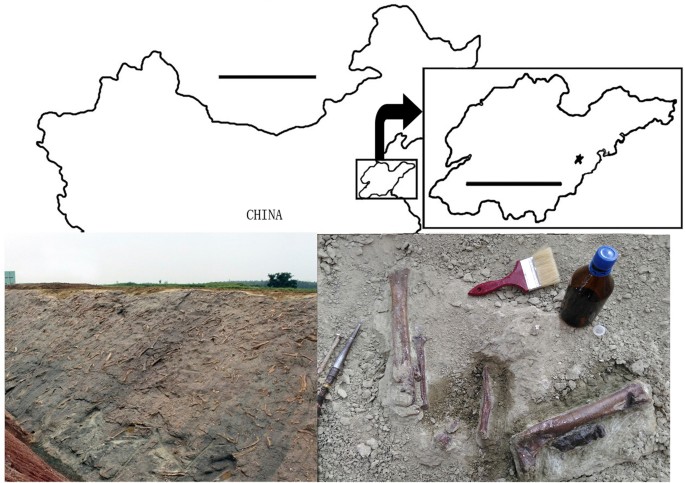
En esta nueva entrada hablaremos de un nuevo dinosaurio cenagnatídico hallado en Shandong, China. Específicamente en el llamado Grupo Wangshi, que es una formación geológica cuyos estratos se remontan al Cretácico Superior, y entre los fósiles que se han recuperado de la formación se encuentran restos de dinosaurios.
                         
                     Imagen relacionada


Una pregunta que os estaréis haciendo es qué tiene que ver este dinosaurio con nuestro ya famoso Oviraptor. Bien, nos remontamos a un poco de historia para introducirlo. 

Los cenagnátidos (Caenagnathidae) son una familia extinta de dinosaurios terópodos oviraptorosaurianos, que vivieron en el Cretácico superior, en lo que hoy es Asia y Norteamérica. Caenagnathidae es una familia de dinosaurios miembros de la Oviraptorosauria, y parientes cercanos de la familia Oviraptoridae. Como otros oviraptorosaurios, los cenagnátidos tenían picos especializados, cuellos largos, y colas cortas, y habrían estado cubiertos de plumas. La familia fue nombrada originalmente por Charles Hazelius Sternberg en 1940 como una familia de aves no voladoras, pero el descubrimiento de esqueletos de oviraptores relacionados, reveló que en realidad eran terópodos no aviares.

Imagen relacionada

En el artículo (escrito por Yilun Yu, Kebai Wang, Shuqing Chen, Corwin Sullivan, Shuo Wang, Peiye Wang y Xing Xu) “A new caenagnathid dinosaur from the Upper Cretaceous Wangshi Group of Shandong, China, with comments on size variation among oviraptorosaurs”; como el título indica, este nuevo dinosaurio cenagnátido ofrece comentarios o información sobre la variación de tamaño entre Oviraptor.

Introducción a la investigación.

Durante la última década se han organizado varias excavaciones importantes en el Grupo Wangshi del Cretácico Superior en tres localidades de la provincia de Shandong, China. Aquí se describió un nuevo espécimen de terópodo de la localidad de Kugou. El espécimen comprende solo una extremidad posterior izquierda parcial, pero sin embargo, muestra una combinación única de características morfológicas que sugieren la presencia de cenagnátidos oviraptorosaurios previamente desconocido en la fauna de dinosaurios Zhucheng. Este nuevo descubrimiento, junto con los restos fósiles previamente reportados, proporciona una fuerte evidencia que apoya una estrecha relación biogeográfica entre la fauna del dinosaurio Zhucheng y los contemporáneos norteamericanos.

 Figure 1

Oviraptor son unos terópodos maniraptorianos caracterizados por un cráneo corto y alto, cuello largo y cola corta. Aquellos que son derivados se pueden dividir en dos grupos: los Caenagnathidae y los Oviraptoridae. Los taxones de cenagnátidos más conocidos, incluyendo Anzu wyliei, Caenagnathus collinsi, Chirostenotes pergracilis, Apatoraptor pennatus y Microvenator celer, fueron recolectados en Norteamérica y otros en Asia, entre los cuales destaca el enigmático Gigantoraptor erlianensis.

Los lechos óseos del Grupo Wangshi del Cretácico Superior en Zhucheng, Shandong, China, reportaron un nuevo Oviraptor, Anomalipes zhaoi. La posición sistemática de este espécimen fue evaluada por tres análisis numéricos cladísticos basados en conjuntos de datos filogenéticos de terópodos recientemente publicados, con la inclusión de varios caracteres nuevos. Anomalipes zhaoi se diferencia de otros cenagátidos conocidos por tener una combinación única de características: una cabeza femoral estrecha con una orientación posterior significativa; una cresta lateral presente en la superficie lateral femoral; el metatarso III con una superficie articular proximal triangular; y el pedal II ungulado con un surco lateral más profundo. El holotipo de Anomalipes zhaoi es más pequeño que el típico de Caenagnathidae, pero más grande que el del otro gran subclado ovirraptorosauriano, Oviraptoridae. 

Resultados.

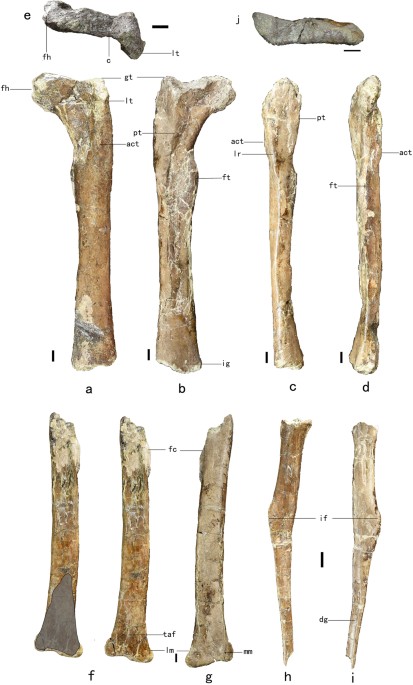
Un cuello femoral distinto, definido dorsalmente por una concavidad de orientación anteroposterior, separa el trocánter mayor de la cabeza femoral; es una característica que se observa en Oviraptor. El trocánter mayor también se expande al punto de ser considerablemente más ancho que la cabeza del fémur. En terópodos basales, el trocánter mayor es anteroposteriormente más estrecho que la cabeza femoral.
En el contexto de Maniraptora, Anomalipes zhaoi muestra varios rasgos que sugieren afinidades pennaraptorianas. Por ejemplo, el trocánter femoral menor tiene forma de dedo y se adhiere al trocánter mayor. Esto contrasta fuertemente con la condición de la mayoría de los terópodos no peninsulares. 
 
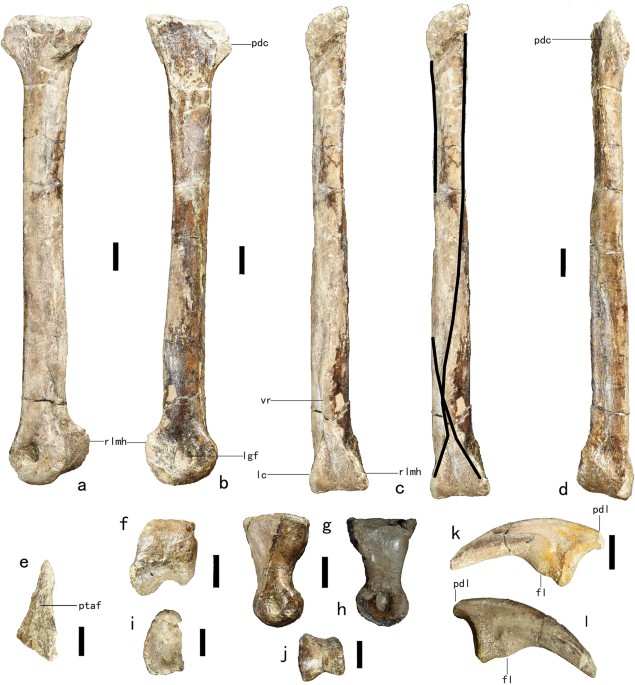
 Figure 2         Figure 3


Entre los principales grupos pennaraptorianos, Anomalipes zhaoi muestra las semejanzas morfológicas más claras con la de Ovirraptorosaurios. Por ejemplo, un trocánter accesorio alargado está presente, como en muchos Oviraptor basales y caenagnátidos.

El material limitado, y en particular la falta de material craneal, en el holotipo y en el único espécimen conocido de Anomalipes zhaoi dificulta la identificación de características cenagnátidas llamativas en esta especie. 
Sin embargo, algunos estudios recientes proporcionan nueva información significativa sobre la morfología de las extremidades posteriores de los cenagnátidos, que puede utilizarse para confirmar las afinidades de estos con Anomalipes zhaoi. En general, los cenagnátidos poseen un miembro posterior alargado con una tibia particularmente larga, y un pie con un metatarsiano proximal fuertemente pellizcado.

En Anomalipes zhaoi, los segmentos inferiores del miembro posterior parecen relativamente alargados, lo que se asemeja más a la condición de los cenagnátidos que a la de Oviraptor. Este carece de un pie arctometatarsiano típico, pero su metatarsiano III tiene un extremo proximal fuertemente comprimido transversalmente, lo que sugiere que el pie era incipientemente arctometatarsiano. El pie compacto en Anomalipes zhaoi, que es típico de los caenagnátidos pero no de Oviraptor, se indica aún más por la delgadez relativa del metatarso III, que muestra una relación entre la longitud y el ancho transversal del eje central. 
El miembro posterior de Anomalipes zhaoi carece de algunas características de fusión que normalmente se observan en los caenagnátidos. Lo más sorprendente es que Anomalipes zhaoi parece poseer crestas cruzadas en la superficie posterior del metatarso III, una característica que recientemente se ha identificado como exclusiva de algunos cenagnátidos. 
En general, la morfología de las extremidades posteriores de Anomalipes zhaoi es consistente y sugestiva de una posición filogenética entre los caenagnátidos basales.


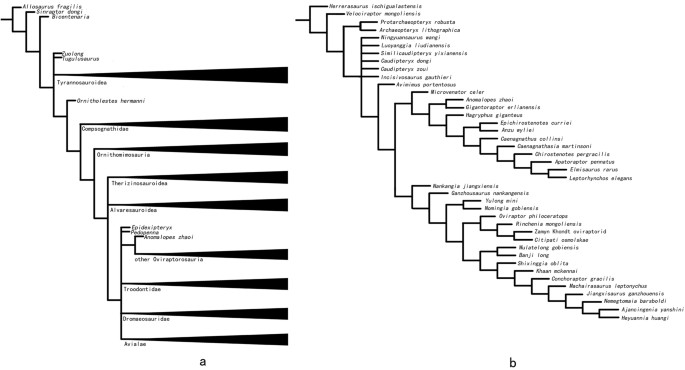
 Figure 4

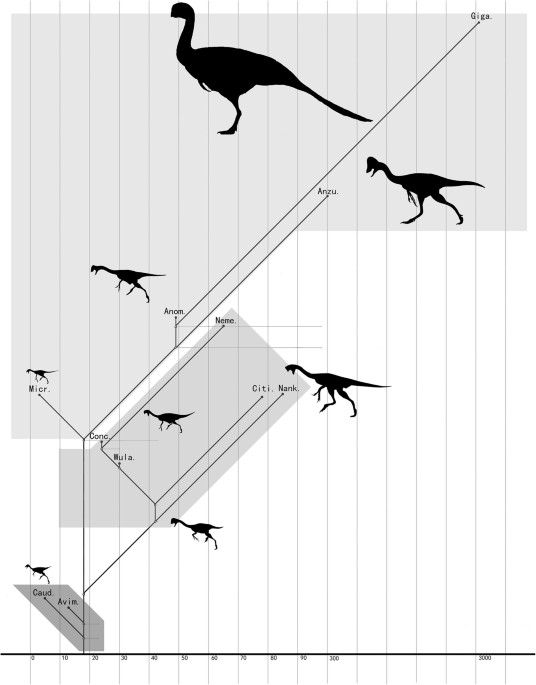
El hecho de que el análisis filogenético de la matriz Lamanna y de las matrices Funston y Currie haya recuperado Anomalipes zhaoi y Gigantoraptor erlianensis como clado endémico de Oviraptor asiáticos merece una mención especial. 
A pesar de sus tamaños muy diferentes, Anomalipes zhaoi y Gigantoraptor erlianensis comparten muchas similitudes, incluyendo varias que son únicas entre Oviraptor. Estas características únicas compartidas incluyen: cabeza femoral con fuerte desviación posterior; cresta más gruesa y anteriormente más alta que posterior; trocánter posterior prominente; y metatarso III cerca del extremo proximal, con un surco longitudinal en la superficie articular distal.


Conclusiones.

La evolución del tamaño ha sido explorada previamente en los dinosaurios en su conjunto, y en los subgrupos de dinosaurios. Algunos estudios han revelado que Oviraptor y muchos otros clados celurosaurios, han sido ancestralmente relativamente pequeños en tamaño corporal. Un estudio exploró más a fondo la evolución del tamaño en varios subgrupos de terópodos herbívoros, incluidos los del género Oviraptor, y no encontró evidencia de evolución del tamaño direccional en estos grupos.
Aunque no se intentó evaluar cuantitativamente las tendencias en la evolución del tamaño corporal de Oviraptor, la considerable disparidad de tamaño existente entre estos llevó a compilar un conjunto de datos que contiene estimaciones de la masa corporal para tantas especies de Oviraptor como fuera posible, utilizando una relación basada en la longitud femoral. 

Aunque esta ecuación probablemente produce estimaciones que son menos precisas que las generadas por ecuaciones empíricas recientemente desarrolladas que se basan en otros parámetros, no obstante se consideró que la ecuación escogida era la apropiada para el estudio, dado que las mediciones de longitud están fácilmente disponibles y que el objetivo central es revelar las diferencias de tamaño entre los taxones de Oviraptor en lugar de producir necesariamente estimaciones de tamaño absoluto de máxima precisión. 
Las estimaciones de masa corporal de este estudio para Oviraptor basales oscilan entre 5 y 18 kg, mientras que las de los cenagnátidos oscilan entre 3 y 3234 kg (la mayoría de las especies superan los 49 kg) y las de Oviraptor entre 11 y 85 kg (la mayoría de las especies superan los 30 kg). 


 Figure 5
 
Aunque estos valores están sujetos a incertidumbre, demuestran claramente que en general  Oviraptor de tipo basal son relativamente pequeños y los derivados son relativamente grandes, con cenagnátidos típicos más grandes que los oviraptores típicos. Además, los datos indican una disparidad de tamaño mucho menor dentro de los Oviraptor que dentro de la familia Caenagnathidae. Estas diferencias sugieren un rango más amplio de estrategias de crecimiento y nichos ecológicos en los caenagnátidos en comparación con los oviraptores, lo cual podría ser considerado en estudios futuros.

Referencias.


  • Scientific Reports, volume 8, Article number: 5030 (2018). "A new caenagnathid dinosaur from the Upper Cretaceous Wangshi Group of Shandong, China, with comments on size variation among oviraptorosaurs" http://www.nature.com/articles/s41598-018-23252-2

lunes, 26 de febrero de 2018

Oviraptor visita al dentista.

Los Ovirraptorosaurios, que significa "reptiles saqueadores de huesos", eran Terópodos desdentados y vivieron en el Cretácico tardío en Mongolia. Incluía algunas familias como la de los Cenagnátidos,de la que en esta entrada vamos a hablar especialmente debido a un reciente estudio.
En el artículo "Reevaluation of the Dentary Structures of Caenagnathid Oviraptorosaur" (2018)  escrito por Shuo Wang, Qiyue Zhang y Rui Yang, se recoge una nueva perspectiva sobre la estructura dentaria de los Cenagnátidos.

 Resultado de imagen de caenagnathidae
Caenagnathidae es un clado monofilético de terópodos oviraptorosaurios caracterizado por estar desdentados, tener una fosa profunda en la superficie lateral de la dentadura, una extensión ventral del ilion y una fosa medial en el pedúnculo isquiático del pubis. Actualmente, se describen principalmente a partir de regiones fragmentarias sinfíticas de dentaduras fusionadas y elementos postcraneales disociados. Además son bien diferenciados por la depresión en forma de reloj de arena en la superficie ventral y los surcos anteriores y laterales presentes en la superficie de su dentadura. 

Estas distintas ranuras oclusales laterales separadas entre sí por las crestas han sido motivo de estudios desde hace tiempo. Sternberg sugirió que las estructuras podrían ser vestigios alveolares, mientras que Currie las interpretó más tarde como un soporte estructural. Aunque varios autores han mencionado estas estructuras, aún no existe un consenso sobre su naturaleza y función. 
Imagen relacionada

Un estudio reciente sugiere que los surcos y crestas laterales son alvéolos vestigiales y tabiques interdentales, respectivamente. Apesar de la nueva teoría, la importancia de estos tejidos periodontales siguen sin quedar claros. 

El objetivo del estudio. 


Esta nueva reevaluación trató de volver a describir un pequeño ejemplar de Cenagnátido. El Instituto de Paleontología y Paleoantropología de Vertebrados, Academia China de Ciencias investigó su morfología interna mediante técnicas de CT scaner y reconstrucción 3D. 
La evidencia disponible sugiere que los alvéolos vestigiales se han modificado parcialmente en estructuras que alojan los vasos sanguíneos que nutren tras la pérdida de los dientes.

Estas son las imágenes tomadas con CT a partir de las cuales desrrollaron estas nuevas ideas y posibles conclusiones:

Figure 1

La superficie lateral de la dentadura es generalmente lisa excepto dos series lineales que suponen el estrechamiento de la médula espinal. CT imágenes muestran que toda esta foramina sobre la superficie externa de la dentadura proviene del espacio hueco del interior del hueso, que habrían llevado tubos capilares y nervios.


Figure 2
A partir de estas imágenes de CT de Caenagnathiasia sp. IVPP V20377, se reconocen varias características previamente desconocidas, como los alvéolos vestigiales crateriformes, la morfología del espacio hueco interior dentario y los tubos ciegos emparejados debajo de la plataforma dentaria. 

Las líneas de evidencia actuales sugieren que las diferentes morfologías de los huesos de la mandíbula probablemente sean producidas por varios patrones de reducción dental, lo que indica un cambio dietético ontogenético, una vez presentado en Cenagnátidos y Sapeornis; que puede haber sido diferente de la condición observada en Limusaurus (dinosaurio terópodo ceratosauriano, que vivió a principios del período Jurásico).
Las imágenes tridimensionales de los espacios interiores dentarios sugieren que mientras progresa la reducción de los dientes, los alvéolos vacíos se modifican parcialmente en estructuras que alojan vasos sanguíneos, lo que probablemente representa una compensación funcional por el suministro insuficiente de sangre en los huesos de la mandíbula dentada.


Resultado de imagen de Caenagnathid Oviraptorosaurs

No podemos negar el divertido aspecto de este dinosaurio, que ya ponía de moda la fiebre punki allá por el Cretácico. En próximas entradas indagaremos un poco más a fondo sobre él y su familia.

Referencias
  • Shuo Wang, Qiyue Zhang & Rui Yang. Reevaluation of the Dentary Structures of Caenagnathid Oviraptorosaurs (Dinosauria, Theropoda). Scientific Reports, volume 8, Article number: 391. (2018).  

  • Longrich, N. R., Barnes, K., Clark, S. & Millar, L. Caenagnathidae from the Upper Campanian Aguja Formation of West Texas, and a revision of the Caenagnathinae. Bulletin of the Peabody Museum of Natural History, 23–49 (2013).

  • Yao, X. et al. Caenagnathasia sp. (Theropoda: Oviraptorosauria) from the Iren Dabasu Formation (Upper Cretaceous: Campanian) of Erenhot, Nei Mongol, China. Vertebrata PalAsiatica 53, 291–298 (2015). 

  • Currie, P. J., Funston, G. F. & Osmólska, H. New specimens of the crested theropod dinosaur Elmisaurus rarus from Mongolia. Acta Palaeontol Pol 61, 143–157 (2016).

  • Wang, S. et al. Extreme ontogenetic changes in a ceratosaurian theropod. Current Biology 27, 144–147 (2017).

  • Osmólska, H., Currie, P. J. & Barsbold, R. In The Dinosauria (eds Weishampel, D. B., Dodson, P. & Osmólska, H.) (University of California Press, 2004).

  • Benson, R. B. J. A redescription of ‘Megalosaurus’ hesperis (Dinosauria, Theropoda) from the Inferior Oolite (Bajocian, Middle Jurassic) of Dorset, United Kingdom. Zootaxa, 57–67 (2008).

  • Ji, Q., Lü, J., Wei, X. & Wang, X. A new oviraptorosaur from the Yixian Formation of Jianchang, Western Liaoning Province, China. Geological Bulletin of China 31, 2102–2107 (2012).

  • J. Mauricio M. Herrera C. La Clasificación de los Dinosaurios. Universidad Nacional Autónoma de México.

domingo, 6 de marzo de 2016

El dinosaurio jurásico más antiguo

Artículo:

The Oldest Jurassic Dinosaur: A Basal Neotheropod 

from the Hettangian of Great Britain

  • David M. Martill, 
  • Steven U. Vidovic, 
  • Cindy Howells, 
  • John R. Nudds

Los dinosaurios terópodos son extremadamente raros en el Jurásico inferior y la mayoría de los informes son solamente de restos fragmentarios. Esta rareza se traduce en una diferencia considerable en nuestro conocimiento de estos animales en un momento determinado, todo parece indicar que los terópodos se diversificaron con rapidez. Los primeros terópodos reportados en Europa fueron en Escocia, Inglaterra, Francia y Bélgica  y corresponden al Hettangiense, pero todos  estos hallazgos son de material fragmentario.
Imagen 1 Esquema del mapa que muestra Lavernock Point en el lado de Gales del estuario Severn.

Materiales, métodos y análisis utilizados

Los bloques más grandes se secaron durante dos semanas bajo periódico húmedo para evitar la contracción rápida y agrietamiento de un fino barniz de lutita en la superficie de piedra caliza. Los diversos laboratorios limpiaron y prepararon mecánicamente para exponer los huesos usando un polvo abrasivo. Pequeñas fracturas de huesos fueron reparados usando pegamento. Losas con los huesos representados como moldes externos fueron fundidas en un compuesto de silicio, replicado en fibra de vidrio y resina, y pintados para restaurar huesos que se sabe que han estado presentes y se presumen perdidos en el mar. Existe la posibilidad de que parte de la muestra permanece en el acantilado, pero la repetición de un examen cuidadoso de la pared del acantilado no consiguió hallar nuevos huesos.
Para establecer la posición filogenética de la muestra se analizó en un análisis cladístico compuesta de 366 caracteres y 46 taxones, de los cuales 18 se encuentran fuera de Dinosauria.
Gracias a él análisis fue posible atomizar 25 de los caracteres compuestos en la lista de caracteres de Ezcurra y Brusatte lo que resulta en más de 28 caracteres. Un carácter compuesto adicional se redujo de tres estados de caracteres a dos. Para demostrar el efecto de atomización caracteres compuestos se llevó a cabo un experimento utilizando procedimientos jacknife (navaja de bolsillo). El análisis de la navaja de bolsillo se realizó de forma manual utilizando Microsoft Excel para generar caracteres aleatorios de omisión en cada repetición del procedimiento.
El índice de retención de conjunto (PRI) que es independiente del número de carácter no cambió entre el análisis original y el nuevo análisis, debido a que la codificación era exactamente la misma. Del mismo modo, una gráfica de la diferencia entre longitud vs. el número de caracteres eliminados demostró la misma velocidad de decaimiento de longitud para ambas matrices. Sin embargo, la, nueva matriz más grande fue de sólo 15 pasos, a pesar de otros 25 caracteres adicionales. Además, la diferencia en la longitud relativa tomada de las líneas de regresión de la trama jacknife  fue de aproximadamente 60 pasos menos para la matriz más grande. Por lo tanto, la jacknife demuestra los beneficios de la atomización de caracteres compuestos.
El análisis final se realizó en TNT mediante el uso de "nueva tecnología". Se utilizaron pesos predeterminados para ajustar los pesos de los caracteres durante el análisis, con el fin de combatir los errores de codificación o conflictos de carácter que no se resolvió mediante la atomización de caracteres compuestos. El MPT resultante se almacena en la memoria RAM del ordenador se analizó adicionalmente con ATB intercambiando algoritmo de búsqueda en "tradicional" de TNT para resolver los MPT máximos posible.

¿Cómo datamos a este nuevo espécimen?

A pesar de que no se encuentra in situ, el nuevo dinosaurio está contenido en uno de los dos horizontes de piedra caliza dentro de la formación de Blue Lias inferior, y específicamente dentro de la parte baja del acantilado. Por desgracia, este horizonte es una parte de la secuencia la cual no se ha datado cronológicamente, son sitios por debajo de la primera aparición de la amonita Psiloceras planorbis, históricamente utilizado por estratígrafos británicos para definir la base del Jurásico, y por encima de la última aparición de un marcador de conodontos del Triásico, Chirodella verecunda Swift, 1995.
En las secciones europeas y norteamericanas en todo el Triásico / Jurásico la primera aparición de la ammonites apsiloceratacean está marcada por la aparición de Psiloceruserugatum, seguido de P.imitansand P.antecedans, todos los cuales se utilizan para definir subzonas debajo de la primera aparición de P.planorbis. En Austria P.spelaetirolicum, P.cf.pacificum y P.exgr. P. tilmanni aparecieron en estratos por debajo de P.planorbis mientras que en Bélgica y noreste de Rusia, Primapsiloceras primulum se encontraron en estratos por debajo de P. planorbis. Estas subzonas del Jurásico temprano no han sido detectadas en la secuencia de estratos. Sin embargo, se encontraron ammonites precediendo Psiloceras planorbis en la parte basal de la formación Blue Lias  a sólo 22 km al  sur de Lavernock Point .Estos hallazgos incluyen ejemplos de P. cf.erugatumand Neophyllites sp., lo que demuestra que los ammonites  del Jurásico llegaban a las Islas Británicas.
La pregunta sigue siendo, si el nuevo dinosaurio atribuirse al Triásico tardío, o al Jurásico temprano, el punto de vista geoquímico puede ayudar a resolver la edad estratigráfica precisa del estrato en el que se encontró el dinosaurio. Varios estudios isotópicos han situado el hallazgo cerca del límite Triásico-Jurásico.
Imagen 2 Registro estratigráfico de Lavernock Point.

Un estudio realizado en Lavernock Point, encontró una anomalía negativa δ13C org en la parte superior de Langport del grupo Triásico, mientras que un análisis exhaustivo e integrado de una sección en el lado sur del estuario de Severn en St Audries 'Bay, también detectó una anomalía negativa de isótopos δ13C org que comienza justo por encima de las últimas apariciones de conodontos, pero antes de la primera aparición de la amonita. Esta excursión negativa también se ha detectado en otro lado, y en una sección en el estado de Nueva York, EE.UU., Ward et al. Este análisis sirvió para situar la base del Jurásico.

¿Triásico tardío o Jurásico temprano?

Situamos la base del Jurásico en los Alpes del Norte austriacos. En esta localidad se define la base del Jurásico en la primera aparición de los ammonites Psiloceras spelae tirolicum. Estas especies de ammonites  afloran aproximadamente 5 metros por encima de la localización isotópica propuestas como la base del Jurásico.
Teniendo en cuenta que el nuevo dinosaurio se produce en una posición estratigráfica por encima de la anomalía isotópica δ13 Corg; que se produce por encima de un límite litológico claro que representa una facie distinta que cambia de poca profundidad a la profundización de las condiciones marinas; que se asocia con una fauna Jurásico, y analiza que el polen también pertenece al Jurásico, el nuevo dinosaurio debe situarse a principios del Hettangiense. Por lo que lo más probable es que pertenece a la subzona  P.erugatum del P.tilmanni , datada en unos 201,3 ± 0.2million años.

Una vez resuelto el problema de su datación nos encontramos con un nuevo problema, su situación filogenética.

Problema filogenético:

Imagen 3 Análisis cladístico de Dracoraptor hanigani.
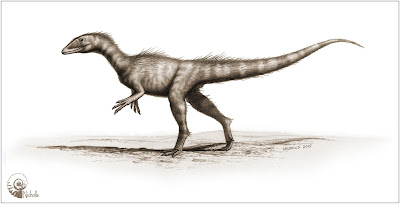
Dracoraptor hanigani posee 18 apomorfías, algunos de los cuales convergen con los artrópodos más derivados, también conserva las condiciones plesiomórficas, tales como tres dientes en el premaxilar.
Dracoraptor hanigani es claramente un dinosaurio saurischian a causa de su construcción pélvica, mientras que la posesión de dientes de sierra entre otros caracteres demuestra sus semejanzas a los terópodos. El análisis cladístico sitúa a Dracoraptor dentro de Neotheropoda, pero es basal en el clado. Dracoraptor se puede distinguir de Neotheropoda del Triásico tardío y Jurásico Temprano en una variedad de criterios, no necesariamente apomórficos. Sin embargo, Dracoraptor posee una combinación de caracteres basales que hacen que sea difícil colocarlo filogenéticamente. La fosa antorbital superficial del maxilar y la presencia de una muesca de obturador en el isquion indica afinidades Neotheropoda pero muchos de las otros sinapomorfias Neotheropoda no pueden ser identificados en Dracoraptor.
Dracoraptor conserva muchas características basales dentro de los artrópodos. Es probable que las operaciones de preparación de la muestra permitan la identificación de caracteres adicionales que pueden resolver mejor sus afinidades filogenéticas.

La presencia de Dracoraptor en estratos marinos puede ser de poca importancia en relación con la ecología del animal, pero lo hemos restaurado como un animal que habitaba en la línea de costa.
Imagen 4 Dracoraptor hanigani restaurado como una mezcla entre predador y carroñero.


Referencias
1.Benton MJ, Martill DM, Taylor MA. The first Lower Jurassic dinosaur from Scotland: limb bone of a ceratosaur theropod from Skye. Scottish Journal of Geology, 1995; 31:177–82. doi: 10.1144/sjg31020177
o    View Article
·         PubMed/NCBI
·         Google Scholar
2.Owen R. II. Scelidosaurus harrisonii Owen of the Lower Lias. A monograph of the fossil Reptilia of the Lias formations. Palaeontographical Society Monographs, London. 1863; 14:1–26.
·         View Article
·         PubMed/NCBI
·         Google Scholar
3.Woodward AS. Note on a megalosaurian tibia from the Lower Lias of Wilmcote, Warwickshire. Annals and Magazine of Natural History, Series 8, 1908; 1:257–65. doi: 10.1080/00222930808692397
·         View Article
·         PubMed/NCBI
·         Google Scholar
4.Andrews CW. On some remains of a theropodous dinosaur from the Lower Lias of Barrow-on-Soar. Annals and Magazine of Natural History, Series 9 1921; 8:570–76. doi: 10.1080/00222932108632620
·         View Article
·         PubMed/NCBI
·         Google Scholar
5.Cuny G, Galton PM. Revision of the Airel theropod dinosaur from the Triassic-Jurassic boundary (Normandy, France). Neues Jahrbuch für Geologie und Paläontologie, Abhandlungen. 1993; 187:261–88.
·         View Article
·         PubMed/NCBI
·         Google Scholar
6.Delsate D, Ezcurra MD. The first Early Jurassic (late Hettangian) theropod dinosaur remains from the Grand Duchy of Luxembourg. Geologica Belgica, 2014; 17:175–81.
·         View Article
·         PubMed/NCBI
·         Google Scholar
7.Allain R, Tykoski R, Aquesbi N, Jalil N-E, Monbaron M, Russell D, et al. An abelisauroid (Dinosauria: Theropoda) from the Early Jurassic of the High Atlas Mountains, Morocco, and the radiation of ceratosaurs. Journal of Vertebrate Paleontology, 2007; 27:610–24. doi: 10.1671/0272-4634(2007)27[610:aadtft]2.0.co;2
·         View Article
·         PubMed/NCBI
·         Google Scholar
8.Hammer WR, Hickerson WJ. A crested theropod dinosaur from Antarctica. Science. 1994; 264:828–30. pmid:17794724 doi: 10.1126/science.264.5160.828
·         View Article
·         PubMed/NCBI
·         Google Scholar
9.Raath M.A. Morphological variation in small theropods and its meaning in systematics: evidence from Syntarsus rhodesiensis; pp. In: Carpenter K, Currie PJ. (eds.), Dinosaur Systematics: Approaches and Perspectives. New York. Cambridge University Press, 1990; 91–105.
10.Rowe T. A new species of the theropod dinosaur Syntarsus from the Early Jurassic Kayenta Formation of Arizona. Journal of Vertebrate Paleontology. 1989; 9:125–36. doi: 10.1080/02724634.1989.10011748
·         View Article
·         PubMed/NCBI
·         Google Scholar
11.Talbot M. Podokesaurus holyokensis, a new dinosaur of the Connecticut Valley: American Journal of Science. 1911; 31:469–79. doi: 10.2475/ajs.s4-31.186.469
·         View Article
·         PubMed/NCBI
·         Google Scholar
12.Welles SP. New Jurassic dinosaur from the Kayenta Formation of Arizona. Bulletin of the Geological Society of America. 1954; 65:591–98. doi: 10.1130/0016-7606(1954)65[591:njdftk]2.0.co;2
·         View Article
·         PubMed/NCBI
·         Google Scholar
13.Carrano MT, Hutchinson JH, Sampson SD. New information on Segisaurus halli, a small theropod dinosaur from the Early Jurassic of Arizona. Journal of Vertebrate Paleontology. 2005; 25:835–49. doi: 10.1671/0272-4634(2005)025[0835:niosha]2.0.co;2
·         View Article
·         PubMed/NCBI
·         Google Scholar
14.Xu X, Zhao X, Clark JM. A new therizinosaur from the Lower Jurassic Lower Lufeng Formation of Yunnan, China. Journal of Vertebrate Paleontology. 2001; 21: 477–83. doi: 10.1671/0272-4634(2001)021[0477:antftl]2.0.co;2
·         View Article
·         PubMed/NCBI
·         Google Scholar
15.Barrett P. The affinities of the enigmatic dinosaur Eshanosaurus deguchiianus from the Early Jurassic of Yunnan Province, People’s Republic of China. Palaeontology. 2009; 52:681–88. doi: 10.1111/j.1475-4983.2009.00887.x
·         View Article
·         PubMed/NCBI
·         Google Scholar
16.Huene F. Die fossile Reptil-Ordnung Saurischia, ihre Entwicklung und Geschichte, Monographien zur Geologie und Palaeontologie. 1932; 1:1–361.
·         View Article
·         PubMed/NCBI
·         Google Scholar
17.Tucker ME, and Burchette TP. Triassic dinosaur footprints from south Wales: Their context and preservation. Palaeogeography, Palaeoclimatology, Palaeoecology. 1977; 22:195–208. doi: 10.1016/0031-0182(77)90028-1
·         View Article
·         PubMed/NCBI
·         Google Scholar
18.Kermack D. New prosauropod material from South Wales. Zoological Journal of the Linnean Society, 1984; 82:101–17. doi: 10.1111/j.1096-3642.1984.tb00538.x
·         View Article
·         PubMed/NCBI
·         Google Scholar
19.Yates AM. A new species of the primitive dinosaur Thecodontosaurus (Saurischia: Sauropodomorpha) and its implications for the systematics of early dinosaurs. Journal of Systematic Palaeontology. 2003; 1:1–42. doi: 10.1017/s1477201903001007
·         View Article
·         PubMed/NCBI
·         Google Scholar
20.Storrs G. Tetrapods. In: Swift A, Martill DM. (eds) Fossils of the Rhaetian Penarth Group. Palaeontological Association London, Field Guides to Fossils Series. 1999; 9: 223–38.
21.Galton PM. Bones of large dinosaurs (Prosauropoda and Stegosauria) from the Rhaetic Bone Bed (Upper Triassic) of Aust Cliff, southwest England. Revue de Paléobiologie, Genève. 2005; 24:51–74.
·         View Article
·         PubMed/NCBI
·         Google Scholar
22.Newton ET. On a megalosaurid jaw from Rhaetic beds near Bridgend (Glamorganshire). Quarterly Journal of the Geological Society of London. 1899; 55:89–96. doi: 10.1144/gsl.jgs.1899.055.01-04.08
·         View Article
·         PubMed/NCBI
·         Google Scholar
23.Galton PM, Yates AM, Kermack D. Pantydraco n. gen. for Thecodontosaurus caducusYates, 2003, a basal sauropodomorph dinosaur from the Upper Triassic or Lower Jurassic of South Wales, UK. Neues Jahrbuch für Geologie und Paläontologie—Abhandlungen. 2007; 243:119–25. doi: 10.1127/0077-7749/2007/0243-0119
·         View Article
·         PubMed/NCBI
·         Google Scholar