Mostrando entradas con la etiqueta ADN. Mostrar todas las entradas

lunes, 19 de abril de 2021

¿Y si somos nosotros?

En las anteriores entradas al blog anticipamos que distintos estudios genéticos habían revolucionado la investigación de la evolución humana y que en el futuro nos iban a aportar más luz sobre los detalles de cómo ha ido desarrollándose dicho proceso de forma general, la frecuencia de la hibridación entre neandertales y sapiens en particular (que siendo ya un hecho hasta ahora ha sido poco estudiada), su clasificación como especies diferentes... y efectivamente así ha sido. 

En este mes de abril se han publicado nuevos artículos al respecto, que refuerzan la idea de que los cruces entre neandertales y humanos modernos fueron mucho más frecuentes y recientes de lo que inicialmente se pensaba y esto nos da lugar a nuevas e interesantes reflexiones al respecto. 

Concretamente la revista Nature Evolution & Ecology ha publicado un artículo, Initial Upper Palaeolithic humans in Europe had recent Neanderthal ancestry (Hajdinjak et al., 2021) donde se detallan los análisis de ADN de tres Homo sapiens europeos de entre 45.930 y 42.580 años en la Cueva Bacho Kiro en Bulgaria y donde una de las principales conclusiones es que todos ellos tenían antepasados neandertales, más o menos directos y que por tanto confirma una hibridación entre ambos grupos de homínidos en el sudoeste de Asia hace entre 50.000 y 60.000 años.


Svante Pääbo, uno de los colaboradores de este articulo, reconocido divulgador y experto en neandertales, que obtuvo el primer genoma completo de un neandertal y que ha participado en varias de estas reconstrucciones como The complete genome sequence of a Neandertal from the Altai Mountains, defiende que esta hibridación debió ser muy común y de hecho en el artículo califica incluso como sorprendente, el hecho de la cercanía de los parientes neandertales en las historias familiares de los individuos europeos que se superpusieron en el tiempo con estos neandertales tardíos, que puede sugerir una absorción de las poblaciones de neandertales más que una desaparición.


Otro aspecto destacable de este artículo, es que el estudio de los genomas de la cueva de Bacho Kiro muestran que existieron varias poblaciones humanas modernas distintas durante el Paleolítico superior temprano en Eurasia y no todas ellas dejaron rastro de su ascendencia entre las poblaciones actuales. Este es otro interesante debate de por qué algunas poblaciones de humanos modernos tuvieron éxito y otras no.

Casi al mismo tiempo y también en la revista Nature Ecology & Evolution se ha publicado el articulo A genome sequence from a modern human skull over 45,000 years old from Zlatý kůň in Czechia donde se detalla como dos equipos de paleoantropólogos han conseguido extraer suficiente ADN de estos fósiles, los más antiguos que se conocen de nuestra especie, como para reconstruir todo su genoma y donde se muestran mas pruebas de parientes Homo neanderthalensis cercanos, en este caso en ancestros de menos de 180 años, y donde se ha comprobado que los individuos analizados descendían de híbridos fruto del sexo entre neandertales y sapiens teniendo aproximadamente un 3% de ADN neandertal.

Inicialmente se pensaba que los neandertales desaparecieron como especie hace unos 40.000 años, pero esta hibridación es un hecho que se repite y por tanto nos indica la existencia de un patrón que puede abrirnos a otras explicaciones. Una de las posibilidades es que las diferentes olas migratorias humanas que llegaron desde África a Europa y Asia mantuvieron relaciones con los neandertales y denisovanos que habitaban esas zonas y pudieron acoger a los neandertales en sus grupos de convivencia, lo que parece que no ocurre al contrario, como sugería Svante Pääbo y también afirma el genetista Carles Lalueza-Fox en un articulo de El País. Por tanto, nos llevaría a concluir que los neandertales no se extinguieron si no que se produjo una integración entre las dos especies, o dicho de otra forma los neandertales siguen aquí porque somos nosotros como también defiende Raquel Pérez Gómez, bióloga experta en genética y doctora en Ciencias Veterinarias por la Complutense. 

Pero el debate está muy vivo y no hay unanimidad en esta visión, en otro articulo de El País, investigadores como Antonio Rosas, paleoantropólogo del Consejo Superior de Investigaciones Científicas (CSIC) y uno de los grandes expertos europeos en neandertales piensan que los humanos modernos analizados son Homo sapiens desde el punto de vista fenotípico: no son neandertales, ni tampoco son una mezcla, aunque abre la posibilidad de que ocurriese esta mezcla en algún lugar concreto y en otros casos se extinguieron.

En cualquier caso es complicado hacer extrapolaciones a partir del estudio de unos pocos ejemplares, por lo que los nuevos estudios que aparezcan a partir de ahora,  no van a dejar de darnos nuevas informaciones que seguirán confirmando o desmintiendo las actuales hipótesis. Por ejemplo, esta semana conocíamos una noticia que puede dar una nueva dimensión al estudio de la genética de poblaciones fósiles, ya que los investigadores de Atapuerca han conseguido sacar ADN nuclear y mitocondrial o de restos fósiles si no de sedimentos donde habitaron los individuos publicando sus conclusiones en la prestigiosa revista Science  Unearthing Neanderthal population history using nuclear and mitochondrial DNA from cave sediments.


Por tanto tenemos que estar preparados y atentos para nuevos descubrimientos en muy breve espacio de tiempo y como muchas veces ocurre en ciencia, cuantas mas cosas nuevas sabemos, más preguntas van a aparecer ya que esto va más deprisa incluso de lo que creíamos.


REFERENCIAS:

Altares, G. 2021. ¿Y si los neandertales somos nosotros?. El País, https://elpais.com/ciencia/2021-04-09/y-si-los-neandertales-somos-nosotros.html

Domínguez, N. 2021. El genoma más antiguo de un europeo desvela sexo continuo con los neandertales. El País, https://elpais.com/ciencia/2021-04-07/el-genoma-mas-antiguo-de-un-europeo-desvela-sexo-continuo-con-los-neandertales.html

Hajdinjak, M., Mafessoni, F., Skov, L., Vernot, B., Hübner, A., Fu, Q., Essel, E., Nagel, S., Nickel, B., Richter, J., Moldovan, O.T., Constantin, S., Endarova, E., Zahariev, N., Spasov, R., Welker, F., Smith, G.M., Sinet-Mathiot, V., Paskulin, L., Fewlass, H., Talamo, S., Rezek, Z., Sirakova, S., Sirakov, N., McPherron, S.P., Tsanova, T., Hublin, J-J., Peter, B.M., Meyer, M., Skoglund, P., Kelso, J. & Pääbo, S. 2021. Initial Upper Palaeolithic humans in Europe had recent Neanderthal ancestry. Nature Ecology & Evolution, 592: 253-257.

Prüfer, K., Racimo, F., Patterson, N., Jay, F., Sankararaman, S., Sawyer, S., Heinze, A., Renaud, G., Sudman, P.H., de Filippo, C., Li, H., Mallick, S., Dannemann, M., Fu, Q., Kircher, M., Kuhlwilm, M., Lachmann, M., Meyer, M., Ongyerth, M., Siebauer, M., Theunert, C., Tandon, A., Moorjani, P., Pickrell, J., Mullikin, J.C., Vohr, S.H., Green, R.E., Hellmann, I., Johnson, P.L.F., Blanche, H., Cann, H., Kitzman, J.O., Shendure, J., Eichler, E.E., Lein, E.S., Bakken, T.E., Golovanova, L.V., Doronichev, V.B., Shunkov, M.V., Derevianko, A.P., Viola, B., Slatkin, M., Reich, D., Kelso, K., & Pääbo, S. 2014. The complete genome sequence of a Neandertal from the Altai Mountains. Nature, 505: 43-49.

Prüfer, K., Posth, C., Yu, H., Stoessel, A., Spyrou, M.A., Deviese, T., Mattonai, M., Ribechini, E., Higham, T., Velemínský, P., Brůžek, & J. Krause, J. 2021. A genome sequence from a modern human skull over 45,000 years old from Zlatý kůň in Czechia. Nature Ecology & Evolution.

Vernot, B., Zavala, E.I., Gómez-Olivencia, A., Jacobs, Z., Slon, V., Mafessoni, F., Romagné, F., Pearson, A., Petr, M., Sala, N., Pablos, A., Aranburu, A., Bermúdez de Castro, J.M., Carbonell, E., Li, B., Krajcarz, M.T., Krivoshapkin, A.I., Kolobova, K.A., Kozlikin, M.B., Shunkov, M.V., Derevianko, A.P., Viola, B., Grote, S., Essel, E., López Herráez, D., Nagel, S., Nickel, B., Richter, J., Schmidt, A., Peter, B., Kelso, J., Roberts, R.G., Arsuaga, J-L. & Meyer, M. 2021. Unearthing Neanderthal population history using nuclear and mitochondrial DNA from cave sediments. Science, 372(6542).

lunes, 15 de marzo de 2021

EL LENGUAJE DE LOS NEANDERTALES

Hasta el momento, el estudio del ADN nos había permitido sugerir la idea que que los neandertales tenían capacidades lingüísticas, principalmente por el descubrimiento de la variante genética FOXP2 en los neandertales, que es característica del Homo sapiens y que está relacionada con las capacidades lingüísticas, tal y como se ha comprobado en diferentes estudios, pero faltaba la prueba paleontológica que lo confirmase.


Un equipo de investigadores españoles de la Cátedra de Otoacústica Evolutiva y Paleoantropología de HM Hospitales y la Universidad de Alcalá (UAH), liderados por Mercedes Conde Valverde, han presentado las primeras evidencias paleontológicas claras de la existencia de lenguaje fuera de nuestra especie en un artículo publicado el pasado el 1 de marzo en la revista Nature ecology & evolution con el título de Neanderthals and Homo sapiens had similar auditory and speech capacities (Conde-Valverde et al., 2021).


Basándose en el estudio del patrón auditivo de los neandertales, se comprueba que es similar al de la especie Homo sapiens y que el resto de primates no lo tienen. Este hecho se ha determinado mediante el estudio de un parámetro denominado ancho de banda ocupado (OBW en sus siglas en inglés), que mide en qué rango de frecuencias eres capaz de oír con una nitidez muy grande y, por tanto, la capacidad de identificar las consonantes que es lo que marca la diferencia con otros primates. Para todo este estudio se han utilizado modelos tridimensionales a partir de técnicas de tomografía computarizada de restos ejemplares neandertales y de especies anteriores procedentes del yacimiento de la Sima de los Huesos de Atapuerca.


En el artículo concluye que no hay diferencia estadística significativa entre los neandertales y los humanos modernos en las variables anatómicas que determinan las capacidades auditivas relacionadas con el lenguaje, basadas en el estudio del OBW, permitiendo la producción de consonantes, que lo distingue del modelo basado en vocales que por ejemplo tienen los chimpancés. Adicionalmente, dado que hay pruebas de que la producción de vocales y consonantes se procesan de forma separada en el cerebro humano se ha determinado la conexión entre el OBW y la comprensión del lenguaje.


Este artículo cambia un paradigma de la ciencia evolutiva, ya que hasta el momento se pensaba que la morfología del aparato fonador de los neandertales sugería que no podían hablar y este artículo destierra esa teoría. Como dice Juan Luis Arsuaga, profesor de la Universidad Complutense de Madrid, director del Museo de la Evolución Humana, codirector de las excavaciones e investigaciones en Atapuerca y coautor del trabajo, “Uno de los grandes problemas en el estudio de la historia evolutiva de los seres humanos era establecer si hubo alguna otra especie humana, diferente a la nuestra, que también dispusiera de lenguaje. En concreto, la posibilidad de que los neandertales también hablasen ha sido una de las polémicas más intensas y trascendentes de las últimas décadas”.


Aunque este artículo es el más relevante en cuanto a la demostración de las capacidades lingüísticas de los neandertales, no es el único y hay otros artículos que relacionan la morfología del oído interno y las relaciones filogenéticas y afinidades entre las diferentes especies, por ejemplo de simios extintos. El artículo analiza el caso de grandes simios del Mioceno tardío y su relación con los homínidos, publicado en Proceedings of the National Academy of Sciences of the United States of America, desarrolla este tema en profundidad, usando la morfología de los canales semicirculares del oído interno, también usando tomografías computarizadas, comparándolas con las de dos especies extintas para reconstruir el morfotipo a partir del cual evolucionaron los primeros homínidos.


A partir del articulo publicado Nature se pone de manifiesto la evolución de los neandertales respecto a especies predecesoras en cuanto con compresión y comportamiento y esto nos lleva a la reflexión de la entrada anterior del blog sobre la relación filogenética entre Homo neanderthalensis y Homo sapiens y si está característica común del lenguaje la podemos considerar como una evolución convergente que se ha desarrollado por separado como especies diferentes o bien la han heredado de un antepasado común. De nuevo aparece la reflexión sobre cuán alejadas están ambas especies y si realmente son especies diferentes. 


La opinión de los autores del artículo es que el incremento de las capacidades auditivas y de lenguaje ocurrió en las dos especies posteriormente a su anterior ancestro común. Siendo esto así nos quedarían 2 alternativas:


  • Proceso de convergencia adaptativa del incremento de eficiencia vocal en ambos linajes

  • Potencial flujo de genes, es decir, hibridación, entre ambos linajes


¿Cuál de ellas es la correcta? De nuevo muchas preguntas sobre la evolución humana siguen abiertas, y aunque se siguen aportando nuevos datos, todavía queda mucho por investigar.


Referencias:


Benitez A. & Longa V.M. 2011. The role of fossil DNA in Paleoanthropology: FOXP2, Neanderthals, and language. Zephyrus, 67: 45-68.


Conde-Valverde M., Martinez I., Quam R. M., Rosa M., Velez A. D., Lorenzo C., Jarabo P., Bermudez de Castro JM., Carbonell E. & Arsuaga J.L. 2021.Conde-Valverde M., Martinez I., Quam R. M., Rosa M., Velez A. D., Lorenzo C., Jarabo P., Bermudez de Castro JM., Carbonell E. & Arsuaga J.L. 2021. Neanderthals and Homo sapiens had similar auditory and speech capacities. Nature ecology & evolution, 5: 609-615.


Urciuoli A., Zanolli C., Almécija S., Beaudet A., Dumoncel J., Morimoto N., Nakatsukasa M, Moyà-Solà S., Begun D., & Alba D. 2021. Reassessment of the phylogenetic relationships of the late Miocene apes Hispanopithecus and Rudapithecus based on vestibular morphology. Proceedings of the National Academy of Sciences of the United States of America, 118 (5).


Webgrafía:


Investigadores españoles encuentran la evidencia paleontológica que demuestra que los neandertales hablaban. (2021). Museo de la evolución humana.https://www.museoevolucionhumana.com/es/noticias-meh/investigadores-espanoles-encuentran-la-evidencia-paleontologica-que-demuestra-que-los-neandertales-hablaban


jueves, 30 de abril de 2020

ESTO ES EL FIN...


Bienvenidos un día más a mis entradas, está vez, se trata se un post un poco más triste, ya que se trata de mi final en este blog…🥺

Debo admitir que cuando comencé con el blog, no sabía muy bien de que hablar, veía muchos artículos interesantes y me veía abrumada al no saber bien de que temas publicar en mis posts.

Sin embargo, a medida que iba pasando el tiempo me di cuenta y aprendí a distinguir entre lo que me gustaba y lo que no… veamos un breve resumen de todas ellas.

En mi primera entrada os hablé de Yarrabubba, un asteroide de más de 70 kilómetros que impactó en Australia y el cuál es considerado uno de los más antiguos de todo el planeta.
Estaba compuesto por tantos materiales radiactivos que cuando impactó contra el planeta dejó un cráter del tamaño de la propia Australia ¡Increíble!
Además, Yarrabubba sirvió para ver como ha ido evolucionando la tierra hasta nuestros días y, creedme, ha evolucionado más de lo que creemos.


En la segunda entrada os hablé sobre cómo una cascada de más de 1 kilómetro y medio de longitud se encargó de inundar el Mar Mediterráneo.
Esta inundación se llamó la “Megainundación del Zancliense”. Además, lo más increíble es que acabó con la “Crisis de Salinidad del Messiniense” e hizo que la Cuenca del Mediterráneo se secara casi por completo y dejase una laguna enorme de sal.


Y por último, en mi tercera y última entrada os expliqué que ocurrió para que la población del norte de La India se extendiese por la erupción de un volcán llamado Toba hace más de 74.000 millones de años.
Os conté que se encontraros restos líticos en la localidad de Dhaba, los cuales nos proporcionaban una secuencia más o menos arqueológica detallada.
Me resultó curioso ver que se encontraron tres excavaciones diferentes con distintos componentes cada una.
Y por último decir que estas secuencias encontradas en Dhaba consolidaron las pruebas de que las tecnología en “industrias” estaban ya presentes en La India antes de la erupción.


 Y ahora…¿Por qué estos temas?

Pues bien, como dije antes, al comienzo de este blog, no sabía muy bien como enfocar mis entradas y hacia que tema inclinarme.
 Pero después de investigar y leer varios artículos, me di cuenta que lo que más miraba eran artículos de procesos que han dado lugar al planeta tal y como lo conocemos hoy nosotros.
Desde siempre me ha gustado viajar y cuando viajo, me gusta investigar los sitios a los que voy y me gusta curiosear si hay sitios geográficos importantes en esos lugares.
Por eso elegí este tema, me gusta ver cómo la Tierra ha evolucionado por diversos motivos y que haya llegado a estar así, como la vemos nosotros.

Espero que os haya gustado mucho mi paso por este blog, para mí ha sido un enorme placer participar.
¡Hasta siempre amigos!❤️


viernes, 3 de abril de 2020

¿Extensión por una erupción?

Bienvenidos otro día más a estás, mis entradas, en las que intento que todos aprendamos y curioseemos un poco más acerca de los procesos que vamos descubriendo a lo largo del tiempo.

En la anterior entrada os hablé sobre aquella “cascada” de sedimentos de más de un kilómetro que inundó toda la Cuenca del Mediterráneo.

Hoy quería hablaros sobre cómo la población del norte de India se extiende por la erupción de Toba hace 74.000 millones de años.

En primer lugar, no se sabe muy bien cuando llegó el Homosapiens a la India ni tampoco sabemos el impacto de las erupciones volcánicas en los homínidos. El análisis del ADN mitocondrial de las poblaciones actuales de la India indican que la región ayudó a colonizar Australasia por el Homosapiens. Sin embargo, no existen pruebas que evidencien esto, ya que no hay datos para un periodo de tiempo concreto (entre los 80 y los 50 ka).

Ya que hay muy poco rastro esquelético humano del Pleistoceno entre África y el sur de Asia, el registro de este último se basa principalmente en los rastros encontrados de piedras y el ADN de las poblaciones modernas, así como otros rastros encontrados más raros (como la cáscara de huevo de avestruz grabada).

Los restos líticos encontrados son de la localidad de Dhaba, situada en las orillas del río Middle Son (norte de India). Dhaba nos proporciona una secuencia arqueológica muy detallada, además de “tecnologías Paleolíticas” basadas en unas cuchillas que datan de aproximadamente de 39 ka(aunque esta fecha está aún en duda).

Añadir que ,la localidad de Dhaba consta de 3 excavaciones en las orillas norte del río Son y al oeste en su confluencia con el río Rehi, las cuales eran una zanja escalonada colocada en los sedimentos de la ladera de la colina.
Aquí podemos observar las excavaciones.

La primera de todas se seleccionó como la superficie de la concentración de artefactos de la superficie media más densa, con zonas en las que los sedimentos estaban muy erosionados en varios puntos de la pendiente.
Las dos últimas fueron seleccionadas ya que había una acumulación de los artefactos del medio y además una concentración densa de microcuchillas criptocristalinas y escamas en las zonas más altas de las excavaciones.
Y aquí podemos ver la estratigrafía.


Las excavaciones se hicieron sobre sedimentos coluviales y aluviales de arenisca proteozoica y roca madre de esquisto.

Estas trincheras están formadas por arenas ,limo y arcillas alteradas. Las cimas de las 2 primeras están a 16 metros sobre el nivel del río. 
La primera tiene además areniscas angulares, guijarros de pizarra, nódulos de carbonato y rizolitos.
La segunda tiene nódulos de carbonato y algunas rocas que recubren el lecho del esquisto. La tercera está a 1 km al oeste de la confluencia de los ríos y tiene unos 3 metros de profundidad. Está formada por arenas y gravas, con arenisca en descomposición y roca madre de esquisto.

Estos artefactos de las tres excavaciones abarcan unos 55 mil años aproximandamente.
Las localidaes de Dhaba juntas aportan evidencias de la ocupación humana de los últimos 80 mil años. Esta ocupación abarca la erupción de Toba y la industria de herramientas de piedra no muestra cambios significativos en la tecnología hasta la introducción de la tecnología microlítica.
La industria lítica de Dhaba es muy parecida a la de la Edad de Piedra de África o Australia (aquí interpretado como el producto del Homosapiens), ya que se dispersaron hacia el este fuera de África.

Por tanto, se llega a la conclusión de que las secuencias encontradas en Dhaba consolida las pruebas de que todas las tecnologías e industrias estaban ya presentes en India antes y después de la erupción. Esta tecnología evolucionó desde Levallois hacia sistemas de reducción del núcleo lamelar y, finalmente vio la introducción del microlítico en forma de microcuchillas con respaldo muy probablemente mucho después de que el Homosapiens apareciera por primera vez en esta región.

Por último y como opinión personal, me ha parecido muy interesante ver como a raíz de unos restos y excavaciones encontradas, podemos llegar a saber si hubo población o como se extinguió o sus características.
Es increíble ver como vivían las poblaciones antepasadas ¿no os parece genial?

Y esto ha sido todo por la entrada de hoy,¡Espero que os haya gustado mucho y que hayáis aprendido un poquito más!
¡Nos vemos en la siguiente!👋🏼❤️


REFERENCIAS:
Clarkson, C., Harris, C., Li, B. et al. Human occupation of northern India spans the Toba super-eruption ~74,000 years ago. Nat Commun 11, 961 (2020). https://doi.org/10.1038/s41467-020-14668-4

DOI:

WEBGRAFÍA:
https://rdcu.be/b3cY1

jueves, 12 de mayo de 2016

Una novedosa forma de muestreo

Artículo original: Mammalian mitochondrial capture, a tool for rapid screening of DNA preservation in faunal and undiagnostic remains, and its application to Middle Pleistocene specimens from Qesem Cave (Israel)

Viviane Slona (a) Isabelle Glockea (a) Ran Barkai (b), Avi Gopher (b), Israel Hershkovitz (c), Matthias Meyer (a).

a Department of Evolutionary Genetics, Max Planck Institute for Evolutionary Anthropology, Leipzig, Germany
b Department of Archaeology and Ancient Near East Cultures, The Lester and Sally Entin Faculty of Humanities, Tel-Aviv University, Israel
c Department of Anatomy and Anthropology, Sackler Faculty of Medicine, Tel-Aviv University, Israel

Los restos óseos de faunas prehistóricas son a menudo demasiado fragmentaria para permitir la identificación a nivel de especie en base a la morfología, lo que complica los intentos de recuperar las secuencias de ADN antiguo de estos restos. Se diseñó un nuevo enfoque que permite la detección a gran escala de los restos no diagnóstico, para la conservación de ADN mitocondrial antiguo. Después de la extracción de ADN y los preparativos de la biblioteca de ADN, las bibliotecas se enriquecen de ADN mitocondrial utilizando un conjunto de sondas, que cubren la totalidad de los genomas mitocondriales de 242 especies de mamíferos. Se demuestra que la eficiencia de enriquecimiento mitocondrial usando sondas de captura de mamíferos no es sustancialmente menor en comparación con el enriquecimiento utilizando sondas específicas de la especie.

Las excavaciones en la cueva Qesem (Israel), que data de 420-200 ka, han dado un gran conjunto de restos óseos y dentales, incluyendo un pequeño número de dientes de homínidos. A medida que los acontecimientos recientes en la extracción de ADN antiguo, y métodos de preparación de la biblioteca han permitido la generación de los datos de secuenciación de muestras del Pleistoceno medio, que tuvo como objetivo investigar la viabilidad de la recuperación de las moléculas de ADN antiguo de especímenes procedentes de la cueva Qesem. La investigación actual se llevó a cabo utilizando cuarenta y dos restos de fauna de seis diferentes áreas de la cueva, como un estudio preliminar que podría ser utilizado, permanece para su posterior análisis genético. Por desgracia, las bibliotecas de ADN a partir de muestras de Qesem Cave produjeron pocas secuencias que se pueden asignar a un genoma mitocondrial de los mamíferos. Estas secuencias no muestran la estructura del antiguo daño en el ADN que se espera de secuencias endógenas de esa edad. Por lo tanto, no hemos podido detectar la presencia de antiguas moléculas de ADN endógenas en los restos de fauna de la cueva Qesem.

Los recientes acontecimientos en la extracción de ADN antiguo (Dabney et al., 2013) y los métodos de preparación de la biblioteca (Gansauge y Meyer, 2013) han hecho que sea factible recuperar material genético de muestras antiguas fuera de permafrost, ya en el Pleistoceno Medio (Dabney et al., 2013 y Meyer et al., 2014). Sin embargo, la preservación de las moléculas de ADN en el tiempo, tanto en términos de cantidad y calidad, es muy variable, ya que pueden verse afectados, entre otros, por la temperatura del suelo, la acidez, la salinidad, la exposición a la luz solar o la disponibilidad de agua libre y oxígeno ( Lindahl, 1993 Bollongino et al., 2008 y Sawyer et al., 2012). En particular, los climas cálidos parecen afectar negativamente a la conservación de las moléculas de ADN antiguo (Bollongino et al., 2008 y Allentoft et al., 2012). Aunque se necesitan 100 mg o menos de polvo de hueso / diente por técnicas de extracción de ADN actual (Dabney et al., 2013), el muestreo sigue siendo un proceso destructivo. Por lo tanto, la preservación antiguo ADN se determina mejor en los restos de fauna o fragmentos no diagnóstico, antes de probar los fósiles de homínidos, en el supuesto de que los restos óseos de lugares similares en un sitio arqueológico habrían estado expuestos a condiciones ambientales similares.

La detección de muestras antiguas para la preservación de ADN se dirige de forma rutinaria el genoma mitocondrial (MT), un pequeño, circular y no recombinar-molécula de ADN que se hereda por vía materna. La ocurrencia de ADNmt en las copias por célula más altos, en comparación con el ADN nuclear, aumenta las posibilidades de recuperación de ADN antiguo (Pääbo et al., 2004). Además, el rápido ritmo de evolución ADNmt permite la identificación de organismos discretos basados ​​en secuencias mitocondriales, que es particularmente importante cuando se trabaja con fragmentos de hueso o de los dientes de origen incierto. En el pasado, la reacción en cadena de la polimerasa (PCR) se ha utilizado para amplificar tramos cortos de ADN mitocondrial que llevan diferencias de secuencia distintivos entre especies estrechamente relacionadas, por ejemplo en el gen de citocromo b (Loreille et al., 1997 y Burger et al., 2002 ). Sin embargo, este enfoque no es aplicable a una amplia gama de taxones vagamente relacionados. Además, los métodos basados ​​en la PCR no son lo suficientemente sensibles como para detectar los pequeños rastros de ADN altamente degradado que pueden estar presentes en muestras muy antiguas o en los procedentes de sitios bajo condiciones climáticas difíciles (Dabney et al., 2013). Por el contrario, los métodos basados ​​en bibliotecas permiten la amplificación de todos los fragmentos de ADN recuperados en un extracto de ADN. Esto se consigue uniendo engarces de ADN con secuencias conocidas a cada fragmento de ADN antes de la amplificación por PCR. bibliotecas de ADN pueden entonces ser secuenciados directamente en un secuenciador de alto rendimiento, recuperando así las secuencias de fragmentos de ADN al azar. Esta simple estrategia es a veces suficiente para determinar la fuente de especies de una muestra antigua (Blow et al., 2008), pero debido a la dominancia de ADN microbiano en la mayoría de los extractos de ADN antiguo, que tiene un costo prohibitivo para el cribado de grandes conjuntos de muestras. Una alternativa más rentable es enriquecedor bibliotecas de ADN para secuencias mitocondriales. Esto se logra mediante la hibridación de la biblioteca para piezas sintéticas de ADN ( 'cebos') que llevan la secuencia de interés. captura por hibridación ha utilizado con éxito para generar secuencias del genoma del ADNmt, incluso a partir de ADN muy degradado, como de oso y restos de homínido Sima de los Huesos (España) (Dabney et al., 2013 y Meyer et al., 2014). Una limitación de captura de hibridación es que la selección de los cebos de captura apropiadas requiere un conocimiento a priori de la especie en estudio.


 Tabla1 Identificación de especies de las muestras estudiadas y características de la biblioteca de ADN generados a partir de cada uno, por área de muestreo.                                                                                                                                                                                                                                     Se describen un enfoque novedoso, "captura de mamíferos mitocondriales ", que permite la detección a gran escala de los restos de fauna y no diagnóstico, para la preservación de ADN antiguo. Para este propósito, utilizamos una piscina cebo que incluye secuencias del genoma de ADNmt de 242 especies de mamíferos, entre ellos la mayoría de las especies (o parientes cercanos de los mismos) que se encuentran en los sitios de mediados y finales del Pleistoceno típicos. Se demuestra la eficacia de la captura de mamíferos mitocondrial de muestras de osos de cuevas ya se sabe que contienen ADN, y el uso de este método para determinar el estado de conservación de ADN en el Pleistoceno Medio restos de la cueva Qesem.

Tabla 2.Lista de las especies de mamíferos incluido en el grupo de sondas de captura de mamíferos mitocondrial.

Qesem Cave es una cámara kárstico situado en un terreno de piedra caliza montañosa a unos 12 kilómetros de la moderna ciudad de Tel-Aviv (Israel). Hominin ocupación de la cueva osciló entre hace 420 y 200 mil años (ka) (Barkai et al., 2003, Gopher y col., 2010 y Mercier et al., 2013), como lo demuestra el descubrimiento de varios dientes de homínidos (Hershkovitz et al., 2011), artefactos líticos pertenecientes a la Acheulo-Yabrudian Complejo Cultural (Barkai y Gopher, 2013), la evidencia para el uso de fuego (Karkanas et al., 2007, Barkai y Gopher, 2013 y Shahack-Gross et al. , 2014), y miles de restos óseos y dentales de fauna (Stiner et al., 2009, Stiner et al., 2011 y Blasco et al., 2014). Los sedimentos en el sitio consisten sobre todo en las capas de color oscuro de arcilla, muy probablemente procedente de la infiltración de terra rossa (Karkanas et al., 2007). La temperatura media anual de la región es de aproximadamente 20 ° C. La precipitación media es de ~ 500 mm por año, a pesar de la precipitación anual puede variar drásticamente.

El análisis morfológico de los restos dentales de homínidos de Qesem cueva revela su similitud con las posteriores Los seres humanos Skhul / Qafzeh temprana anatómicamente modernos, aunque con algunos rasgos neandertales similar (Hershkovitz et al., 2011), dando a luz varios escenarios evolutivos que representan estos rasgos anatómicos . Los datos genéticos de los restos dentales permitirían seguir investigando la identidad de los homínidos Qesem Cave, así como para dilucidar su relación con otros homínidos arcaicos para los que las secuencias de ADN ya han sido generados (por ejemplo, Meyer et al., 2012, Meyer et al., 2014 y Prüfer et al., 2014). La abundancia de restos de fauna en la cueva Qesem ofrece la oportunidad de estudiar la preservación de ADN antiguo en diferentes áreas de la cueva. Este estudio preliminar podría ser utilizado para seleccionar hominin sigue para un análisis genético, disminuyendo así muestreo destructivo de estos fósiles valiosos. Por otra parte, muchos de los restos de fauna de la cueva Qesem son demasiado fragmentarios para permitir la identificación a nivel de especie en base a su morfología (Stiner et al., 2009 y Blasco et al., 2014). La identificación de las especies en función de su material genético ayudaría a echar más luz sobre los patrones del entorno y de la caza de los homínidos de Qesem.

Los restos óseos de los sitios arqueológicos a menudo incluyen una gran proporción de fragmentos no diagnóstico, como es el caso en la cueva Qesem (Stiner et al., 2009 y Blasco et al., 2014). Se demuestra que el enriquecimiento selectivo de secuencias mitocondriales de dos osos de las cavernas antiguas es comparable utilizando sondas específicas de la especie y el uso de la sonda conjunto de los mamíferos. En particular, ya que ambos genomas mitocondriales humanos y neandertales se incluyen en el conjunto de la sonda, que podría ser utilizado para identificar previamente no reconocido de homínidos antiguos restos, siempre que las secuencias interceptado puede autenticado como ADN antiguo endógeno. Por lo tanto, esta sonda conjunto constituye una poderosa herramienta para la detección de restos óseos y dentales sin identificar la presencia de ADN antiguo endógeno. Además, la identificación de especies de restos de fauna no diagnóstico, en función de su material genético podría contribuir a la reconstrucción filogenética de las especies existentes y extintos, así como a los estudios zoo-arqueológica y paleo-ambientales llevadas a cabo en los sitios prehistóricos.


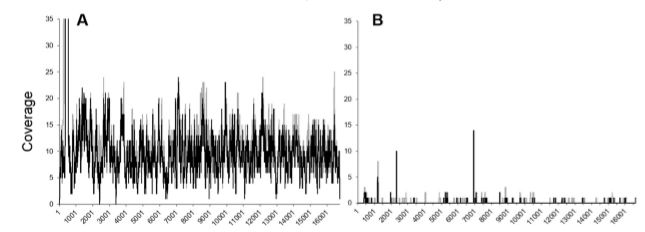
   Figura 1.Genoma mitocondrial después del enriquecimiento con sondas específicas osos de cueva (gris), en comparación con el enriquecimiento con las sondas mitocondriales de mamíferos (negro).                                                                                                                                                                                                                                                                                                                               Además, aunque las sondas de captura mitocondriales de mamíferos son menos eficientes que especies específicas de las sondas en la recuperación de secuencias mitocondriales, especialmente para muestras en las que el ADN es altamente degradado, como el ~430 oso de las cavernas ka de Sima de los Huesos, el conjunto de sonda de mamífero potencialmente puede ser utilizado para capturar secuencias mitocondriales de restos de fauna de una especie de mamífero conocidas. Tal estrategia eliminaría el proceso costoso y requiere mucho tiempo de diseño específico de la especie sondas para cada nueva especie de mamífero estudiados en un marco ADN antiguo; así como ayudar en la verificación de la identificación de especies putativo en los casos de la morfología ambigua. Como experimentos de laboratorio y la secuencia se pueden realizar en paralelo para múltiples muestras de ambas especies conocidos y desconocidos, la captura de mamíferos mitocondrial permite un procesamiento eficiente de un gran número de muestras en el cribado de la antigua preservación de ADN.

Conclusión:

A pesar de utilizar métodos de preparación de extracción de ADN y de biblioteca que se han desarrollado específicamente para hacer frente a las moléculas de ADN antiguo acortados y dañadas (Dabney et al., 2013 y Gansauge y Meyer, 2013), no fuimos capaces de recuperar las secuencias de ADN que podría ser inequívocamente atribuidos a el genoma endógeno de cualquiera de los restos de fauna probadas de Qesem cueva. Sin embargo, el conjunto de sonda de captura de mamíferos mitocondrial, que fue diseñado para el enriquecimiento mitocondrial de especies de mamíferos no identificado, ha demostrado ser una herramienta eficaz para el cribado a gran escala de los conjuntos óseos no diagnóstico, para la preservación de ADN antiguo. El uso de este método para evaluar la conservación del ADN  pueden facilitar las decisiones futuras sobre el muestreo.

Referencias:

    • Allentoft et al., 2012
    • M.E. Allentoft, M. Collins, D. Harker, J. Haile, C.L. Oskam, M.L. Hale, P.F. Campos, J.A. Samaniego, M.T. Gilbert, E. Willerslev, G. Zhang, R.P. Scofield, R.N. Holdaway, M. Bunce
    • The half-life of DNA in bone: measuring decay kinetics in 158 dated fossils
    • Proceedings of the Royal Society B: Biological Sciences, 279 (2012), pp. 4724–4733
    • Barkai and Gopher, 2013
    • R. Barkai, A. Gopher
    • Cultural and biological transformations in the Middle Pleistocene Levant: a view from Qesem Cave, Israel
    • ,in: T. Akazawa, Y. Nishiaki, K. Aoki (Eds.), Dynamics of Learning in Neanderthals and Modern Humans, Cultural Perspectives, Replacement of Neanderthals by Modern Humans Series, vol. 1, , Springer, Japan (2013), pp. 115–137
    • Barkai et al., 2003
    • R. Barkai, A. Gopher, S.E. Lauritzen, A. Frumkin
    • Uranium series dates from Qesem Cave, Israel, and the end of the Lower Palaeolithic
    • Nature, 423 (2003), pp. 977–979
    • Blasco et al., 2014
    • R. Blasco, J. Rosell, A. Gopher, R. Barkai
    • Subsistence economy and social life: a zooarchaeological view from the 300 kya central hearth at Qesem Cave, Israel
    • Journal of Anthropological Archaeology, 35 (2014), pp. 248–268
      • Blow et al., 2008
      • M.J. Blow, T. Zhang, T. Woyke, C.F. Speller, A. Krivoshapkin, D.Y. Yang, A. Derevianko, E.M. Rubin
      • Identification of ancient remains through genomic sequencing
      • Genome Research, 18 (2008), pp. 1347–1353
      • Bollongino et al., 2008
      • R. Bollongino, A. Tresseta, J.D. Vignea
      • Environment and excavation: pre-lab impacts on ancient DNA analyses
      • Comptes Rendus Palevol, 7 (2008), pp. 91–98
    • Gansauge and Meyer, 2013
    • M.-T. Gansauge, M. Meyer
    • Single-stranded DNA library preparation for the sequencing of ancient or damaged DNA
    • Nature Protocols, 8 (4) (2013), pp. 737–748
    • Gansauge and Meyer, 2014
    • M.-T. Gansauge, M. Meyer
    • Selective enrichment of damaged DNA molecules for ancient genome sequencing
    • Genome Research, 24 (2014), pp. 1543–1549
    • Gilbert et al., 2005
    • M.T. Gilbert, H.J. Bandelt, M. Hofreiter, I. Barnes
    • Assessing ancient DNA studies
    • Trends in Ecology and Evolution, 20 (10) (2005), pp. 541–544
    • Gopher et al., 2010
    • A. Gopher, A. Ayalon, M. Bar-Matthews, R. Barkai, A. Frumkin, P. Karkanas, R. Shahack-Gross
    • The chronology of the late Lower Paleolithic in the Levant based on U-Th ages of speleothems from Qesem Cave, Israel
    • Quaternary Geochronology, 5 (2010), pp. 644–656
        • J. Dabney, M. Knapp, I. Glocke, M.-T. Gansauge, A. Weihmann, B. Nickel, C. Valdiosera, N. García, S. Pääbo, J.-L. Arsuaga, M. Meyer
        • Complete mitochondrial genome sequence of a Middle Pleistocene cave bear reconstructed from ultrashort DNA fragments
        • Proceedings of the National Academy of Sciences of the United States of America, 110 (2013), pp. 15758–15763
    • Karkanas et al., 2007
    • P. Karkanas, R. Shahack-Gross, A. Ayalon, M. Bar-Matthews, R. Barkai, A. Frumkin, A. Gopher, M.C. Stiner
    • Evidence for habitual use of fire at the end of the Lower Paleolithic: site-formation processes at Qesem Cave, Israel
    • Journal of Human Evolution, 53 (2007), pp. 197–212

  • Sawyer et al., 2012
  • S. Sawyer, J. Krause, K. Guschanski, V. Savolainen, S. Pääbo
  • Temporal patterns of nucleotide misincorporations and DNA fragmentation in ancient DNA
  • PLoS ONE, 7 (3) (2012), p. e34131
    • Stiner et al., 2009
    • M.C. Stiner, R. Barkai, A. Gopher
    • Cooperative hunting and meat sharing 400–200 kya at Qesem Cave, Israel
    • Proceedings of the National Academy of Sciences of the United States of America, 106 (2009), pp. 13207–13212
    • Stiner et al., 2011
    • M.C. Stiner, A. Gopher, R. Barkai
    • Hearth-side socioeconomics, hunting and paleoecology during the late Lower Paleolithic at Qesem Cave, Israel
    • Journal of Human Evolution, 60 (2011), pp. 213–233