Mostrando entradas con la etiqueta Australia. Mostrar todas las entradas

jueves, 30 de abril de 2020

ESTO ES EL FIN...


Bienvenidos un día más a mis entradas, está vez, se trata se un post un poco más triste, ya que se trata de mi final en este blog…🥺

Debo admitir que cuando comencé con el blog, no sabía muy bien de que hablar, veía muchos artículos interesantes y me veía abrumada al no saber bien de que temas publicar en mis posts.

Sin embargo, a medida que iba pasando el tiempo me di cuenta y aprendí a distinguir entre lo que me gustaba y lo que no… veamos un breve resumen de todas ellas.

En mi primera entrada os hablé de Yarrabubba, un asteroide de más de 70 kilómetros que impactó en Australia y el cuál es considerado uno de los más antiguos de todo el planeta.
Estaba compuesto por tantos materiales radiactivos que cuando impactó contra el planeta dejó un cráter del tamaño de la propia Australia ¡Increíble!
Además, Yarrabubba sirvió para ver como ha ido evolucionando la tierra hasta nuestros días y, creedme, ha evolucionado más de lo que creemos.


En la segunda entrada os hablé sobre cómo una cascada de más de 1 kilómetro y medio de longitud se encargó de inundar el Mar Mediterráneo.
Esta inundación se llamó la “Megainundación del Zancliense”. Además, lo más increíble es que acabó con la “Crisis de Salinidad del Messiniense” e hizo que la Cuenca del Mediterráneo se secara casi por completo y dejase una laguna enorme de sal.


Y por último, en mi tercera y última entrada os expliqué que ocurrió para que la población del norte de La India se extendiese por la erupción de un volcán llamado Toba hace más de 74.000 millones de años.
Os conté que se encontraros restos líticos en la localidad de Dhaba, los cuales nos proporcionaban una secuencia más o menos arqueológica detallada.
Me resultó curioso ver que se encontraron tres excavaciones diferentes con distintos componentes cada una.
Y por último decir que estas secuencias encontradas en Dhaba consolidaron las pruebas de que las tecnología en “industrias” estaban ya presentes en La India antes de la erupción.


 Y ahora…¿Por qué estos temas?

Pues bien, como dije antes, al comienzo de este blog, no sabía muy bien como enfocar mis entradas y hacia que tema inclinarme.
 Pero después de investigar y leer varios artículos, me di cuenta que lo que más miraba eran artículos de procesos que han dado lugar al planeta tal y como lo conocemos hoy nosotros.
Desde siempre me ha gustado viajar y cuando viajo, me gusta investigar los sitios a los que voy y me gusta curiosear si hay sitios geográficos importantes en esos lugares.
Por eso elegí este tema, me gusta ver cómo la Tierra ha evolucionado por diversos motivos y que haya llegado a estar así, como la vemos nosotros.

Espero que os haya gustado mucho mi paso por este blog, para mí ha sido un enorme placer participar.
¡Hasta siempre amigos!❤️


jueves, 14 de febrero de 2019

¿Ornitorrincos en el Triásico? Pues...¡si!

¡Hola a tod@s! Bienvenid@s a mi primera entrada del Blog de Paleontología de la UCM, soy Ester Saucedo y os quiero hablar de un reciente descubrimiento... ¡Un "primo" de los Ornitorrincos!
Eretmorhipis carrolldongi era un animal marino de, aproximadamente, 70 cm de largo con cuatro patas palmeadas, ojos y cabeza muy pequeños respecto al tamaño del resto del cuerpo, y como aspecto curioso, de su columna vertebral sobresalían unas láminas de hueso (como Stegosaurus, aunque de mucho menor tamaño). Tras esta pequeña introducción, primero os voy a hablar un poco del Ornitorrinco. Aquí os dejo una foto de una cría de este curioso animal, ¿a qué es una ricura?


Figura 1: Bebé Ornitorrinco. Fuente: "Pinterest".


El Ornitorrinco (Ornithorhynchus anatinus) es un animal muy curioso... se podría decir que todo él es una especie de Quimera: Pico de pato, pelaje y cuerpo que se asemejan al aspecto de un Castor, (incluida su cola en forma de pala), y reproducción ovípara (Si, ponen huevos). 
Pertenece a la orden de los Monotremas (mamíferos que siguen teniendo algunas características típicas de los reptiles, como la reproducción ovípara, o la cloaca (canal donde confluyen tracto digestivo, urinario, y reproductor)). A modo de curiosidad, los Equidnas ("Puerco espines") y los Ornitorrincos son los que forman este grupo. Os dejo unos enlaces al final de la entrada que aumentan la información.


Figura 2: Esqueleto de Ornitorrinco. 
       

Son endémicos del este de Australia y de la isla de Tasmania, siendo un símbolo de esas tierras. Otra característica que merece la pena mencionar es que son venenosos. Poseen un espolón en las patas posteriores (traseras), aunque esta característica solo se da en los machos.


Figura 3: Espolón en ext.posterior de Ornitorrinco macho.
                           

Ahora si, vamos a conocer a ese "supuesto pariente" de este tan curioso animal que es el Ornitorrinco.
Como ya mencionaba al inicio de esta entrada, se ha descubierto un especimen de Eretmorhipis carrolldongi. Un reptil marino descubierto en Hubei (China) que vivió en el Triásico temprano (se inicia hace unos 252,2 Ma y termina hace 247,2 Ma (millones de años). En este período, la zona dónde se encontraron los fósiles estaba cubierta de un mar no muy profundo (1m aprox.), sobre una plataforma de carbonato de extensión de más de 160 Km. Los fósiles fueron hallados en huecos profundos bajo esta plataforma carbonatada.


Figura 4: primer fósil con cráneo de E. carrolldongi.


Figura 5:
Vista dorsal de los cráneos de Ornithorhynchus anatinus y Eretmorhipis carrolldongi. (a) E. carrolldongi. (b) O. anatinus, basado en una imagen publicada. Colores: negro, fenestraciones craneales; marrón, surco prenasal; cartílagos azul claro, prenasal y labial; amarillo claro, hueso; Rosa, surco para cartílago labial. Símbolos: exn, nariz exterior; fn, fenestraciones nasales, ubicada debajo de exn; lc, cartílago labial; Ig, surco labial para cartílago labial; nc, cápsula nasal; op, os paradoxum; orbe, órbita pf, foramen pineal; pg, surco prenasal; pnc, cartílago prenasal de homología desconocida; utf, fenestración temporal superior; * Foramen sin nombre para el paso de una rama del nervio etmoidal; ** Foramen análogo a *. Las líneas de puntos marrones marcan la extensión anterior del exterior de la nariz y, por lo tanto, de la cápsula nasal y las estructuras asociadas, esclareciendo que el espacio intercrural de Eretmorhipis está frente a la cápsula nasal, a diferencia de Ornithorhynchus. Las barras de escala son de 1 cm de largo.


Por sus restos óseos se ha podido comprobar que la relación de parentesco entre estos dos animales puede ser posible. Algunos aspectos que coinciden son el tamaño de la cabeza y los ojos respecto al cuerpo (los ojos diminutos, entorpecían la visión y caza de presas), el hocico, del que se ha podido comprobar que sujetaba un pico cartilaginoso, y la gran abertura interna en el mismo, igual que en los Ornitorrincos. También se ha podido comprobar que en la parte inferior tenía unos mecanorreceptores (tacto) que probablemente le ayudaran a detectar presas. El estudio también mostró que es uno de los amniotas (clado de vertebrados tetrápodos) más antiguos, si no el que más.

Creo que las partes más destacables son los ojos y el hocico. En el estudio realizado por Cheng, L. et al., muestran que la mandíbula de Eretmorhipis era singular respecto a otros miembros de la orden Hupehsuchia (ya extinta) en que las dos ramas mandibulares son casi idénticas en un porcentaje de 90%. Esto hace que el perfil mandibular coincida con el cráneo. Este aspecto en otro miembros difería en que sus mandíbulas eran rectas y muy delgadas. Se sugirió que quizá entre las ramas mandibulares de Eretmorhipis era posible una alimentación parecida a la del Pelícano de nuestros días, en las que con la abertura de la boca ingería agua y con ello, otros seres vivos.

En ese nuevo esqueleto encontrado se muestra por primera vez el aspecto lateral que tenía Eretmorhipis, del que han podido extraer las conclusiones de que la cola y la zona del abdomen eran bastante rígidos, con lo cual, parece ser que solo podía flexionar caderas y cuello (¡pobrecillo!).

Como no, hay muchas imágenes que muestran la idea aproximada de como sería realmente Eretmorhipis carrolldongi. Por desgracia, al ser un animal ya extinto, nunca lo sabremos. Aquí os dejo uno de los dibujos que creo que mejor lo representan, y con esto, me despido hasta la siguiente entrada en el Blog. Espero que os haya gustado :)


Dibujo realizado por "Prehistorybyliam" en "DevianArt"

Ester.

Información y definiciones sobre la fauna tratada en los párrafos 1, 2 y 3:

He elegido las páginas de Wikipedia porque creo que es una gran fuente de información apta para todos los públicos


Imágenes:
https://www.pinterest.es/pin/408631366175054169 (Figura 1)
https://www.expertoanimal.com/curiosidades-sobre-el-ornitorrinco-21229.html (Figura 2)
https://www.quo.es/naturaleza/g1805/el-ornitorrinco-caracteristicas/ (Figura 3)
https://www.deviantart.com/prehistorybyliam/art/Eretmorhipis-783558933


REFERENCIAS:


  • Cheng, L., Yan, Ch., Motani, R., Jiang, D-Y., Tintori, A. & Rieppel, O. 2019. Early Triassic marine reptile representing the oldest record of unusually small eyes in reptiles indicating non-visual prey detection. Scientific Reports,9: 152 (2019).
  • Howland, H. C., Merola, S. & Basarab, J. R. The allometry and scaling of the size of vertebrate eyes. Vision Res 44, 2043–2065, https://doi.org/10.1016/j.visres.2004.03.023 (2004).
  • C. Gramling. Tiny eyes make a bizarre, ancient platypus-like reptile even weirder. Science News Online, January 24, 2019.
  • lunes, 26 de marzo de 2018

    Evolución por tierras lejanas II: el tigre de Tasmania


                      Para continuar hablando de evolución por tierras lejanas, esta entrada la voy a dedicar a la extinción del tigre de Tasmania y a la relación de la especie con la evolución convergente. Esta vez me voy a basar en el estudio realizado por Charles Y. Feigin, Axel H. Newton, Liliya Doronina, Jürgen Schmitz, Christy A. Hipsley, Kieren J. Mitchell, Graham Gower, Bastien Llamas, Julien Soubrier, Thomas N. Heider, Brandon R. Menzies, Alan Cooper, Rachel J. O’Neill y Andrew J. Pask: "Genome of the Tasmanian tiger provides insights into the evolution and demography of an extinct marsupial carnivor" (El genoma del tigre de tasmania ofrece pistas sobre la evolución y demografía de un marsupial carnívoro extinto). 


                       El  tigre de Tasmania (Thylacinus cynocephalus) fue la única especie dentro de la familia de Thylacinidae que sobrevivió hasta la era moderna. Era un marsupial carnívoro de tamaño grande que históricamente se distribuyó a lo largo de Australia antes de extinguirse en la zona hace alrededor de 3000 años. Esta extinción se dio por la manipulación ejercida por el ser humano en la especie.
                       Hará unos 14000 años, la población de Tasmania se quedó aislada por un aumento en los niveles del mar, hasta los comienzos del siglo XX. Los colonizadores europeos vieron un gran efecto  negativo de la especie sobre la ganadería ovina de Tasmania, por lo que decidieron comenzar con la eliminación de estos animales. El gobierno ofertó una paga de 1 dólar australiano por cada tilacino muerto. En consecuencia, la especie decayó rápidamente en número, quedando oficialmente extinta en 1982. El último tigre de Tasmania sabido murió en el Zoo de Hobart (Tasmania, Australia) en 1936. 


                       No obstante, lo que se estudia en el trabajo mencionado previamente, es la evolución convergente que esta especie ha tenido con los cánidos placentarios (o euterios). La evolución convergente es aquella en que dos especies con una filogenia completamente independiente (esto es, tienen distintos ancestros y, por tanto, distinta genética) terminan desarrollando estructuras físicas y de comportamiento similares de una forma 'curiosamente casual'.
    El estudio muestra cómo, sin tener un ancestro común, tanto los Tilacinos como los canidos euterios han terminado evolucionando de forma muy similar. Esto viene explicado en base a su similar alimentación carnívora en tiempos anteriores, que les ha llevado a un igual desarrollo del cráneo y, por tanto, de muchas de sus formas de actuar.

    Este caso de evolución convergente es de los que más llaman la atención. La convergencia fenotípica es muy alta y, como el estudio ha demostrado, hay una parte genética que también converge, lo que se ha usado como explicación a la similitud de comportamientos.


                     Como dato, además, dado que la especie se extinguió, el foco de estudio se ha tornado hacia el llamado Demonio de Tasmania. Se ha investigado su posible relacion, en la evolución convergente, con otras especies. En el trabajo en que se basa esta entrada, el demonio de Tasmania es comparado, en concreto y en lo que a la evolución convergente respecta, con los euterios bóvidos; no obstante, la conclusión obtenida es de unos pocos genes convergentes (5 para ser exactos), y una clara no-convergencia evolutiva entre este demonio de Tasmania y los euterios bóvidos.
    Os dejo una foto del demonio de Tasmania, y algun enlace sobre ésta curiosa especie que se ha convertido en el marsupial carnívoro más grande de Australia tras la extinción del Tilacino.


                         Para terminar, dejo también el enlace a un blog que trata el tema (basándose también en una de las investigaciones que he utilizado como ayuda), y otros enlaces de interés:


    - Con respecto a la evolución convergente: 


    - Sobre el zoo de Hobart:  


    - Sobre los Euterios en general (enlace 1) y los bóvidos en particular (enlace 2):
                     

    - El Demonio de Tasmania (por qué ese nombre, historia e información básica):


    REFERENCIAS

    • Feigin, C. Y., Newton, A. H., Doronina, L., Schmitz, J., Hipsley, C. A., Mitchell, K. J., ... & Menzies, B. R. (2018). Genome of the Tasmanian tiger provides insights into the evolution and demography of an extinct marsupial carnivore. Nature ecology & evolution, 2(1), 182. ( https://www.nature.com/articles/s41559-017-0417-y )

    lunes, 19 de marzo de 2018

    Encontrado el eslabón perdido (murciélago edition)

    El eslabón perdido de los murciélagos.

    Los murciélagos en Australia.

    Las principales islas de Nueva Zelanda son las más extensas del fragmento emergente del continente Zelandia, masas de tierra entre las cuales hoy se encuentran Nueva Caledonia, Chatham, la isla de Lord Howe y las islas Campbell1,2. Zelandia, separada de la parte Australo-Antartica de Gondwana en una división que comenzó hace 130 Ma (Millones de años).

     A día de hoy, Nueva Zeanda tiene una de las faunas biogeográficamente más distinctivas, que incluyen muchos antiguos linajes endémicos e inmigrantes más recientes. Su fuana actual de mamíferos terrestres consta de tres especies de murciélagos, las otras especies de mamíferos modernos han sido introducidas a lo largo de los últimos  800 años3.
    Chalinolobus tuberculatus, de la familia de murciélagos Vespertilionoidae, está cercanamente relacionada con sus congeneres australianos y probablemente hizo un cruce trans-Tasmania hace menos de 2 Ma4. Las otras 2 especies recientes de murciélagos, Mystacina tuberculata y Mystacina robusta son los únicos miembros vivos de la familia Mystacinidae.
    Mystacinidae es una de las seis a siete familias extintas que formaban la superfamilia Noctolionoidea, en conjunto con las familias neotropicales Phyllostomidae, Noctilionidae, Mormoopidae, Furipteridae and Thyropteridae5.
    Noctilionoidea es la única superfamilia de murciélagos con origen en Gondwana6. Los datos guardados de los fosiles de los noctilionoides son bastantes pobres, especialmente del Paleogeno7,8, pero las reconstrucciones biogeográficas sugieren que su morfología y ecología probablemente sea de origen africano.

    A continuación, analizaremos un hallazgo realizado recientemente que otorgará algo de luz a este periodo del cual se desconocían muchas cosas sobre la morfología de los murciélagos.

    Paleontológia sistemática .

    Orden Chiroptera Blumenbach,1779.
    Suborden Yangochiropera Van den Bussche & Hoofer,2004 
    Superfamilia Noctilionoidea gris, 1821
    Familia Mystacinidae Dobson, 1875
    Vulcanops jennyworthyae gen. et sp. nov.
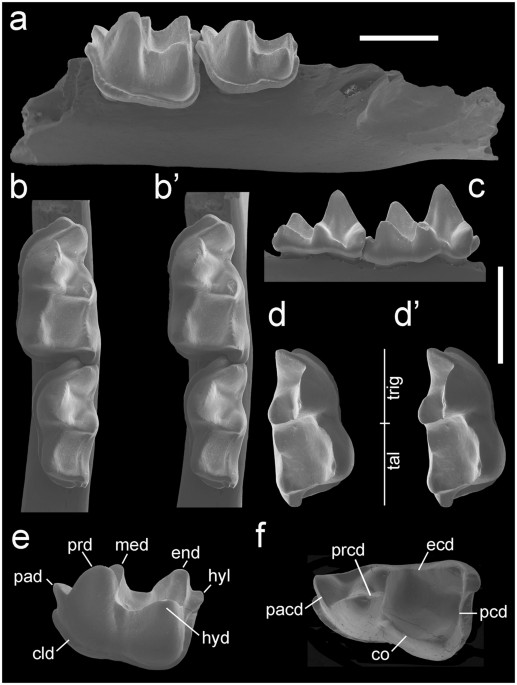
    Figure 1
    Figure 1
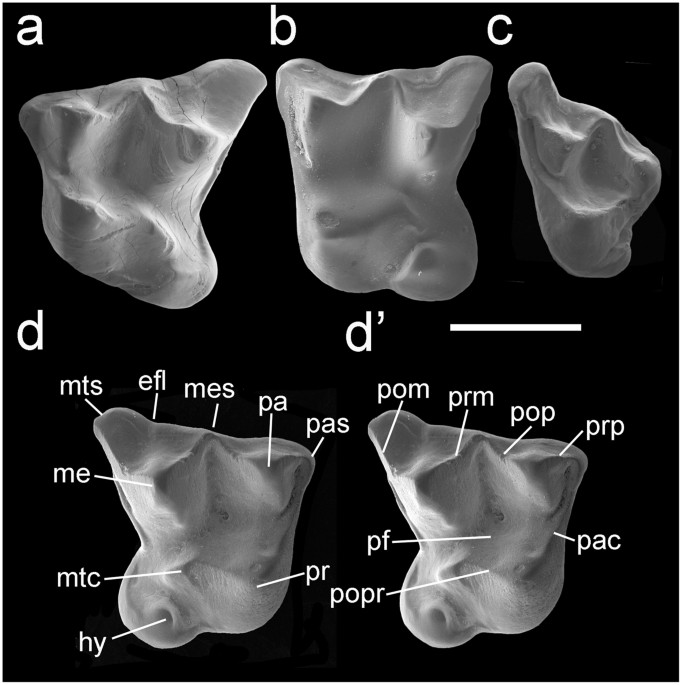
    Figure 2
    Figure 2 

    ¿En qué se diferencia?

    Se diferencia de otros mystacinidos (especies de Mystacina y Icarops) en exhibir los siguientes rasgos: m1-2 paracono bucalmente desplazado y no alineado con el metaconoide y entocoide ademas el talonoide es considerablemente más ancho que el trigonoide; m1-3 cristid obliqua está curvado en vez de estar recto, con una inflexión cerca del trigonoide, que hace contacto en este en vez de en el punto medio entre el protoconoide y el metaconoide; m1-3 solo hypoflexido superficial; m3 más reducido en longitud y ancho; M1-2 con hipocono presente parastyle cónico; M3 largo con ángulos amplios entre ectoloph cristae.

    Masa corporal.

    Usando las ecuaciones de Gunnel et. al 9.  y las representaciones del área del primer molar superior, del área del primer molar inferior y el diámetro del medio húmero, la masa de 8 de las 10 especies conocidas extintas y existentes del taxón mystacinido:
    † Indica taxón extincto; E, Early; L, Late; (#) , número de especies.
    Filogénia

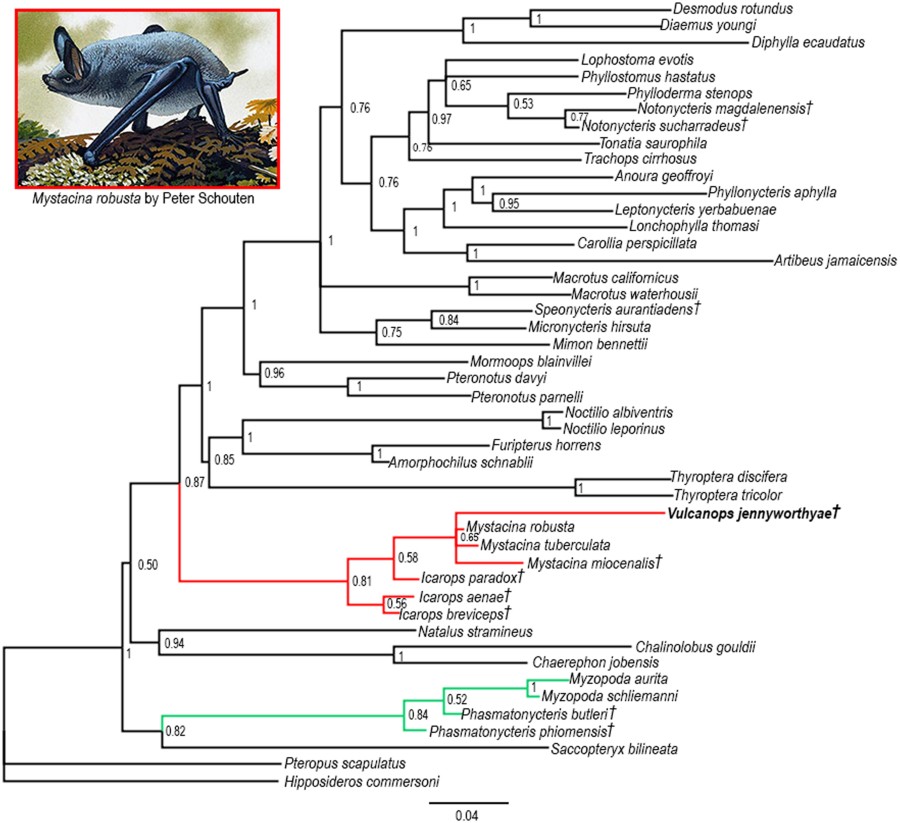
    Figure 3 
    50% del árbol de consenso de la regla de mayoría de los árboles postcombustibles del análisis bayesiano de evidencia total de 292 caracteres dentales con más de 11.1kb de datos de secuencia de ADN mitocondrial y nuclear. Los valores en los nodos representan valores de probabilidades posteriores bayesiandas mayores a 0.5. † indica un taxón extinto; verde, Myzopodidae; rojo, Mystacinidae + Vulacnops. Ilustración  poor Peter Schouten.
     
     Este análisis bayesiano coloca al murciélago Vulcanops jennyworthyae en el Mioceno de Nueva Zelanda, entre el resto de especies vivas y fosiles de mystacinidos en Australasia. Los resultados generales del análisis filogenético son ampliamente congruentes con los recientes estudios moleculares moleculares a gran escala de murciélagos10,11,12,13,14.
    Si el Vulcanops  es un mystacinido, como sugerimos aquí, eleva a cuatro el número de representantes de esta familia de murciélagos en la fauna del Mioceno St Bathans15,16. En Australia, por lo menos otras cuatro especies de mystacinidos, todos en el género Icarops, están registrados en depósitos que van desde el Oligoceno hasta el Mioceno en el sur de Australia, Queensland y el territorio norteño, con dos especies coexistiendo en algunos depositos de Queensland17 .
     
    Resultado de imagen de vulcanops jennyworthyae"Vulcanops jennyworthyae"

    Referencias:

    Artículo:  https://www.nature.com/articles/s41598-017-18403-w#Fig3

    • 1: Campbell, H. & Hutching, G. In search of ancient New Zealand. Penguin and GNS Sciences, Wellington, New Zealand, 240 pp. (2007).
    • 2: Goldberg, J., Trewick, S. A. & Paterson, A. M. Evolution of New Zealand’s terrestrial fauna: a review of molecular evidence. Phil. Trans. R. Soc. B 363, 3319–3334 (2008).
    • 3: Wilmshurst, J. M., Anderson, A. J., Higham, T. F. G. & Worthy, T. H. Dating the late prehistoric dispersal of Polynesians to New Zealand using the commensal Pacific rat. Proc. Natl. Acad. Sci. USA 105, 7676–7680 (2008).
    • 4:  O’Donnell, C. F. J. New Zealand long-tailed bat in The handbook of New Zealand mammals. 2nd edition (ed. King, C. M.) 98–109 (Oxford University Press, 2005).
    • 5 : Simmons, N. B. Order Chiroptera in Mammal species of the world: a taxonomic and geographic reference (ed. Wilson, D. E. & Reeder, D. M.) 312–529 (Smithsonian Institution Press, 2005).
    • 6:  Teeling, E. C. et al. A molecular phylogeny for bats illuminates biogeography and the fossil record. Science 307, 580–584 (2005).
    • 7:  Morgan, G. S. & Czaplewski, N. J. Evolutionary history of the Neotropical Chiroptera: the fossil record in Evolutionary history of bats: fossils, molecules and morphology (ed. Gunnell, G. F. & Simmons, N. B.) 105–161 (Cambridge University Press, 2012).
    • 8:  Gunnell, G. F., Simmons, N. B. & Seiffert, E. R. New Myzopodidae (Chiroptera) from the Late Paleogene of Egypt: Emended family diagnosis and biogeographic origins of Noctilionoidea. PLoS ONE 9(2), e86712 (2014).
    • 9:  Gunnell, G. F., Worsham, S. R., Seiffert, E. R. & Simons, E. L. Vampyravus orientalis Schlosser (Chiroptera) from the Early Oligocene of Egypt – body mass, humeral morphology and affinities. Acta Chiropt. 11, 271–278 (2009).
    • 10:  Rojas, D., Warsi, O. M. & Dávalos, L. M. Bats (Chiroptera: Noctilionoidea) challenge a recent origin of extant Neotropical diversity. Syst. Biol. 65, 432–448 (2016).
    • 11:  Meredith, R. W. et al. Impacts of the Cretaceous terrestrial revolution and KPg extinction on mammal diversification. Science 334, 521–524 (2011).
    • 12:  Amador, L. I., Moyers Arévalo, R. L., Almeida, F. C., Catalano, S. A. & Giannini, N. P. Bat systematics in the light of unconstrained analyses of a comprehensive molecular supermatrix. J. Mammal. Evol. https://doi.org/10.1007/s10914-016-9363-8 (2016).
    • 13:  Shi, J. J. & Rabosky, D. L. Speciation dynamics during the global radiation of extant bats. Evolution 69, 1528–1545 (2015).
    • 14: Phillips, M. J. Geomolecular dating and the origin of placental mammals. Syst. Biol. 65, 546–557 (2016).
    • 15:  Hand, S. J. et al. Miocene mystacinids (Chiroptera: Noctilionoidea) indicate a long history for endemic bats in New Zealand. J. Vertebr. Paleontol. 33, 1442–1448 (2013).
    • 16:  Hand, S. J. et al. Miocene fossils reveal ancient roots for New Zealand’s endemic Mystacina (Chiroptera) and its rainforest habitat. PLoS ONE 10(6), e0128871 (2015).
    • 17: Hand, S. J., Archer, M. & Godthelp, H. Australian Oligo-Miocene mystacinids (Microchiroptera): upper dentition, new taxa and divergence of New Zealand species. Geobios 38, 339–352 (2005).