Mostrando entradas con la etiqueta Mar. Mostrar todas las entradas

jueves, 30 de abril de 2020

ESTO ES EL FIN...


Bienvenidos un día más a mis entradas, está vez, se trata se un post un poco más triste, ya que se trata de mi final en este blog…🥺

Debo admitir que cuando comencé con el blog, no sabía muy bien de que hablar, veía muchos artículos interesantes y me veía abrumada al no saber bien de que temas publicar en mis posts.

Sin embargo, a medida que iba pasando el tiempo me di cuenta y aprendí a distinguir entre lo que me gustaba y lo que no… veamos un breve resumen de todas ellas.

En mi primera entrada os hablé de Yarrabubba, un asteroide de más de 70 kilómetros que impactó en Australia y el cuál es considerado uno de los más antiguos de todo el planeta.
Estaba compuesto por tantos materiales radiactivos que cuando impactó contra el planeta dejó un cráter del tamaño de la propia Australia ¡Increíble!
Además, Yarrabubba sirvió para ver como ha ido evolucionando la tierra hasta nuestros días y, creedme, ha evolucionado más de lo que creemos.


En la segunda entrada os hablé sobre cómo una cascada de más de 1 kilómetro y medio de longitud se encargó de inundar el Mar Mediterráneo.
Esta inundación se llamó la “Megainundación del Zancliense”. Además, lo más increíble es que acabó con la “Crisis de Salinidad del Messiniense” e hizo que la Cuenca del Mediterráneo se secara casi por completo y dejase una laguna enorme de sal.


Y por último, en mi tercera y última entrada os expliqué que ocurrió para que la población del norte de La India se extendiese por la erupción de un volcán llamado Toba hace más de 74.000 millones de años.
Os conté que se encontraros restos líticos en la localidad de Dhaba, los cuales nos proporcionaban una secuencia más o menos arqueológica detallada.
Me resultó curioso ver que se encontraron tres excavaciones diferentes con distintos componentes cada una.
Y por último decir que estas secuencias encontradas en Dhaba consolidaron las pruebas de que las tecnología en “industrias” estaban ya presentes en La India antes de la erupción.


 Y ahora…¿Por qué estos temas?

Pues bien, como dije antes, al comienzo de este blog, no sabía muy bien como enfocar mis entradas y hacia que tema inclinarme.
 Pero después de investigar y leer varios artículos, me di cuenta que lo que más miraba eran artículos de procesos que han dado lugar al planeta tal y como lo conocemos hoy nosotros.
Desde siempre me ha gustado viajar y cuando viajo, me gusta investigar los sitios a los que voy y me gusta curiosear si hay sitios geográficos importantes en esos lugares.
Por eso elegí este tema, me gusta ver cómo la Tierra ha evolucionado por diversos motivos y que haya llegado a estar así, como la vemos nosotros.

Espero que os haya gustado mucho mi paso por este blog, para mí ha sido un enorme placer participar.
¡Hasta siempre amigos!❤️


domingo, 23 de febrero de 2020

CASCADA DE KILÓMETRO Y MEDIO QUE INUNDÓ EL MEDITERRÁNEO


Bienvenidos un día más a mis entradas, en las que hablaremos sobre todo de procesos que han provocado que la Tierra haya evolucionado hasta la que conocemos hoy en día.
En mi anterior entrada hablé un poco de Yarrabubba y acerca de su impacto con la que hoy en día es nuestra Australia.
Hoy hablaremos un poquito de cómo una cascada de más de un kilómetro se encargo de inundar el Mar Mediterráneo y las consecuencias que eso tuvo... ¡Dentro entrada!
Hace aproximadamente 5,3 millones de años, una gran masa de agua en forma de cascada de 1-1,5 km de longitud llenó el Mar Mediterráneo (que en ese momento estaba casi seco) en menos de dos años. 
mapa de isobaras con el relieve del fondo del Mar De Alborán. La línea naranja es el recorrido que
recorrieron los flujos de agua para esquivar el edificio volcánico.


Sin embargo, ahora se han encontrado nuevos datos acerca de la “megainundación del Zancliense” (así es como la han decidido "bautizar" los científicos).


Estamos ante un cuerpo de más  35 kilómetros que se acumuló durante la inundación junto a un volcán submarino (según un estudio publicado por la revista “Earth-Sciencie Reviews”).

Esta brutal inundación acabó con la “Crisis de Salinidad del Messiniense”. Hace unos 6 millones de años (aproximadamente) ,la masa se interpuso en lo que hoy sabemos que es el Océano Atlántico y el Mar Mediterráneo e hizo que se juntases por la zona de Gibraltar ( más o menos formando una superficie de tierra más amplia de la que había incicialmente).

perfil sísmico que muestra la ubicación y el espesor de los posibles sedimentos
originados por la megainundación hallados en el fondo del Mar de Alborán.

Esto provocó que la cuenca del Mediterráneo se secara casi por completo y se convirtiese en una gran laguna salina.
Es casi como si nosotros hacemos evaporar hoy mismo todo el agua del Mar Cantábrico ( por ejemplo), se quedaría una laguna de sal gigantesca.


 Como consecuencia, el agua bajó aproximadamente 2.400 metros, pero ese nivel se recuperó un millón de años más tarde cuando el agua en cantidades desmesuradas entró por el estrecho e inundó en primer lugar la cuenca occidental y luego la oriental a través de Sicilia.

«Los depósitos sedimentarios que hemos identificado son compatibles con esa gran inundación. Se trata de un cuerpo sedimentario alargado que se acumuló a sotavento de la inundación gracias a la protección que ejerció el edificio volcánico ante la fuerza del flujo de agua proveniente del Atlántico», explica Daniel García-Castellanos, investigador del Instituto de Ciencias de la Tierra Jaume Almera del CSIC (ICTJA-CSIC).

Después de años de investigación, los científicos concluyeron que esta acumulación de sedimentos tenía un grosor máximo de 163 metros, con  una anchura de 35 kilómetros y una amplitud de 7 kilómetros.

Por tanto, esta identificación de las dimensiones  ha sido posible gracias a unas imágenes obtenidas mediante la reflexión de ondas sísmicas en el fondo del Mar de Alborán.
Los sedimentos están dispuestos en paralelo a un canal erosivo identificado en 2009.

Este canal erosivo, de unos 390 km de longitud, se extendía desde el Golfo de Cádiz hasta la Cuenca de Argelia, pasando por Gibraltar. 
Además, se cree que fue excavado por la entrada masiva de agua que os he explicado que entró por en estrecho y que inundó en primer lugar la cuenca occidental y tiempo más tarde la oriental.

 Finalmente, al entrar en la cuenca de Alborán, el canal se dividió en dos para no "chocarse" con todos los agentes geográficos que había en su recorrido.

Por tanto, los sedimentos encontrados, nos demuestran que la inundación fue real y tan grande como se podía sospechar.


En conclusión, considero muy importante investigar sobre estos acontecimientos que se van descubriendo poco a poco para poder entender cómo La Tierra ha llegado a ser lo que conocemos hoy en día. Además de que, tenemos todos los medios para poder indagar más en todas las noticias que van saliendo, pero de todas maneras, ya me encargo yo de informaros a todos de estas novedades.


¡Y...con esto acabaríamos con la segunda entrada!👋🏼😊


REFERENCIAS

Revista: "Earth-Science Reviews"


Abril and Periáñez, 2016

J.M. Abril, R. Periáñez
Revisiting the time scale and size of the Zanclean flood of the Mediterranean (5.33Ma) from CFD simulations
Mar. Geol., 382 (2016), pp. 242-256,
Alho et al., 2010

P. Alho, V.R. Baker, L.N. Smith
Paleohydraulic reconstruction of the largest Glacial Lake Missoula draining(s)
Quat. Sci. Rev., 29 (2010), pp. 3067-3078, 
Bache et al., 2009

F. Bache, J.L. Olivet, C. Gorini, M. Rabineau, J. Baztan, D. Aslanian, J.P.Suc
Messinian erosional and salinity crises: view from the Provence Basin (Gulf of Lions, Western Mediterranean)
Earth Planet. Sci. Lett., 286 (2009), pp. 139-157
Bache et al., 2015

F. Bache, J. Gargani, J.-P. Suc, C. Gorini, M. Rabineau, S.-M. Popescu, E.Leroux, D.D. Couto, G. Jouannic, J.-L. Rubino, J.-L. Olivet, G. Clauzon, A.T. Dos Reis, D. Aslanian
Messinian evaporite deposition during sea level rise in the Gulf of Lions (Western Mediterranean)
Mar. Pet. Geol., 66 (2015), pp. 262-277


lunes, 6 de mayo de 2019

Hasta siempre, compañero

Si la saga de Los Vengadores debía a llegar a su fin tristemente mis entradas llenas de microscópicos amigos también debían hacerlo. Sé que es duro, pero ha llegado la hora de decir un micro adiós a mi aportación marina a este blog...
Aún así, me gustaría hacer una pequeña inmersión para recordar a las estrellas de mis entradas que tanto se esmeran por ayudarnos en gran cantidad de aspectos en nuestra investigación del planeta.

Recordemos entonces que nuestra primera parada fue el Mar Negro, para ser más exactos el delta del Danubio. Allí nos encontramos con los foraminíferos y no pudimos evitar sentir curiosidad y preguntarnos... pero... ¿qué narices hacen los foraminíferos? Y descubrimos que estos pequeños seres vivos de concha de carbonato cálcico aportan ambientes de hipoxia y eutrofización y que son preciosos a microscopio. 

Siguiendo el viaje nos fuimos hasta el Atlántico Norte y sus diversas zonas. Era obvio que podíamos ver en esta parada porque... y en aguas frías, las diatomeas. Estas algas unicelulares amantes de bajas temperaturas llegaron dispuestas a demostrarnos su relación con la banquisa y la temperatura de la superficie marina, y también a enamorarnos con sus preciosas formas.

Y la última estación a la que nos llevó esta aventura fue Japón, donde pudimos apreciar la helada relación entre el mar de Japón y los cocolitóforos. Vimos como los anfitriones microscópicos estaban afectados por los cambios glacioeustáticos y la corriente de Tsushima y como, a su vez, estos cocolitóforos variaban en los diferentes estadíos de los MIS. Y por si eso no era suficiente, se ganaron nuestros corazones con sus perfectas formas circulares.


Viéndolo así es un viaje variado con tres diferentes protagonistas que nos relatan su propia historia, pero estos pequeños personajes no son independientes y nuestro recorrido no ha sido aleatorio y sin sentido. Todo esto nos ha hecho (espero) aprender sobre como nuestros actos afectan al planeta que habitamos y a todos los seres vivos que también se hallan aquí. Tenemos que dejar de ser egoístas y aprender a ver como nuestras decisiones traen consecuencias incluso a seres tan pequeños como los son los foraminíferos, las diatomeas o los cocolitóforos. Sólo tenemos una Tierra y si no aprendemos a ver la realidad que se avecina llegará un punto donde no podremos dar marcha atrás. Sí, todos los artículos tratados en este tiempo que he ido publicando las entradas estaban enfocados a aprender del pasado con fósiles y muestras pero este pasado nos ayuda para ver el futuro, que ahora mismo se nos augura negro.

Cortando un poco la seriedad, comienzo a despedirme de verdad (sin matar a nadie, tranquilos, no soy Thanos) diciendo que ha sido sorprendentemente entretenido tomar parte en el blog pero, a la vez, duro comprobar que incluso realizar entradas tan simples requiere horas (muchas horas) de esfuerzo y análisis de artículos. Espero que mi aportación haya resultado interesante y que los lectores hayan conseguido aprender todo lo que he buscado mostrar.

Por si no nos volvemos a ver: buenos días, buenas tardes y buenas noches.


lunes, 30 de abril de 2018

Y el culpable es...


En algunas excavaciones los restos fósiles pueden contener marcas que indican que el animal del que proceden no murió por causas naturales. En esta entrada descubriremos cómo a partir de esas marcar podemos identificar el o los depredadores de la víctima en cuestión.


Nos centraremos en un caso bastante reciente en el que las víctimas son Sphaerechinus granularis, un erizo de mar bastante común en el Mediterráneo. A la hora de identificar a la especie culpable, se ha de seguir un orden.

Sphaerechinus granularis camuflándose.

1.
Recogida de las pruebas: se recogieron muestras de equinoideos en las costas norte y occidental de la isla de Giglio, que se sitúa cerca de la costa occidental de Italia al norte del mar Tirreno (ver mapa debajo). En esta isla se pueden encontrar diversos hábitats.


Después se procedió al secado de las muestras y a su medición. También se tomaron fotos y se anotaron características tafonómicas como la presencia (o ausencia) de tejidos blandos, rotura de espinas u otro tipo de partes, abrasión, etc.

2. Clasificación de las pruebas: se recogieron 24 muestras, de las que 3 no mostraban ningún daño, 11 presentaban perforaciones características de gasterópodos cásidos y 10 tenían evidencias de depredación durófaga.

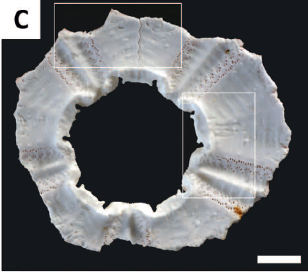
3. Análisis de las pruebas: las 10 que presentaban signos de depredación tenían diversos tipos de daño: orificios en el lado aboral (A), reducidos a la mitad del tamaño original (B) y restos pertenecientes a la zona alrededor de la membrana peristomial (C). Se deduce que el daño siempre se produce, por tanto, desde la parte contraria a la boca del equinodermo.


En el interior a veces se podían encontrar arañazos y marcas producidas por dientes (D, E), especialmente cerca de las heridas. Algunas muestras también presentaban algunas espinas arrancadas (F).


Las muestras más recientes estaban cubiertas de espinas y podían llegar a presentar restos de las partes blandas (órganos). Cuanto más tiempo hubieran estado en el fondo marino, mayor era el grado de incrustación de microorganismos (la muestra de la imagen B es más reciente que la de la imagen I).


4. Sospechosos: diversos organismos se alimentan de Sphaerechinus granularis. Los crustáceos usan sus pinzas para romper a su presa; los gasterópodos cásidos usan ácido sulfúrico para penetrar al interior; los asteroideos se comen a su presa y luego regurgitan los restos, o digieren las partes blandas con estómagos extensibles; algunos peces usan diversos métodos para romper a su presa; algunas especies de pájaros picotean dentro del organismo o sueltan al equinoideo sobre una superficie dura para romperlos, y las nutrias marinas usan piedras para romper al erizo de mar.

5. Identificación del culpable: el tipo de rotura hace pensar que el culpable pertenece a los peces óseos. Estos peces muerden primero las espinas y después ensanchan el agujero que se genera. Solo unos pocos peces son depredadores de Sphaerechinus granularis, ya sea porque ingieren individuos pequeños enteros o muerden y rompen al erizo.

De los organismos que se alimentan de este erizo de mar, solo los besugos alcanzan tamaños que les permiten romper de esa forma a Sphaerechinus granularis. Los más probables son Diplodus sargus y Diplodus vulgaris, ambos se pueden encontrar en las costas de Giglio. Las marcas de dientes encontradas en las muestras se ajustaban a las dentaduras de ambas especies.

En la imagen de la izquierda se puede observar a Diplodus sargus en el centro y Diplodus vulgaris alrededor.

Pero no siempre va a ser tan sencillo. Si vamos a realizar este mismo proceso pero con un fósil, nos encontraremos con algunos problemas extra. Para empezar, la preservación de marcas de depredación como las analizadas depende de varios factores, como la extensión y tipo de daño, el grado de incrustación de microorganismos (facilitan la conservación de las marcas) o la naturaleza del sustrato en el que se deposita el equinodermo. Hay un periodo crítico para la preservación de estas marcas: el proceso de incrustación y estabilización del resto se debe producir antes de que se degrade el tejido conectivo,si no se puede fragmentar y descomponer.

La potencial de preservación (es decir, la facilidad con la que se pueden conservar restos) depende de factores como la energía de las olas, la tasa de sedimentación y la ocurrencia de procesos atmosféricos puntuales (tormentas, por ejemplo). El caso en que se daría la mayor dificultad sería en aguas poco profundas que sufran mucha agitación y haya mucha abrasión.

En resumen, el estudio de la depredación nos puede permitir identificar organismos e incluso establecer relaciones entre ellos, lo cual es algo muy útil para establecer relaciones del pasado. Pero como hemos podido ver, es bastante complicado encontrar restos que tengan marcas, ya que no solo depende de que el resto las contenga sino también del ambiente donde se ha depositado el resto.


GLOSARIO:
.Cassidae: o cásidos, son moluscos gasterópodos con concha.
·Durofagia: comportamiento animal consistente en consumir organismos que tienen una concha dura o un exoesqueleto.
·Lado aboral: en asimetría radial, es el lado opuesto a la boca.
·Membrana peristomial: se encuentra en el lado oral y en su centro se encuentra la boca del equinidermo.
·Asteroideos: son una clase de organismos dentro de los equinodermos. Se conocen como estrellas de mar.
·Sparidae: familia de peces perciformes (con forma de perca), es decir, comprimidos lateralmente, aleta dorsal con espinas y aleta caudal escotada.

PARA SABER MÁS:
-https://es.wikipedia.org/wiki/Echinoidea
-https://www.ecured.cu/Asimetr%C3%ADa_radial
-https://practicasina2013.weebly.com/clase-echinoidea.html

REFERENCIAS:
-Diedrich Sievers & James H. Nebelsick. 2018. Fish predation on a Mediterranean echinoid: identification and preservation potential. Palaios, 33 (2): 47-54.

jueves, 14 de mayo de 2015

Se encuentra ''fósil viviente'' de un antiguo tiburón prehistórico de 80 millones de años.


  • INTRODUCCIÓN:
En este último mes de Enero nos ha llegado la noticia de que unos pescadores en Australia arrastraron un tiburón un tanto peculiar, una especie que no se parecía a ninguna otra con la que estuviesen familiarizados, después de una investigación se supo que dicho tiburón data de hace 80 millones de años y se considera como un ‘’fósil viviente’’, este tiburón es el llamado tiburón anguila.

Este tiburón fue descrito por primera vez por el alemán Ludwig Döderlein en una visita a Japón en 1879, y se le describió como el tiburón anguila con el nombre de Chlamydoselachus anguineus. Se trata de una especie rara perteneciente a la clase de los peces cartilaginosos (Chondrichthyes) y dentro de estos a los hexanquiformes que incluye a los tiburones actuales más primitivos. 
Chlamydoselachus anguineus 
  • DISTRIBUCIÓN Y HÁBITAT:
Este tiburón suele vivir en zonas profundas de hasta 1500 metros, aunque se han encontrado en zonas menos profundas en la plataforma continental exterior y la parte superior del talud continental (entre 50 y 200 metros). Se cree que realiza movimientos nictemerales, es decir, durante la noche se aproxima a la superficie para alimentarse y durante el día permanece en el mar profundo. 
Cuenta con una distribución amplia aunque discontinua, puede habitar tanto en aguas frías y templadas del Pacífico y el Atlántico, hace poco se descubrió una población de Chlamydoselachus en las aguas del sur del continente africano (Angola, Namibia y Suráfrica) que posteriormente se supo que se trataba de otra especie diferente de la familia Chlamydoselachidae con únicamente 2 especies vivas; el tiburón anguila y estos individuos de África (el tiburón anguila sudafricano, (Chlamydoselachus africana)

Distribución global del Chlamydoselachus anguineus 
  • DESCRIPCIÓN:
La paleontología nos proporciona gran información sobre este espécimen, y nos indica que este tiburón se ha mantenido sin cambios durante los últimos 80 millones de años; Presenta 6 pares de aberturas branquiales grandes que rodean la cabeza ,falta de la segunda aleta dorsal, un cuerpo alargado y sinuoso como el de una anguila, su cabeza de saurio, dotada de una enorme boca terminal (situada en el extremo de la cabeza, no en la zona ventral como los demás tiburones) y hasta 300 afilados dientes en forma de tridente dispuestos en 25-27 filas funcionales transversas con tres cúspides altas, estrechas y afiladas, más una cúspide menor a cada lado de la central. Por suerte sabemos que no pasa de los 2 metros de longitud y que su dieta se basa básicamente en cefalópodos y peces y tiburones de tamaño mediano o pequeño de aguas profundas. 

Boca del tiburón anguila con sus más de 300 afilados dientes dispuestos en filas trasversas.
  • DISCUSIÓN:
¿Por qué  se le denomina un fósil viviente? según la teoría de la evolución de Darwin este pez debería haber tenido un número de características mucho menor de lo que tiene actualmente o haber desarrollado en toda su historia nuevas adaptaciones y cambios en su fenotipo a lo largo de millones de años o incluso podría haberse extinguido. Sin embargo, su terrorífica apariencia es la misma ahora como lo fue en el primer día.
  • CONCLUSIÓN:

Como conclusión podemos decir que las especies no tienen por qué cambiar con el paso del tiempo si las características del ambiente en el que viven se mantienen. Esto es lo que le ha ocurrido a nuestro fósil viviente del Cretácico Superior (aproximadamente 95 millones de años) el cual ya está optimizado para ese medio ambiente y no ha sufrido cambios en el genoma lo cual le ha hecho permanecer como esta toda su vida. Sin embargo, el propio tiburón anguila es una especie relativamente reciente, con los primeros dientes fósiles conocidos pertenecientes a esta especie que datan de principios del Pleistoceno. Como esta especie existen otras tantas que han ido evolucionando a lo largo del tiempo manteniendo invariable sus características como el cocodrilo o celacanto..
  • REFERENCIAS:
 Este artículo ha sido sacado principalmente de: http://newsrescue.com/a-80-million-year-old-rare-frilled-shark-fossil-found-in-australia-speaks-against-darwinism/#axzz3a2ZKKu6t

A demás he sacado información de:
  • VIDEO: se muestra el tiburón anguila nadando en el sur de Tokyo.


lunes, 9 de marzo de 2015

Los Foraminíferos de Lyell. Todo esto antes era mar.


Preámbulo:

Los foraminíferos (Figura 1) son un tipo de organismos unicelulares pertenecientes al reino protista o protoctista, que surgió en el Cámbrico y que ha logrado mantenerse a lo largo de la historia hasta nuestros días, poblando los mares de todo el globo, a diferentes latitudes y profundidades.

Aún siendo unicelulares, estos organismos poseen un esqueleto mineral: La concha, que envuelve únicamente parte del protoplasma que constituye la célula del animal, ya que dicho protoplasma se extiende hasta el exterior de la concha a través de una o varias aperturas en la superficie de la misma, constituyendo los pseudópodos, que el organismo utiliza para el desplazamiento y la alimentación.

Figura 1. Esquema de la anatomía externa de un Foraminífero.

La ya mencionada concha es la parte más importante del animal, tanto para su clasificación como por sus aplicaciones paleontológicas, ya que es el único componente del mismo que se muestra susceptible de fosilizar. A su vez, la concha puede estar formada por una o varias cámaras, conectadas entre sí mediante una serie de poros llamada forámenes, lo que da nombre al grupo.

Aunque hay múltiples divisiones posibles dentro de los foraminíferos, en nuestro caso vamos a centrarnos en dos tipos en concreto, diferenciados por el material de la concha: Los Aglutinados, que forman su cobertura externa a partir de una argamasa de distintos materiales aglutinados y los Calcáreos, cuya concha está constituida únicamente por el tipo de material homónimo.

La razón por la cual nos interesan estos dos tipos de foraminíferos radica en el artículo base de esta entrada: Strachan, Kate L., Hill Trevor, R., Finch, Jemma M. & Barnett, Robert L. 2015. Vertical Zonation of Foraminifera Assemblages in Galpins Salt Marsh, South Africa.

Introducción:

Los geólogos de hoy en día estamos más que familiarizados con el principio de uniformismo y actualismo, que postuló James Hutton en 1795 y promovió Charles Lyell treinta años después, de tal modo que en 1840 se impuso sobre las antiguas corrientes catastrofistas que imperaban hasta entonces. Con ello se inició el desarrollo de la geología moderna (Molina, 2002)

Pero claro, si “el presente es la clave del pasado” habrá que conocer cómo funciona el primero de ambos. Eso es precisamente de lo que se encarga nuestro artículo en cuestión. 

El estudio consiste en tomar muestras del terreno de la marisma Galpins, Sudáfrica, para poder observar la distribución de las especies de plantas y foraminíferos que habiten la zona y así, poder buscar patrones de distribución vertical que obedezcan a la división en zona alta, media y baja de la marisma (incluyendo la llanura mareal)
 
En caso afirmativo, podría afirmarse que las distintas especies tienen preferencia por determinadas zonas, que pueden variar según el nivel del mar en cada momento. De este modo, en base a las poblaciones encontradas en cada nivel de la marisma, podría estimarse la altura del nivel del mar para esa zona y tiempo determinados.

Ahora bien, hay que lidiar con el problema de que, al extraer las muestras, se obtienen tanto ejemplares vivos como muertos. Algunos autores afirman que es mejor desechar los ejemplares muertos, debido a que no responderán a los cambios producidos tras su muerte (Murray, 1971) Sin embargo, también puede argumentarse que los ejemplares vivos pueden alterar los resultados debido a que dependen de los cambios en las condiciones ambientales (sobre todo en climas templados, con cambios estacionales) Para solucionar este problema, en este estudio se siguió el ejemplo de Scott & Medioli (1980) y se tuvieron en cuenta tanto los ejemplares vivos como los muertos, aunque a la hora de analizar los datos, se analizaron también por separado los muertos y se estudió si había diferencias significativas.

La Zona de Estudio:

La marisma Galpins está situada en el estuario del río Kariega (figura 2) que se adentra hasta 18 kilómetros en el continente. Es una zona de dominio marino, ya que el aporte de agua fresca es muy escaso, y está rodeado de marismas, de entre las que destacan tres: Taylors, Grants y Galpins. De entre ellas, Galpins es la más profunda y extensa, lo que unido a otros factores como su aislamiento del cauce fluvial (debido a la sinuosidad del río y a su estrecha conexión con la marisma) la convierte en un buen punto de este tipo de estudios, ya que está a salvo de los procesos erosivos fluviales (Strachan et al., 2013)

Figura 2. Situación geográfica de la Marisma Galpins.

Métodos de muestreo, procesado e identificación:

Para el estudio, se recogieron 39 muestras de terreno con foraminíferos, procedentes de tres cortes trasversales (figura 3) a lo largo de la marisma Galpins. Las muestras fueron tomadas en intervalos de aproximadamente 5 cm cada una. Cada uno de los cortes media 26 m, 32 m y 7 m, respectivamente, y las muestras de cada uno de ellos fueron combinadas para elaborar unos Datos de Entrenamiento. 

Figura 3. Situación de los 3 cortes realizados en la marisma.

A la hora de tomar las muestras, se usó un Teodolito cuya altura estaba perfectamente calculada, de modo que se registraron la altura a la que se tomó cada muestra sobre el elipsoide, para relacionarla posteriormente con las tablas de marea naval de Sudáfrica (Tabla 1) 

De cada una de las muestras se sustrajo una porción de 4 cm3, siendo cada submuestra sumergida en una solución diluida con un 20% de Rosa de Bengala, para diferenciar los foraminíferos vivos de los muertos (El Rosa de Bengala colorea las proteínas del protoplasma) Posteriormente, se lavaron y se pasaron a través de filtros de entre 63 y 500 µm, para eliminar la materia orgánica y el detrito. La fracción de material de entre 63 y 500 µm  se dividió en ocho Alícutoas para estudiarla directamente, mientras que el material >500 µm se estudió bajo microscopio en busca de foraminíferos de mayor tamaño. 

Posteriormente, se analizaron taxononómicamente las muestras, y a nivel de género sólo pudieron identificarse Quinqueloculina y Fissurina.

Tabla 1. Niveles de marea en la zona de estudio.

A su vez, también se analizó la cobertura vegetal a lo largo de los cortes de muestreo, y la abundancia de cada una de las especies se midió con el método de Blaun-blanquet (Figura 4) 

Análisis estadístico: 

La abundancia relativa de los foraminíferos se representó como porcentaje respecto a la altura en base al Datum de carta naval (m sobre CD) dando como resultado tres zonas diferentes (K1, K2 y K3) Los datos de entrenamiento resultantes al compilar los tres cortes estaban formados por 37 muestras, ya que dos de las 39 iniciales no contenían foraminíferos. Se compilaron datos de entrenamiento tanto del total de los ejemplares como únicamente de los muertos, para poder determinar qué modelo resultaba más útil para la reconstrucción paleoambiental.


La relación entre la altura y las especies de plantas se estimó mediante un modelo de regresión ponderado en C2, con el fin de determinar los rangos óptimos y de tolerancia para cada especie. Por su parte, la relación de los foraminíferos con la altura fue estimada mediante un modelo de ordenación y regresión con los porcentajes totales. Dado que los datos de entrenamiento de los foraminíferos (tanto muertos como totales) presentaban unos valores de desviación estándar de 1.4, se realizó un modelo de mínimos cuadrados, como se recomienda para valores de desviación < 2.

Resultados: 

Vegetación

La marisma Galpins muestra una diferenciación entre marismas altas y bajas, basadas en la cobertura vegetal de la superficie. Las zonas generales (marisma alta, marisma media y llanuras mareales de lodo) siguen la nomenclatura de Lubke & de Moor (1998) La mayor parte de la marisma puede ser descrita como marisma alta, siendo más densa en vegetación que las zonas más bajas. 


Figura 4. Distribución de las especies vegetales.

La especie que predomina en la marisma es Sarcocornia perennis (marisma alta) Se trata de la especie más abundante y tiene un rango de tolerancia modelo de 1.2 – 1.8 m por sobre el CD. Las cotas más altas de la zona intermareal están ocupadas por Carpobrotus edulis (L.) L. Bolus y Sporobolus virginicus (L.) Kunth, que generalmente suelen estar asociadas con la zona de marisma alta. Estas especies tienen un rango modelo de 1.7 – 2.4 m sobre el CD. La zona de marisma alta está dominada por Bassia diffusa (Thunb.) Kuntze, Sarcocornia perennis y Limonium linifolium (L.f.) Kuntze, con menor presencia de Triglochin striata Ruiz & Pav. La zona más baja de la marisma contiene fundamentalmente Spartina maritima y Zostera capensis Zetch. Ambas se extienden hasta las llanuras de lodo.

Foraminíferos

A lo largo de la marisma Galpins, se describieron 13 taxones diferentes de foraminíferos, de los cuales 7 eran formas aglutinadas (Figura 5) Un análisis Clúster realizado usando el programa CONISS identificó una zona de Marisma alta (K1) dominada por Jadammina macrescens y un menor contenido en Trochammina inflata. Milammina fusca también tenía cierta representación, pero muy poca en comparación. La zona K1 se extendía entre los 1.95 m y los 2.05 m sobre el CD, siendo un nivel muy estrecho con un conjunto de foraminíferos muy específico.

Figura 5. Distribución de las especies de Foraminíferos.

Tres especies dominaban la zona K2, que se extendía entre 1.4 – 1.95 m sobre el CD. La abundancia de J. macrecens y T. inflata disminuía con la altura, al contrario que la de M. fusca. En esta zona también aparecía Torchammina ochracea, que únicamente aparecía entre 1.37 – 1.7 m sobre el CD, por lo que puede suponer un buen indicador del nivel del mar. En esta zona, las especies calcáreas eran raras, aunque había una pequeña representación de Ammonia, Fissurina, y Quinqueloculina.

La zona K3 (la más baja) fue delimitada entre los 1.34 y 1.1 m sobre el CD, y presentaba más cantidad de especies calcáreas, en especial Quinqueloculina, y mucho menos porcentaje de J. macrescens y T. inflata. Esta zona estaba dominada por M. fusca.

Los resultados para los ejemplares muertos presentan una semejanza muy estrecha con los dados por los vivos, lo cual sugiere que los foraminíferos fósiles reflejan de forma muy fiable el ambiente en el cual fueron depositados.

Relación de los foraminíferos con la altura:


La distribución vertical de los foraminíferos denota que las especies responden, al menos en parte, a la elevación. Para estudiar mejor esta relación, se elaboraron modelos de regresión y se estimó mediante el método de mínimos cuadrados (PLS) la altura de dos series de datos de entrenamiento (para ejemplares muertos y para el total) Los resultados demostraron la eficacia del método y la posibilidad de estimar la altura mediante las especies de foraminíferos encontradas.

En ambos casos, los modelos PLS con dos componentes obtuvieron los mejores resultados (Tabla 2) usando como criterio el error de media cuadrática (RMSEP) y el coeficiente de determinación r2. 

Tabla 2. Resultados de los modelos estadísticos.

Si se representa para ambos casos un gráfico que enfrente la altura estimada por el modelo con la observada realmente (Figura 6) se puede apreciar que los dos modelos son igualmente fiables (ambos poseen un coeficiente de determinación de 0,64, que implica una fuerte relación) Del mismo modo, ambos modelos pueden estimar la altura con un margen de error de 17 cm (RMSEP = 0.17) y si representamos los residuales de cada medida en ambos modelos, podemos observar que aquel que usa los ejemplares muertos tiene un sesgo, pues tiende a estimar mejor la altura de los ejemplares más altos, mientras que el modelo del total de ejemplares estima la elevación de la muestra de forma igualitaria.

Figura 6. Comparación entre las elevaciones estimadas y las observadas, tanto para ejemplares muertos (A, B) como para el total de muestras (C, D)

Conclusiones:


Efectivamente, los foraminíferos presentan una evidente zonación vertical en las marismas de Sudáfrica, lo cual da pie a poder estimar el nivel del mar en tiempos pasados a partir del registro fósil de estos organismos. Sin embargo, queda una última pregunta, ¿Es esta tendencia extensible a todo el globo? 

Para responderla, pueden compararse los resultados de otros estudios similares, ya sean también en Sudáfrica (Franceschini et al., 2005) o en otras partes del mundo, como en el hemisferio norte (Scott & Medioli, 1978; Williams, 1989; Patterson, 1990; Gehrels, 1994; Jennings et al., 1995; Horton, 1999; Horton & Edwards, 2003)

El resultado de la comparación es que, aunque es posible que difiera ligeramente el rango de distribución de determinadas especies entre algunos estudios, todos apuntan a la misma conclusión: Los foraminíferos son una forma fiable de medir el nivel del mar, tanto actualmente como a lo largo de la historia de la Tierra.

Visto lo visto, queda en estado manifiesto que la paleontología no sirve únicamente para describir qué tipo de organismos poblaban la Tierra hace millones de años ni cómo ha evolucionado una familia en concreto, sino que puede usarse también como llave para entender el medio ambiente pasado y presente. 

Y es que como ya decíamos al principio (y como se viene diciendo desde hace doscientos años) “el presente es la clave del pasado” y la mejor clave posible para entender el pasado es usar la que el mismo pasado nos ha dejado: El registro fósil.

Referencias:


Franceschini, G., McMillan, I. K., and Compton, J. S., 2005, Foraminifera of Langebaan Lagoon salt marsh and their application to the interpretation of late Pleistocene depositional environments at Monwabisi, False Bay coast, South Africa: South African Journal of Geology, v. 108, p. 285–296.

Gehrels, W. R., 1994, Determining relative sea-level change from saltmarsh foraminifera and plant zones on the coast of Maine, USA: Journal of Coastal Research, v. 10, p. 990–1009.


Horton, B. P., 1999, The contemporary distribution of intertidal foraminifera of Cowpens Marsh, Tees Estuary, UK: implications for studies of Holocene sea-level changes: Palaeogeography, Paleoclimatology, Palaeoecology Special Issue, v. 149, p. 127–149.


Horton, B. P., and Edwards, R. J., 2003, Seasonal distributions of foraminifera and their implications for sea-level studies, Cowpens Marsh, UK: Society for Sedimentary Geology, Special Publication, v. 75, p. 21–30.


Jennings, A. E., Nelson, A. R., Scott, D. B., and Aravena, J. C., 1995, Marsh foraminiferal assemblages in the Valdivia Estuary, southcentral Chile, relative to vascular plants and sea level: Journal of Coastal Research, v. 11, p. 107–123. 


E. Molina (ed.) 2002. Micropaleontología. Prensas Universitarias de Zaragoza. Colección Textos Docentes, 93, 704 pp.

 Murray, J. W., 1971, Living foraminiferids of tidal marshes: a review: Journal of Foraminiferal Research, v. 1, p. 153–161.


Patterson, R. T., 1990, Intertidal benthic foraminifera biofacies on the Fraser River delta, British Columbia: Micropaleontology, v. 36, p. 63–77.


Scott, D. B., and Medioli, F. S., 1978, Vertical zonations of marsh foraminifera as accurate indicators of former sea levels: Nature, v. 272, p. 528–531.


Scott, D. B., and Medioli, F. S., 1980, Living vs. total foraminiferal populations: their relative usefulness in paleoecology: Journal of Paleontology, v. 54, p. 814–831.


Strachan, K. L., Finch, J. M., Hill, T., and Barnett, R. L., 2013, A late Holocence sea-level curve for the east coast of South Africa: South African Journal of Science, v. 110, p. 74–82.


Strachan, Kate L., Hill Trevor, R., Finch, Jemma M. & Barnett, Robert L. 2015. Vertical Zonation of Foraminifera Assemblages in Galpins Salt Marsh, South Africa. 


Williams, H. F. L., 1989, Foraminiferal zonations on the Fraser River delta and their application to palaeoenvironmental interpretations: Palaeogeography, Palaeoclimatology, Palaeoecology, v. 73, p. 39–50.