Mostrando entradas con la etiqueta icnitas. Mostrar todas las entradas

domingo, 1 de mayo de 2016

DEJANDO HUELLA.

Artículo original: Lida Xing Martin G. Lockley, Daniel Marty,  Hendrik Klein,  Geng Yang,  Jianping Zhang,  Guangzhao Peng, Yong Ye, W. Scott Persons IV,  Xianya Yin & Ting Xu. 2016. A diverse saurischian (theropodesauropod) dominated footprint
assemblage from the Lower Cretaceous Jiaguan Formation in the
Sichuan Basin, southwestern China: A new ornithischian ichnotaxon,
pterosaur tracks and an unusualsauropod walking pattern. Cretaceous Research, 60:176-193. 

Hola de nuevo amigos! Como os habéis podido dar cuenta, mis dos entradas anteriores se han centrado en la lomoción de los dinosaurios, y en esta nueva entrada también os voy a hablar de ello. Con cada entrada intento atraeros al apasionante mundo de la icnología, y transmitiros lo asombroso que es saber qué organismo originó la huella y cómo era su forma de andar. Intento no ser pesada pero no puedo evitar dejar de hablar de ellas debido a mi gran afición. Espero que os guste esta nueva entrada, y se os haga entretenida la lectura.

Figura 1. Cuenca de Sichuan.
COMENCEMOS...
Nos adentramos en China. En concreto en la cuenca de Sichuan, conocida también con el nombre de cuenca Púrpura o Roja. Es una de las cuencas más grandes de China, forma parte de la plataforma de Yangtze,  y contiene materiales datados del Mesozoico. En su  margen meridional, donde se encuentra ubicado Shimiaoguo, y se han encontrado con un área de huellas en varios bloques caídos, pertenecientes a la formación Jiaguan (Xing et. al, 2015). 

Figura 2. Mapa que representa la provincia de Sichuan, señalando con una estrella los lugares donde se han encontrado huellas de dinosaurios.

Cada camino de huellas lo numeraron con el prefijo SMG, y fueron realizadas por terópodos, designados con la mayúscula T; D para dromeosáuridos; S para saurópodos; O para ornitópodos; P para pterosaurios (Zhen et.al 1994), (Xing et.al 2013), (Xing et.al 2015). Lo primeron que hicieron fue realizar una tabla con varias columnas donde represetaron cada uno de los bloques, el organismo que las originó (th: terópodos no voladores; Dr: dromeosaurios; Sa: saurópodos; Or; ornitópodos; Pt: pterosaurios), y la relación entre el número de huellas (TS) y el rastro dejado (TWS). 

RECOPILACIÓN DE DATOS.
Tras una intensa y dura recogida de datos, se realizaron una serie de tablas:
  • En la tabla 1, aparecen el número de huellas encontradas y de caminos realizados por cada una de las familias de dinosaurios. 
  • En la tabla 2, reflejaron una serie de medidas tomadas en ornitópodos, terópodos y dromeosaurios. Los datos están en centímetros (cm) y grados (º), excepto ML/MW que son adimensionales. En ella aparecen una serie de abreviaturas que significan lo siguiente: ML: longitud máxima; MW: anchura máxima (distancia medida desde la punta del dígito II al IV; II-IV: ángulo medido entre los dígitos II y IV; PL: longitud del ritmo del paso; SL: longitud de la zancada; PA: ángulo del paso.
  • En la tabla 3, se recogen las medidas (en cm y grados; excepto ML/MW, WAP/P´ML y WAM/M´MW son adimensionales) de los caminos realizados por saurópodos. Las abreviaturas que aparecen son las siguientes: MA: longitud máxima; MW: anchura máxima; R: rotación; PL: longitud del ritmo del paso; SL: longitud de la zancada; PA: ángulo del paso; WAP: anchura de la angulación del pes; WAM: anchura de la angulación del manus.
  • En la tabla 4, se recogen el número total de organismos que realizaron las huellas con sus respectivos porcentajes. Abreviaturas: Or: ornitópodo; Th: terópodo no volador; Bi: pájaro; Sa: saurópodo; Pt: pterosaurio.

EL PRIMER ESTUDIO: HUELLAS DE TERÓPODOS.
Comenzaron analizando las huellas de terópodos encontradas en los 8 bloques, excepto en el bloque 7 que no encontraron ninguna. Han podido identificar 31 pequeñas huellas tridáctilas cuya longitud del pes era de 7-18 cm, y las clasificaron en 7 caminos diferentes catalogadas como T1-T7, gracias a la ayuda de toda la información recopilada en la tabla 2. (Figura 3).
Figura 3.  En el bloque 1 aparecen diferentes impresiones de huellas realizadas por tres grupos diferentes de organismos: terópodos, saurópodos y ornitópodos, siendo los predominantes los terópodos.
Se pudo saber con exactitud que eran de terópodos gracias a la mejor huella conservada, que aparece en la figura 4. En esta huella se aprecia claramente como la longitud del dígito III es la más larga y los dígitos exteriores son casi iguales, el ángulo entre los dígitos II-IV es de 76º (47,56). Por otro lado, las huellas T2-L1, TI4 y T7.L1 se caracterizan por presentar una débil mesaxonomía, es decir, el grado en que el dígito III sobresale hacia delante (Lull, 1904). Gracias a ello, se supo que pertenecían a la familia Eubrontiae, y a los primeros terópodos que vivieron en el Cretácico conocidos como Jialingpus. Por otro lado, con los datos de las velocidades de estos organismos (Alexander, 1976) y las longitudes de sus pasos, es posible saber si estaba caminando, corriendo o trotando. Los resultados obtenidos fueron los siguientes: la velocidad de las huellas T1, T2, T4 y T6 fue de 3,96-6.66 km/h, y las longitud del paso de 1,54-1,75 (Leonardi, 1987), lo que implica que estaba caminando; mientras que T5 tiene un valor más alto y una mayor longitud en el paso, por lo que estaba más cerca del trote.

Figura 4. Huellas de terópodos y pterosaurios. 
Las siguientes características que tienen en común estas huellas les permitieron identificar el organismo que las originó: el dígito II aparece representado como una pequeña impresión situado más próximo al dígito III; el dígito IV es más largo que el III; y el ángulo divergente entre los dígitos III y IV es de 37º, y eran huellas didáctilas. Todo ello les sirvió para saber que se trataban de huellas realizadas por Deinonychosaurian. El icnotaxón Deinonychosaurian comprende cuatro icnogéneros Velociraptorichnus, Dromaeopodus, Dromaeosauripus y Menglopipus, que clasifican a las huellas encontradas en tres clases dependiendo de sus tamaños (Figura 5).
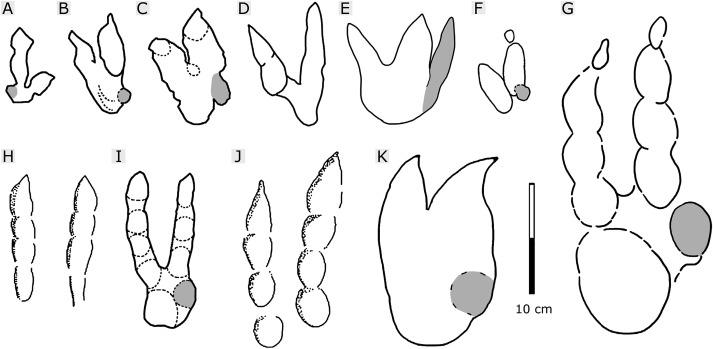
Figura 5. Conjunto de dibujos interpretativos de las distintas huellas realizadas por varios icnotaxones de dromeosaurios: 
A: Menglongipus (Xing et.al 2009); B: Velociraptorichnus from Shandong (Li et.al 2007); C: Velociraptorichnus from Emei (Xing et. al 2009); D: Velociraptorichnus from Mujiaowu (Xing et.al 2015); E: Velociraptorichnus wangi (Xing et.al 2015); F: Velociraptorichnus encontrado en SMG; G: Dromaeopodus shandongensis (Li et.al 2007); H: Dromaeosauripus jinjuensis (Kim et.al 2012); I: Dromaeosauripus yongjingensis (Xing et.al 2013); J: Dromaeosauripus hamanensis (Kim et.al 2008); K: Dromaeosauripus Jishan (Xing et.al 2013).

EL SEGUNDO ESTUDIO: HUELLAS DE SAURÓPODOS.
Como ya he mencionado anteriormente, estas huellas no fueron las únicas que encontraron. Descubrieron un camino de tres huellas muy bien conservadas bastante anchas, que nombraron como SMG-S1-S3, en los bloques 1 (figura 3), bloque 2 (figura 7) , bloque 5 (figura 8 y 9) y bloque 6 (figura 6).
Tanto las huellas SMG-S1 y SMG-S2 tenían una anchura media (WAP/P'ML) de  1.3  la  y 1.2 respectivamente. En cuanto a las impresiones del pes eran más largas que anchas; presentaban un alto grado de heteropodia; y los dígitos del I al IV disminuían de tamaño. Tras analizarlas, se dieron cuenta de que pertenecían al icnogénero Brontopodus (Lockley et.al 1995), (Lockley el.al 2002).

Figura 6. Mapa de huellas encontradas en el Bloque 6. En la imagen real de la derecha aparece un camino de huellas realizado por un dromeosaurio.

Figura 7. Dibujo lineal de un segmento del camino de huellas del Bloque 2 en el que se muestra la traza del pes bien definidos.

Figura 8. Mapa de huellas identificadas en el Bloque 5.


Figura 9.  Conjunto de huellas realizadas por saurópodos encontradas en el bloque 5. 
SMG-S3 muestra muestra un patrón de marcha inusual, debido a que solo conversan las impresiones derechas del manus, y se encuentran rotadas 21º hacia afuera desde el eje del camino de huellas. También se puede observar como el borde distal de la huella RM2 y el borde proximal de RM3 se encuentran deformadas, cuya posible causa puede ser que se haya formado posteriormente a la huella LP3. (figura 7). 
Pero de repente, se dieron cuenta de que les faltaban las impresiones izquierdas del manus. ¿Qué podía haber ocurrido? ¿Cuál ha podido ser la causa?.
Las posibles hipótesis con respecto a la ausencia de impresiones izquierdas del manus podrían ser las siguientes: Un solapamiento producido por otras huellas (Xing et.al 2013); causas litológicas; causas patológicas (McCrea et.al 2015), como una lesión o enfermedad.Se calculó la velocidad del saurópodo que originó estas huellas y se dieron cuenta de que eran las mismas que la SMG 1-2, por lo que se pudo descartar la opción del modo de andar tripedal causado por una lesión.

EL TERCER ESTUDIO: HUELLAS DE ORNITÓPODOS.
Un camino de huellas bastante abundante en todos los bloques encontrados, excepto en el bloque 6, era producido por otro organismo diferente a los anteriores. Esta vez se trataba de huellas realizadas por ornitópodos, caracterizados por impresiones tridáctilas del pes que carecen de almohadillas en las falanges, aunque a veces se encuentran divididos por unos pliegues interdigitales adquiriendo una configuración cuatripartita, con tres dígitos y una almohadilla en el talón, y con ausencia de impresión de manus. 


Figura 8. Conjunto de huellas principalmente de ornitópodos encontradas en el Bloque 4.
Figura 9. Conjunto de huellas encontradas en el Bloque 3 realizadas por ornitópodos bípedos con una huella de saurópodos superpuesta (marcada por la flecha).
Finalmente, concluyeron que estas huellas pertenecían a la icnofamilia Iguanodontopodidae (Vialov 1988), pero se encontraron con un pequeño problema:
¿A qué icnoespecie  podrían pertenecer?
Para ello, realizaron una tabla comparativa en el que analizaron cada tipo de huella y las posibles icnoespecies. Dudaban entre Carirchnium magnificum (Leonardi et.al 1984), Caririchnium leonardii (Lockley 1987), Caririchnium protohadrosaurichnos (Lee 1997), Caririchnium lotus (Xing et.al 2007), Caririchnium kyoungsookimi (Lim et.al 2012), Caririchnium  encontrado en Shimiaogou, y Ornithopodichnus masanensis (Kim et.al 2009).
Figura 10. Dibujos interpretativos de huellas realizadas por:
A: Caririchnium leonardii; B: Caririchnium protohadrosaurichnos; C: Caririchnium protohadrosaurichnos; D: Caririchnium lotus; E: Caririchnium kyoungsookimi; F: Caririchnium  encontrado en Shimiaogou; G: Ornithopodichnus masanensis.
Tras un intensivo estudio...
Comprobaron que no concordaban del todo bien las huellas encontradas con los dibujos interpretativos que se aprecian en la figura 10. Por lo tanto, tenían los suficientes argumentos para crear una nueva icnoespecie, a la que llamaron Caririchnium liucixini (Leonardi et.al 2009).


Figura 11. Imágenes tomadas de las huellas encontradas en los Bloques 7 y 8, junto a su mapa interpretativo. El Bloque 7 contiene huellas realizas por la icnoespecie Caririchnium liucixini (SMG-O9-R1-L1).

EL CUARTO ESTUDIO: HUELLAS DE PTEROSAURIOS.
Cuando pensaban que el estudio había finalizado, les quedaban aún por analizar las huellas de pterosaurios, que aparecen en las figuras 4 y 6. Decidieron que pertenecían a estos organismos por las siguientes características: la impresión plantígrada y tetradáctil del pes es estrecha; tienen un talón en forma de U; el ángulo de bifurcación entre los dígitos I y III es muy alto, de 131º; y aparecen las impresiones de tres dígitos I-III. Por lo tanto, concluyeron que pertenecen al icnogénero Paraechinus (Xing et.al 2013).

LLEGÓ LA HORA DE LA DESPEDIDA...
Y aquí finaliza mi tercera entrada. Espero que no os haya parecido aburrido y hayáis estado entretenidos leyéndolo. Odio las despedidas, pero espero con entusiasmo poder escribiros de nuevo queridos lectores.
¡HASTA LA PRÓXIMA!

REFERENCIAS:
  • Alexander, R.M. 1976. Estimates of speeds of dinosaurs. Nature, 261: 129-130.
  • Kim, J.Y., Lockley, M.G., Kim, H.M., Lim, J.D., Kim, S.H., Lee, S.J., Woo, J.O., Park, H.J., Kim, H.S. & Kim, K.S. 2009. New Dinosaur Tracks from Korea, Ornithopodichnus masanensis ichnogen. et ichnosp. nov. (Jindong Formation, Lower Cretaceous): implications for polarities in ornithopod foot morphology. Cretaceous Research, 30: 1387-1397.
  • Leonardi, G. 1987. Glossary and Manual of Tetrapod Footprint Palaeoichnology. Departamento Nacional de Producao Mineral, Brazil, p. 75.
  • Lim, J.D., Lockley, M.G. & Kong, D.Y. 2012. The trackway of a quadrupedal ornithopod from the Jindong Formation (Cretaceous) of Korea. Ichnos, 19: 101-104.
  • Lockley, M.G., Hunt, A.P. & Meyer, C.A., 1994b. Vertebrate Tracks and the Ichnofacies Concept: implications for Paleoecology and Palichnostratigraphy. In: Donovan, S. (Ed.), The Paleobiology of Trace Fossils. Wiley and Sons, Inc, New York, pp. 241-268.
  • Lockley, M.G., Wright, J., White, D., Li, J.J., Feng, L. & Li, H. 2002. The first sauropod trackways from China. Cretaceous Research, 23: 363-381.
  • McCrea, R.T., Tanke, D.H., Buckley, L.G., Lockley, M.G., Farlow, J.O., Xing, L.D., Matthews, N.A., Helm, C.W., George Pemberton, S. & Breithaupt, B.H. 2015. Vertebrate ichnopathology: pathologies inferred from dinosaur tracks and trackways from the Mesozoic. Ichnos, 22: 3-4, 235-260.
  • Olsen, P.E. 1980. A comparison of the vertebrate assemblages from the Newark and Hartford Basins (Early Mesozic, Newark Supergroup) of Eastern North America. In: Jacobs, L.L. (Ed.), Aspects of Vertebrate History, Essays in Honor of Edwin Harris Colbert, pp. 35-53.
  • Xing, L.D., Lockley, M.G., Zhang, J.P., Klein, H., Marty, D., Peng, G.Z., Ye, Y., McCrea, R.T., Persons, W.S.I.V. & Xu, T. 2015a. The longest theropod trackway from East Asia, and a diverse sauropod-, theropod-, and ornithopod-track assemblage from the Lower Cretaceous Jiaguan Formation, southwest China. Cretaceous Research, 56: 345-362.


domingo, 3 de abril de 2016

UN CAMINO SIN RESOLVER.

ARTÍCULO ORIGINAL: Novella L. Razzolini, Bernat Vila, Ignacio Díaz-Martínez, Phillip L. Manning & Ángel Galobart. 2016. Pes shape variation in an ornithopod dinosaur trackway (Lower
Cretaceous, NW Spain): New evidence of an antalgic gait in the fossil
track record. Cretaceous Research, 58: 125-134.

    ¡Hola de nuevo amigos!
    Espero que os haya gustado mi entrada anterior, acerca de las diferentes formas de locomoción de los dinosaurios. En esta entrada, me he centrado en las huellas dejadas por un organismo que vivió durante la era Mesozoica. Estas huellas son impresiones, debido al relieve negativo que presentan sobre el terreno. Como os habréis dado cuenta, mis dos publicaciones tratan de la forma de andar de los dinosaurios, y es básicamente porque ese mundo a mi me fascina, y me parece alucinante. Es increíble cómo a partir de una huella se puede saber que aspecto tenía el organismo que la generó.

    Os voy a poner en la situación ante la cual se encontraron un grupo de paleontólogos durante uno de sus viajes de exploración. Su nueva aventura tuvo lugar en Munilla, un municipio de La Rioja situado al NW de España,  concretamente en el yacimiento del Barranco de La Canal-1 (BLC1).
Figura 1. Las imágenes A y B representan el mapa geográfico y geológico del Barranco de La Canal-1, y el camino de huellas. La imagen C es una foto tomada en el camino, que muestra una visión general del rastro de huellas dejado por el organismo.
Este yacimiento se encuentra en la Cuenca de Cameros, que constituyó durante el Jurásico Superior y el Cretácico Inferior una cuenca extensional intraplaca, con un marcado carácter continental, situada en una posición intermedia entre las áreas deposicionales desarrolladas en los márgenes de la Placa Ibérica (Mas Mayoral et.al, 2011). Tras esta breve explicación de la zona, prosigo a narrar su historia. Se dispusieron a bajar una enorme cuesta y lo que se encontraron solo se puede describir con una palabra, IMPRESIONANTE. Allí abajo se podía ver una gran cantidad de huellas de todos los tamaños y formas. Este camino de huellas consta de 31 pisadas grandes consecutivas (Casanovas et.al, 1995) que debieron ser de un gran herbívoro que caminaba a dos patas. Estas huellas se encontraban preservadas sobre un afloramiento de limonitas de la unidad Valdeosera-Traguajantes, que forman parte de la parte superior del Grupo Enciso, donde predominan las areniscas, margas y limonitas (Hernández-Samaniego et.al, 1990). La morfología de estas huellas eran de un gran ornitópodo, en concreto son icnitas que se han clasificado dentro dentro del icnogénero Carichnium Lotus (Ignacio et.al, 2015). Cuando se acercaron para contemplarlas con mayor detalle, se dieron cuenta de que el paso de un pie era más corto que el del otro. ¿A qué se debe esta irregularidad?, ¿Podría ser que el dinosaurio estuviera cojo?, ¿La forma del pie sería esa? En un instante, demasiadas preguntas se les pasaron por la cabeza, así que después de seguir muestreando la zona fueron rápidamente a su estudio para analizarlo todo.                                       
¡Y COMENZARON SUS ESTUDIOS!.
    Para comenzar el análisis, realizaron un modelo digital 3-D de todo el camino BLC1, divido en 5 tramos en función de cambios en la anchura y curvatura del camino (Bates, 2008). 
Figura 2. Modelo digital del camino de huellas Barranco de la Canal-1. 

Con ayuda de la cámara de fotos Canon Power Shot S51S, tomaron una serie de fotos de las huellas , que se pueden apreciar en la primera columna de figura 3 (Mallison et.al, 2014), (Lockley et.al, 2015). Para adquirir mayores detalles, han elaborado un mapa en el que aparece representada en el eje de ordenadas la altura, con unos determinados colores en función de la altura, como puede verse en la segunda columna; y un mapa de isolineas con las alturas de la columna anterior, gracias al programa Paraview, que aparece representado en la tercera columna.
Figura 3. Huellas del pie derecho. BLC1.6, BLC1.8, BLC1.28 y BLC1.30.
Figura 4. Huellas del pie izquierdo. BLC1.7, BLC1.9, BLC1.11, y BLC1.29.

Una vez realizado el mapa de isolineas de cada huella, no se quedaron de brazos cruzados a la espera de un milagro, sino que se pusieron 
manos a la obra y empezaron a analizar cada una de ellas viendo su estructura.
En la figura 5, se puede ver  como se ha estructurado la huella, de tal forma que se puede medir el ángulo interdigital (IDA) y la anchura interdigital (IDW) de cada una de ellas. Y os preguntaréis qué es el ángulo y anchura interdigital. No os preocupéis, que a continuación os voy explicar brevemente cada uno de ellos. El ángulo interdigital es el ángulo medido entre los dedos contiguos de la icnita, o dicho de otra forma, es el ángulo de divergencia entre dos dedos adyacentes; mientras que la anchura interdigital es la máxima dimensión de la pisada medida ortogonalmente a la longitud de la pisada.
Figura 5. La imagen A representa el mapa de isolineas de la huella izquierda BLC1.9, con los dígitos IV, III y II; y la imagen B la huella derecha BLC1.30. La medida de la anchura interdigital (IDW II-III y IDW III-IV) se calcula trazando un segmento perpendicular (línea roja) a la línea que divide a la huella por la mitad (línea negra). Por otro lado, también se puede ver el ángulo interdigital entre los dígitos II y III (IDA II-III), y entre los dígitos III-IV (IDA III-IV).


    Después de un duro trabajo de recopilación de datos, llegó la hora de realizar las tablas con todas las medidas recopiladas. Realizaron una tabla para las huellas derechas y otra para las izquierdas. También se estimaron unas velocidades para cada tramo del camino: 1) 1.06 m/s; 2) 1.214 m/s; 3)1.371 m/s; 4) 1.209 m/s; 5) 0,998 m/s. (Alexander, 1976).


En la Tabla 1 se recogen todos los datos medidos de las 13 huellas derechas. Hemos tomado las medidas de los siguientes aspectos: longitud de la huella (TL); anchura de la huella (TW); longitud del paso (PL); longitud de la zancada (SL); ángulo interdigital entre los dedos II y III (IDA II-III); ángulo interdigital entre los dedos III y IV (IDA III-IV); anchura de la impresión de la almohadilla metarsodigital (DH); anchura del dedo II (DII); anchura del dedo III (DIII); anchura del dedo IV (DIV); el índice de anchura interdigital entre los dígitos II y III (IDW II-III); el índice de anchura interdigital entres los dígitos III y IV (IDW III-IV). Al final de la tabla, hay una fila dedicada para la media de cada una de las columnas. Las unidades de todas las medidas son centímetros, excepto los ángulos interdigitales que están en grados.


En la Tabla 2 se han realizado las mismas medidas que en la tabla anterior, solo que esta tabla es para las huellas izquierdas.


Y LOS RESULTADOS FUERON....
     Con ayuda de todo el material que recopilaron, han obtenido los siguientes resultados. Los modelos fotogramétricos que se llevaron a cabo en 25 de las 31 huellas, muestran una morfología que se ajusta al morfotipo propio del ornitópodo. Es mesaxónico, es decir, tiene el dígito medio alargado y forma el eje del pie; tridáctilo, con tres gruesos y anchos dedos generalmente simétricos (Félix, 2001), (Thulborn, 1990). Las huellas tienen una división cuatripartita correspondiente con la anotamía del pes (una almohadilla  por dígito y una subtriangular que rodea a la impresión de la almohadilla del dígito-metatarsal). La forma más común de las huellas es hexagonal. 
Analizando las tablas, la media de la longitud de la huella y la anchura va desde 41.3 a 41.7 cm y desde 38.1 a 40 cm respectivamente; la media de la longitud de la zancada es de 185 cm, tanto de la huella derecha como de la izquierda; y la media de la longitud del paso es de 94.5 cm. Sin embargo, el ritmo de paso es desigual, 98.3 cm es la longitud del paso derecha-izquierda; mientras que de izquierda-derecha es de 90.7 cm. Por lo tanto, la longitud del paso izquierdo es menor que el derecho. Otros aspectos que resaltan analizando todos estos datos son las claras diferencias morfológicas entre las huellas derechas e izquierdas: 
-Las huellas derechas tienen la impresión de los dígitos II y III orientados de forma subparalela (IDA con un rango de 28º-38º; IDW con un rango de 2.24-7.69 cm). Los máximos valores de anchura han sido registrados en la impresión del dígito- metatarsal, con un rango de 2.2-6.1 cm). Las impresiones de los dígitos II, III y IV tienen más o menos lamisma anchura (rango 1.5-5.6 cm).
-Las huellas izquierdas presentan la impresión del dígito-metatarsal lateralmente comprimida lateralmente y alargada, con una forma suboval. La impresión de los dígitos II y IV no se encuentran simétricamente dispuestas en torno al dígito III. La impresión dejada por el dígito II está más pronunciada que la dejada por el dígito IV. IDA II-III tiene un rango de 13º-24º; IDW II-III con un rango de 1.35-3.04 cm. El ángulo interdigital entre los dígitos III y IV es similar al de la huella derecha, IDA III-IV tiene un rango de 28º-42º; mientras que la anchura interdigital tiene un rango de 4.53-11.31 cm. 
    En resumen, el camino de huellas BLC1 muestra un 92% de irregularidades en la marcha del organismo (Lockley et.al, 1994), en el que un 8% corresponde a las diferencias entre los pasos consecutivos izquierdo-derecho (corto) y derecho-izquierdo (largo).


Y... ¡ POR FIN LLEGÓ LA HORA DEL ESPERADO DEBATE!
    Una vez analizado todos los datos, se pusieron a debatir sobre las causas de estas diferencias.
Lo primero que hicieron fue descartar la posibilidad de que el organismo hubiera estado acelerando y desacelerando su velocidad a lo largo del camino, debido a que en ellas no se aprecian significativas variaciones. Por lo tanto, se puede decir que la locomoción que tenía este ornitópodo era constante.
                                     VELOCIDAD 

Otro aspecto que descartaron fue que el terreno hubiera causado esta irregularidad en las huellas izquierdas. Las huellas se han preservado en una superficie homogénea, sometidas a unas condiciones de luz y erosión bastante uniform, por lo que han conservado muy bien su morfología con  el paso del tiempo.
                   TERRENO

La regularidad en sus pasos y el que realice una marcha estrecha, es decir, que entre cada paso haya una pequeña longitud, implica que es bípedo (Lockley et.al, 1994).
En las huellas izquierdas, se ha observado que la anchura interdigital entre los dígitos II-III es menor que la de las huellas derechas, haciendo que el dígito II esté más cerca de superponerse que del dígito III. Uno de los factores que puede causar esta patología puede ser debido a lesiones biomecánicas (Mcrea et.al, 2015), que son defectos debidos a daños físicos en el cuerpo, que afecten posiblemente al movimiento de desplazamiento, por lo que padezcan de cojera. Este factor fue el más apoyado por todos, y llegaron a la conclusión de que el organismo debió de llevar una marcha antiálgica, de modo que trataba de apoyarse lo menos posible en la extremidad lesionada (Harrington, 2005) acortándose el paso afectado por esta lesión y ampliándose el paso de la otra extremidad. 


LA DESPEDIDA...

    Espero que os haya parecido interesante mi segunda entrada, y hayáis disfrutado leyéndola. ¡HASTA LA PRÓXIMA AMIGOS ! 


REFERENCIAS:


domingo, 28 de febrero de 2016

“AMAR EN TIEMPOS CRETÁCICOS”

Imaginémonos una mañana de domingo de febrero sin tener nada que hacer, subirnos a nuestra “máquina del tiempo”, poner el reloj a *** menos 100 millones de años *** y pulsar el “ON”…
Con algo de suerte, nos trasladaríamos a un bosque de los de entonces y tal vez con otro poco más de fortuna, estaríamos cara a cara frente a un gran dinosaurio de 8 metros intentando cortejar a su amada con sus grandes patas. Evidentemente como este viaje es solo un bonito sueño paleontológico, nos conformaremos con dar a conocer un reciente artículo publicado en Scientific Reports y que da pie (y nunca mejor dicho) a mi primera aventura en este nuestro blog.


A modo de introducción comentaremos brevemente unos conceptos que aunque sabidos, creo que merece la pena recordar. El taxón Dinosauria fue formalmente designado en 1842 por el paleontólogo Sir Richard Owen derivando el término de las palabras griegas deinos sauros, lagarto terrible (Owen, 1842). Los dinosaurios aparecieron en el período Triásico hace unos 231 millones de años, extinguiéndose en el final del Cretácico hace 66 millones de años.

Según la naturaleza de sus huesos y articulaciones pélvicas (Fig. 1) se dividen en dos órdenes (Seeley, 1887):
  •  Los ornistiquios (Ornithischia), reptiles herbívoros bípedos y cuadrúpedos con pico, dientes y una pelvis semejante a la de las aves.
  •  Los saurisquios (Saurischia), con pelvis de reptil que a su vez comprenden a los terópodos (Theropoda), reptiles carnívoros con dientes terribles, patas delanteras relativamente cortas y traseras de gran tamaño terminadas en tres dedos y un metatarso con agudas garras (son los “protas” del artículo) y los saurópodos (Sauropoda), reptiles herbívoros cuadrúpedos de cola larga, cabeza pequeña y talla gigantesca (Sereno 1997).

Fig. 1. Diferencia “dinopelviana” entre Ornithischia (izda.) y Saurischia. Educ.ar.

Entrando en materia…
Nos situamos en el yacimiento Roubideau Creek en la zona más oriental de Colorado muy cerca del estado de Utah en EE.UU (Fig. 2). El campo de estudio está junto a la Gunnison Gorge National Conservation Area zona rica en huellas de grandes dinosaurios terópodos de unos 7,5 metros. En el año 2015  fueron localizados los rastros de 15 individuos en una zona de 75 metros de ancho con la principal característica de que prácticamente todas ellas tenían orientación paralela hacia el sur, lo que sugería el comportamiento gregario de estos reptiles (Lockley et al., 2015).

Fig. 2. Localización geográfica del yacimiento Roubideau Creek en Colorado. Colorado University.

Las areniscas que afloran en Roubideau Creek pertenecen al Cretácico, piso Albiense Cenomaniense con una edad de 100 millones de años (día arriba, día abajo). Lo que ahora es un enorme paisaje desértico en aquellos tiempos las placas del Pacífico y de América del Norte colisionaron formando los territorios de Laramidia en el oeste (actuales Montañas Rocosas) y Appalachia en el este (actuales Montes Apalaches). Las aguas procedentes del norte (actual Océano Ártico) se unieron con las del sur (actual Golfo de México) formando el  Cretaceous Western Interior Seaway (Fig. 3). 

Fig. 3. Localización aproximada de la zona durante el Cretácico. Wikipedia.org.

Este mar interior era cálido y de carácter tropical con numerosos depósitos deltaicos de plataforma marina somera o arrecifales y abundante vegetación que posteriormente daría lugar a los coal swamp o pantanos de carbón. La temperatura atmosférica era mucho más elevada y uniforme que la actual, estimándose en unos 25ºC la diferencia entre la de los Polos y la del Ecuador (Schrope, 2005).
Concretamente las areniscas estudiadas están dentro de la denominada Formación Dakota cretácica (Lockley et al., 2014), formación geológica compuesta por rocas sedimentarias depositadas en la zona más oriental del Cretaceous Western Interior Seaway durante su transgresión (Monroe & Wicander, 1997) (Fig. 4). 
Fig. 4. La “Formación Dakota” durante la transgresión del mar interior cretácico. Wikipedia.org.

En Roubideau Creek un grupo de paleontólogos capitaneados por Martin Lockley, Richard McCrea y Ken Cart han dado a conocer junto a huellas (icnitas) de dinosaurios herbívoros, otras de terópodos carnívoros del género Irenesauripus (Sternberg, 1932) un tanto peculiares (Fig. 5).

 
Fig. 5. El “dinocortejo” de Irenesauripus y esposa visto por los paleoartistas Lida Xing y Yujiang Han.

Con un tamaño de hasta de 2 metros de longitud y dispuestas en pares contiguos, las huellas presentan una serie de violentos arañazos tridáctilos en el sedimento que se encuentran relacionados con un comportamiento de cortejo “dinosexual” donde el macho muestra sus capacidades amatorias ante sus potenciales parejas (Figs. 6 y 7). 

Los autores han descartado que el origen de las huellas esté asociado a la formación de nidos ya que no han aparecido en el yacimiento restos de huevos o de incubación. Por otro lado tampoco serían resultado de la búsqueda de agua y alimento ya que estos fueron abundantes en la superficie de toda la zona referida durante el Cretácico Superior.

Fig. 6. Martin Lockley (derecha) y Kent Cart junto a los rasponazos descubiertos. Colorado University.


Fig. 7. Detalle donde se observa claramente la violencia del arañazo. Colorado University.

Estas relaciones de comportamiento entre dinosaurios terópodos no avianos y avianos (aves) así como sus caracteres osteológicos han sido objeto de estudio y debate en las últimas décadas (Xu et al., 2014; Sereno, 1997; Foster et al., 1998). Entre los paleontólogos existe el consenso de que las aves descienden de los terópodos (Mayr et al., 2005). En efecto, ambos taxones comparten características muy afines entre las que destacan el único cóndilo occipital (articulación del cráneo con la primera vértebra), única apófisis uncinada en las costillas que hace el tórax rígido y resistente para soportar el movimiento ventral del ala durante el vuelo así como la presencia de cuatro dedos en los miembros posteriores (Gil, 2009) (Fig. 8).

Fig. 8. Comparativa de la pata ave-dinosaurio. Botelho J. F., Universidad de Chile. Scientific Reports.

Lockley y sus colegas mediante una técnica de capas fotográficas denominada fotogrametría han conseguido realizar en el yacimiento imágenes 3D de los rasponazos, extrayendo sin dañar la arenisca, copias en caucho y fibra de vidrio que han sido almacenadas en el Natural Science Museum de Denver para su detallado estudio. Básicamente cuando hacemos una fotografía simple obtendremos información bidimensional del objeto fotografiado. De lo contrario si trabajamos con dos fotos con una zona común denominada zona de solape, tendremos visión estereoscópica o tridimensional del objeto a estudiar.

La Fig. 9 representa la imagen fotogramétrica de ocho arañazos bien conservados y el detalle de uno de ellos sobre una placa de arenisca de 100 m2. Concretamente aparecen como depresiones dobles paralelas compuestas por múltiples raspaduras separadas por una cresta central elevada,  bautizadas con el nombre de Ostenichnus bilobatus o “huella de dos lóbulos que sirve para presumir”. Estos rastros representan el fossil behaviour o comportamiento fósil derivado de la actividad en animales vivos (Seilacher, 1967) y cuyas cinco principales categorías son: repichnia rastros de locomoción, cubichia de descanso, domichnia de alojamiento, praedichnia de depredación y calichnia de cría (Bromley, 1996). Tras este descubrimiento, Ostenichnus bilobatus constituye un nuevo tipo no reconocido de calichnia asociado al cortejo dentro del comportamiento de manada ya observado en la Gunnison Gorge National Conservation Area.


 Fig. 9. Imágenes fotogramétricas de las huellas estudiadas. Los tonos azules corresponden a zonas de mayor presión. Scientific Reports.


“Esta es una evidencia física de los juegos previos muy similar a los de las aves actuales, que utilizan una ceremonia de cortejo de rascado generalmente cerca de sus lugares de nidificación finales. De esta forma la raspadura fósil ofrece la pista de que los dinosaurios pudieron estar reunidos aquí hace millones de años para reproducirse y luego anidar cerca”, afirma Lockley en su trabajo. Efectivamente, una de nuestras aves actuales, el frailecillo atlántico (Fratercula arctica) en la fase previa a la cría rasca el suelo produciendo dos surcos paralelos y una cresta central (Folch, 1992) (Fig. 10) que son sorprendentemente similares a Ostenichnus bilobatus del terópodo Irenesauripus estudiado. También el avestruz (Struthio camelus), más similar en tamaño a nuestro dinosaurio, produce raspaduras superficiales de 2 a 3 metros de diámetro muy similares a las descritas  y únicamente asociadas a la construcción del nido y a la puesta de huevos pero no al cortejo (Folch, 1992). 

Fig. 10. Frailecillo atlántico (Fratercula arctica) intentando ligar. Enciclopedia Animal.

Tras la lectura de este interesante artículo llegamos a la conclusión de que el hallazgo estudiado en esta entrada posee un gran valor científico, ya que se trata del primer yacimiento donde se han observado marcas relacionadas con el comportamiento sexual de un género de dinosaurios muy similar al de algunas especies de aves actuales. Estas prácticas de cortejo no solo están asociadas al acto físico de la cópula sino también a las del periodo de celo, las costumbres amatorias y la nidificación durante más de 160 millones de años (Bakker, 1986). Finalmente y en palabras de Lockley “estas enormes marcas de rascaduras rellenan el hueco que faltaba en nuestra comprensión del comportamiento de los dinosaurios”.


Y después de todo esto, ¿qué?...


... un gif vale más que mil palabras XD!!!

¡Hasta la próxima!


         REFERENCIAS