Mostrando entradas con la etiqueta Mesozoico. Mostrar todas las entradas

sábado, 2 de mayo de 2020

Adalatherium


Como os lo prometí, aquí tenéis el articulo que escribí para Wikipedia que lamentablemente no resulto. 
Se ha descubierto un esqueleto parcial de un pájaro primitivo, Rahona ostromi, gen. et sp. nov., a finales del Cretáceo Superior de Madagascar. Este espécimen, aunque presenta características de aves como un hallux invertido y papilas cubitales, conserva características que indican una ascendencia de terópodo, incluyendo una pata púbica y articulaciones vertebrales hipófobaso-hipántricas. 

Rahona tiene un segundo dedo robusto e hiperextensible en la pata trasera que termina en una garra rssimilar a una enfermedad, una característica única de terópodos Troodontidae y Dromaeosauridae.

El registro fósil de las formas de mamíferos (mamíferos y sus parientes más cercanos) de la era mesozoica del supercontinente meridional Gondwana es mucho menos extensa que la de su contraparte del norte, Laurasia 1,2. Entre las formas de mamíferos del Mesozoico la Gondwanatheria es uno de los clados menos conocidos, previamente representado por un solo cráneo y mandíbulas y dientes aislados 3,4. Como resultado, la anatomía, la paleobiología y las relaciones filogenéticas de los gondwanatherianos siguen sin estar claras.

El descubrimiento de un esqueleto articulado y muy bien conservado de un gondwanatherianos de la última edad (72,1-66 millones de años) del Cretácico período de Madagascar que asignamos a un nuevo género y especie, Adalatherium hui. Hasta donde sabemos, el espécimen es el esqueleto más completo de un Gondwana.

La mamaliaforma mesozoica que se ha encontrado, incluye la única forma material postcraneal y el ramus ascendente del dentado conocido por cualquier gondwanatheriano. El anális filogenético que incluye el nuevo taxón recupera a las Gondwanatheria como la hermana al grupo de Multituberculata. El esqueleto, que representa uno de los más grandes de los Gondwanan (Mamíferos del Mesozoico), es particularmente notable por exhibir muchas características únicas en combinación con características que son convergentes con las de los teriántropos mamíferos. Esta singularidad es consistente con una historia de linaje para A. hui de aislamiento en Madagascar durante más de 20 millones de años.

Los ambientes insulares promueven trayectorias evolutivas entre los mamíferos y otros vertebrados que contrastan con los de los continentes, y que dan como resultado una demostración anatómica, fisiológica y diferencias conductuales 5,6. Estas diferencias han sido previamente atribuidas a regímenes de selección notablemente distintos que implican factores como recursos limitados, la reducción de la competencia interespecífica y la escasez de depredadores y parásitos 7, 8, 9, 10. Aunque hay numerosos ejemplos de los efectos insulares en los mamíferos de la era cenozoica 11, 12 13, 14, los efectos del aislamiento a largo plazo en las islas es prácticamente desconocido en los mamíferos del Mesozoico y biotas mesozoicas en general.

El excelente estado de los restos del espécimen "abrió una nueva ventana" para que las personas conocieran la apariencia y el estilo de vida de los gondwanatherianos. 

Espero que lo hayáis disfrutado. 


1. Kielan-Jaworowska, Z., Cifelli, R. L. & Luo, Z.-X. Mammals from the Age of Dinosaurs:Origins, Evolution, and Structure (Columbia Univ. Press, 2004).

 2.Meng, J. Mesozoic mammals of China: implications for phylogeny and early evolution of mammals. Natl Sci. Rev. 1, 521–542 (2014).

3 Kielan-Jaworowska, Z., Cifelli, R. L. & Luo, Z.-X. Mammals from the Age of .Dinosaurs: Origins, Evolution, and Structure (Columbia Univ. Press, 2004).

4. O’Connor, P. M. et al. A new mammal from the Turonian–Campanian (Upper Cretaceous) Galula Formation, southwestern Tanzania. Acta Palaeontol. Pol. 64, 65–84 (2019).

5. Sondaar, P. Y. in Major Patterns in Vertebrate Evolution (eds Hecht, M. K. et al.) 671–707 (Plenum, 1977).

6.Van der Geer, A., Lyras, G., de Vos, J. & Dermitzakis, M. Evolution of Island Mammals: Adaptation and Extinction of Placental Mammals on Islands (Wiley-Blackwell, 2010).

7.Sondaar, P. Y. in Major Patterns in Vertebrate Evolution (eds Hecht, M. K. et al.) 671–707 (Plenum, 1977).

8. Azzarolli, A. in Palaeontology, Essential of Historical Geology (ed. Gallitelli, E. M.) 193–213 (S.T.E.M. Mucchi, 1982).

9.Losos, J. B. & Ricklefs, R. E. Adaptation and diversification on islands. Nature 457, 830–836 (2009).

10. McNab, B. K. Geographic and temporal correlations of mammalian size reconsidered: a resource rule. Oecologia 164, 13–23 (2010).

11.Sondaar, P. Y. in Major Patterns in Vertebrate Evolution (eds Hecht, M. K. et al.) 671–707 (Plenum, 1977.

12.Benton, M. J. et al. Dinosaurs and the island rule: the dwarfed dinosaurs from Haţeg Island. Palaeogeogr. Palaeoclimatol. Palaeoecol. 293, 438–454 (2010).

13.Ünay, E., De Bruijn, H. & Saraç, G. The Oligocene rodent record of Anatolia: a review. Deinsea 10, 531–537 (2003).

14.Métais, G. et al. Eocene metatherians from Anatolia illuminate the assembly of an island fauna during deep time. PLoS ONE 13, e0206181 (2018).

Referencias para profundizar.
15.Krause, D. W., Hoffmann, S., Hu, Y., Wible, J. R., Rougier, G. W., Kirk, E. C., ... & Evans, A. R. (2020). Skeleton of a Cretaceous mammal from Madagascar reflects long-term insularity. Nature, 1-7.
16. Forster, C. A., Sampson, S. D., Chiappe, L. M., & Krause, D. W. (1998). The theropod ancestry of birds: new evidence from the Late Cretaceous of Madagascar. Science, 279(5358), 1915-1919.

jueves, 4 de abril de 2019

Osteosarcoma en fósil de un antepasado de las tortugas

¡Hola de nuevo curios@s!
Aquí estoy, un día más, para hablaros de otro reptil. En esta, mi tercera entrada, os expongo el descubrimiento de un osteosarcoma (tumor maligno) en los huesos de un pariente de las actuales tortugas. 

Inicio mi búsqueda con el artículo de la revista Science News por Aimee Cunningham: A rare, ancient case of bone cancer has been found in a turtle ancestor Science News, Vol. 195, No. 5, March 16, 2019, p. 5 para hacerme una idea, aunque el artículo original de los investigadores es el siguiente: Yara Haridy et al. Triassic Cancer—Osteosarcoma in a 240-Million-Year-Old Stem-Turtle, JAMA Oncology (2019). DOI: 10.1001/jamaoncol.2018.6766
Lamentablemente, a pesar de registrarme y buscar como ver el artículo completo, no me ha servido de nada, así que he tenido que buscar en otros medios para hallar más información, aquí dejo el tercer artículo que he visitado: Bob Yirka: Bone cancer found in 240-million-year-old stem-turtle fossil , https://phys.org/  Februrary 8, 2019. 


Pappochelys rosinae


Como ya he comentado con anterioridad, se ha encontrado un fósil de un ancestro de las tortugas del período Triásico (Primera etapa de la Era Mesozoica y que precede al Jurásico. Se inicia hace 251Ma (Millones de años) y termina hace 201Ma). 
Este fósil de hace más de 240 Ma parece ser el caso más antiguo conocido de cáncer en en amniotas (mamíferos, aves y reptiles). Como se puede apreciar en el artículo, el fósil de una de las extremidades posteriores de Pappochelys rosinae, tortuga que carecía de caparazón, fue encontrado en 2013 en el SO (Sudoeste) de Alemania. Paleontólogos y médicos analizaron el hueso mediante la realización de un T.A.C. (Tomografía computerizada), muy útil ya que aporta una visión tridimensional y detallada de cualquier cosa que queramos analizar ya que podemos hacer cortes sagitales (izquierda-derecha), axiales (zona superior-inferior) o coronales (anterior-posterior) de la muestra mediante un PC. 

CÁNCER DE HUESO. Un equipo de paleontólogos y médicos descubrió que un fémur fosilizado de Pappochelys rosinae (vista frontal que se muestra con una imagen de TAC) tenía un osteosarcoma perióstico (cáncer óseo maligno).

Según las propias palabras de Haridy, paleontóloga en el Museum für Naturkunde de Berlín: "Cuando vimos que esto no era una ruptura o una infección, comenzamos a observar otras enfermedades que causan el crecimiento. ¿El veredicto? Osteosarcoma perióstico, un tumor óseo maligno. Se parece casi de forma exacta al osteosarcoma perióstico humano". Añade: "Es casi obvio que los animales antiguos tendrían cáncer, pero es muy raro que encontremos evidencia de ello. El descubrimiento de este tumor proveniente del Triásico ofrece evidencias de que el cáncer es una vulnerabilidad a la mutación profundamente enraizada en nuestro ADN". La muestra de estudio fue encontrada junto con otras 20 similares en una cantera cercana a la ciudad Alemana de Velberg. Se observó que uno de los huesos, un fémur, tenía una gran protuberancia anormal, tras varias hipótesis e investigación, se descubrió que era un osteosarcoma. Las evidencias de cáncer en fósiles es realmente extraña, ya que solo se encuentran, en la mayoría de los casos, en tejidos blandos. También comentar que el tipo de cáncer encontrado es uno de los más extraños, dándose aproximadamente de 800 a 900 casos en humanos en Estados Unidos, de modo que el haber encontrado este tipo de cáncer en un fósil lo hace realmente especial (al fósil, claro está).
El cáncer en humanos normalmente está asociado a cambios genéticos y ambientales, por lo que es probable que en animales los orígenes sean los mismos.


Imagen más concreta de la localización del osteosarcoma de Pappochelys rosinae.


Este descubrimiento fue posible gracias a la ciencia de la Paleopatología, ciencia que estudia las enfermedades antiguas, gracias a la cual hoy en día entendemos la evolución de los patógenos, sistemas inmunitarios, fisiología de la curación y muchos aspectos del medio ambiente. Esta investigación se centró en la prevalencia del cáncer en diversos organismos, descubriéndose que en algunos casos, algunos animales eran más propensos a sufrirlo, mientras otros eran inmunes.

Y bueno, aunque esta entrada me parece que ha sido más breve que las de otras veces... espero que aún así os haya parecido interesante. Siento no poder aportar mucha más información al respecto, espero que con el tiempo descubramos más acerca de este curioso caso. Por lo pronto, os dejo un artículo de la revista National Geographic dónde además de hablar sobre Pappochelys rosinae, entremezcla un poco también los orígenes del cáncer en humanos.


Con esto ya me despido, hasta la última entrada, que ya será una puesta en común de esta y las anteriores y dónde expondré mis motivos de por qué he decidido hablar de E. carrolldongi (¿Ornitorrincos en el Triásico? Pues...¡si!), O.pabsti (Pasito a pasito...) y P. rosinae. ¡Nos leemos!


Pappochelys rosinae os dice: ¡Hasta otra!

REFERENCIAS:


domingo, 17 de febrero de 2019

Uno de los artrópodos con las patas más largas

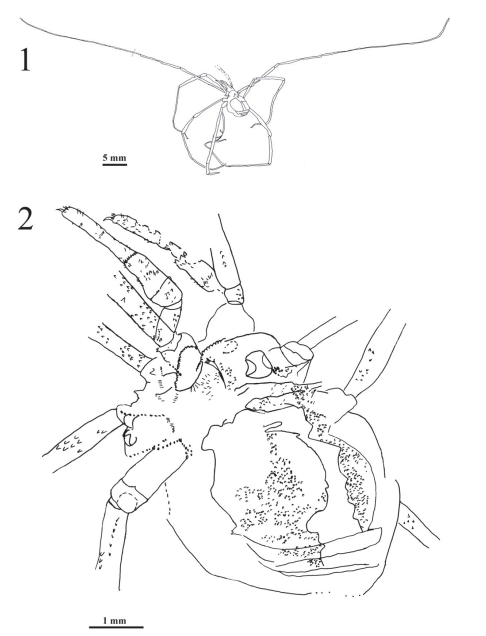
En mi primera publicación, basándome principalmente en el artículo "First fossil harvestmen (Arachnida: Opiliones) from Spain and notes on the fossil record of Opiliones" he decidido hablar sobre los Opiliones, un orden de arácnidos donde se incluyen más de 6600 especies descritas y sobre 50 familias alrededor del mundo. A pesar de esto, tan solo han sido encontrados 42 fósiles en 15 localidades diferentes. Esta escasez en cuanto a fósiles encontrados se refiere, se debe en parte a su bajo grado de fosilización. A pesar de esto, recientemente fueron hallados los dos fósiles encontrados en España (¡Uno de ellos es incluso una especie que ha sido por primera vez hallada, y ha ocurrido este año!), en Yacimientos extraordinarios, en concreto, en Konservat-Lagerstätten,  que como se ha explicado en clase, y como se indica en el libro "Paleontología. Síntesis, Madrid" (citado más abajo), son yacimientos de conservación donde se encuentran los restos de preservación excepcional; debido a esto, los fósiles se disponían en buen estado de conservación, ya que en él se han podido observar las articulaciones, los órganos internos y la preservación del cuerpo y los colores del patrón de alas.

Uno de los fósiles fue encontrado en Las Hoyas, un yacimiento del Cretácico, situado en Cuenca. Este hallazgo ha sido clasificado como Opiliones indet. debido al pobre estado de preservación. A pesar de esto, es importante nombrarlo, ya que escasean extremadamente los fósiles del Mesozoico.


El segundo, mejor conservado y clasificado como una nueva especie de la familia del género extinto Cosmobunus, familia Sclerosomatidae y suborden Eupnoi. Esta nueva especie ha sido bautizada como Cosmobunus sagani, y fue hallado en la cuenca de Rubielos de Mora, un yacimiento del Mioceno temprano.


A diferencia de España, en Canadá (Shultz, J.W. 2019.). han sido encontradas 36 especies nativas y 7 no nativas, aunque quizás, más de 20 especies sigan sin ser descubiertas, debido a la diversidad de especies en el adyacente Estados Unidos, además de la evidencia del "barcoding" (un método taxonómico que usa una determinada porción de gen o genes para identificar una especie). (Herbert, P. D. N., Cywinska. A., Ball, S. L., DeWaard. J.R. 2003.)

Una característica especial de estos arácnidos es que son de los artrópodos que presentan las patas más largas (de ahí que sean vulgarmente conocidos como arañas patonas), lo que les confiere hiperflexión. Por ello, se ha estudiado el mecanismo en las patas que presentan los Opiliones para la ingeniería biomimética, en casos como métodos de transporte e investigaciones quirúrgicas. (Wolf, J.O., Wiegmann, C., Wirkner, C.S., Koehnsen, A., Gorv, S.N. 2019.)


Fuentes:


Herbert, P. D. N., Cywinska. A., Ball, S. L., DeWaard. J.R. 2003. Biological identifications through DNA barcodes. Proceedings. Biological Sciences, 270 (1512), 313-21.

López Martínez, N. & Truyols Santonja, J. 1994. Paleontología. Síntesis, Madrid.


Palencia, L., Peñalver, E., Prieto, C. E., Potayo-Ariza. F. J. 2019.  First fossil harvestmen (Arachnida: Opiliones) from Spain and notes on the fossil record of Opiliones. Palaentologia Electronica. 22 (1): Artículo número 22. 1. 5.


Shultz, J.W. 2019. The Biota of Canada - A Biodiversity Assessment. Part 1: The Terrestrial Arthropods. Opiliones of Canada, 57–65.


Wolf, J.O., Wiegmann, C., Wirkner, C.S., Koehnsen, A., Gorv, S.N. 2019. Traction reinforcement in prehensile feet of harvestmen (Arachnida, Opiliones). The Journal of Experimental Biology, 222(3).


lunes, 28 de mayo de 2018

Investigador de Lagartos Vol. 4

Así pues, me despido con este último post. Creo que las palabras sobran ahora, el final se acerca y la tristeza es protagonista. Por si no nos volvemos a ver: buenos días, buenas tardes y buenas noches.


Un momento, un momento. Para que entendáis cómo he llegado a esta situación, copiando una cita de Jim Carrey en “El Show de Truman”, debería retroceder algunos meses atrás.

La primera vez que escribí en este blog, comenté cierto artículo sobre un fósil de hace 110 millones de años, donde quedaba constancia de un lagarto que podía correr de forma bípeda, seguramente como medio de huida. Personalmente el artículo me pareció bastante interesante, lo cual no supe trasmitir del todo en mi post, quedándose un poco largo. Con ello, se me abría un inmenso mundo de posibilidades para los siguientes artículos: la evolución del bipedismo en diferentes especies, un tema bastante amplio. Si mi yo del futuro hubiese sabido que eso no iba a pasar, quizá el post sería otro.

Lizars ran bipedally 110 million years ago

La decepción llegó con el segundo artículo. Nada encontré sobre sobre el bipedalismo o algo similar de 2018, nada. Así que debí cambiar un tanto el enfoque. Allí encontré la nueva senda: un lagarto pérmico que ya podía desprenderse de su cola para huir de los depredadores. La verdad que éste fue duro. Más largo que el anterior y con interminables descripciones sobre vértebras, hice alarde de mi capacidad de síntesis y publiqué una pequeña entrada. Je, no, como era de esperar, el post me quedó bastante largo y difícil de entender (procuraré arreglarlo algún día). Así enfilaba mi nuevo planteamiento: “Sistemas antidepredatorios en lagartos fósiles”. Suena bien, ¿verdad?

Caudal autotomy as anti-predatory behaviour in Paleozoic reptiles

Sonaba maravillosamente bien, incluso era interesante. Sólo me quedaba poner el punto y final con un artículo relacionado con los dos anteriores; sería cerrar un triángulo perfecto alrededor de ese tema. Qué desdicha la mía al ver que nada había. Así entré en una búsqueda desesperada por algo con una mínima relación con mis temas anteriores. Encontré lo que sería, para mí, mi mejor artículo en el blog, el más corto, más ameno, y más entendible aunque, eso sí, con una asociación un tanto débil con mis dos primeros posts: Una mandíbula de un lagarto triásico mostraba la mordida más potente de aquellos tiempos. Me las ingenié para relacionarlo y el resultado me pareció relativamente bueno.

A tiny Triassic saurian from Connecticut and the early evolution of the diapsid feeding apparatus

Ahora, habiéndome desviado irremediablemente del bipedalismo inicial, reconozco que este trabajo ha sido bastante interesante en muchos aspectos. He adquirido nueva información, ya sea de mis propios artículos o de los ajenos; he puesto a prueba mi capacidad de síntesis, la cual me ha decepcionado (tendremos que trabajar más); he mejorado mi oxidado inglés, etc, etc.

Además, he dado voz a unos pequeños seres marginados bajo la hegemonía de los dinosaurios. Me explico. Cuando se habla (a un nivel de 1º de carrera y anteriores cursos) de tiempos pasados se tienen tres visiones: la Tierra como una gran masa de lava, las gigantes criaturas que llamamos dinosaurios (de hecho, el nombre “lagarto terrible” no da mucho trabajo a la imaginación) y los mamuts. Seguramente por ser lo más atractivo para los muggles (los no biólogos o geólogos) es lo más conocido, y margina a unas cantidades inmensas de especies. Por eso, con estos artículos, abro una puerta de conocimiento a estos pequeños seres con habilidades asombrosas (qué bonita me ha quedado la frase).

Así pues, me despido con este último post. Creo que las palabras sobran ahora, el final se acerca y la tristeza es protagonista. Por si no nos volvemos a ver: buenos días, buenas tardes y buenas noches.


martes, 1 de mayo de 2018

Pequeño pero matón

En las dos anteriores entradas hemos visto que, si eres un pequeño e indefenso lagarto, si quieres sobrevivir, debes diseñar algún método para salvarte de los grandes depredadores. Vimos dos: despistar con la cola al desprenderse de ella y la más clásica, echar a correr.

Bien, pues lo de hoy es algo diferente, quiero decir, hoy no hablamos de cobardes. El lagarto que os traigo hoy, Colobops noviportensis, a pesar de ser pequeño también, tenía una mordedura más potente que muchos de los reptiles triásicos, además de una protección en el rostro. Esta vez era de él del que tenían que huir los demás.


Artículo: Adam C. Pritchard, Jacques A. Gauthier, Michael Hanson, Gabriel S. Bever & Bhart-Anjan S.Bhullar (2018) A tiny Triassic saurian from Connecticut and theearly evolution of the diapsid feeding apparatus. Nature Communications 9, Article number: 1213


La Era Mesozoica Temprana vio el florecimiento inicial de los principales clados de tetrápodos que dominaron los ecosistemas terrestres a partir de entonces. Los primeros representantes de los grupos corona Amphibia, Lepidosauria y Archosauria aparecieron durante el Triásico, reconocido ahora como un momento clave en la aparición de los principales clados de vertebrados (Evans, 2003; Nesbitt, 2011). Sin embargo, en las revisiones de la historia de los vertebrados, existe una suposición de que estos clados surgieron de ancestros generalistas no especializados durante el Triásico (Carroll, 1988). Esto no significa que los taxones de los que surgieron esos grupos corona no se diversificasen de forma propia durante el Triásico. Desafortunadamente, gran parte de nuestra comprensión de este registro está sesgada hacia especies grandes y medianas, con una longitud corporal total mayor de un metro.

En los ecosistemas actuales, una importante disparidad morfológica y ecológica se encuentra en animales de cuerpo pequeño, mientras que los sesgos de conservación a menudo excluyen tales especies del registro fósil (Mitchell, 2015). Estos sesgos probablemente enmascaran una disparidad ecomorfológica mucho mayor de lo que se ha apreciado entre los miembros de los principales clados de tetrápodos de la transición Permo-Triásico.

Colobops noviportensis presenta un nuevo taxón que amplía la disparidad ecomorfológica de los vertebrados de cuerpo pequeño desde el Mesozoico Temprano. Encontrada en Connecticut (Estados Unidos) en la formación New Haven Arkose del Triásico Superior, la nueva forma está representada por un cráneo parcial muy pequeño, que presenta un conjunto de morfologías relacionadas con una mordida poderosa, desconocida en cualquier diápsido de cuerpo pequeño, juvenil o adulto.

Su presencia en los albores del Mesozoico enfatiza que los principales clados modernos de vertebrados se originaron en un mundo poblado por extremos ecomorfológicos de cuerpo pequeño y grande.


Los restos encontrados

El cráneo parcial de 2,5 cm de longitud tiene unas uniones hipertróficas para los músculos aductores de la mandíbula, que llenan el ancho transversal de la porción postorbital del cráneo. Además  posee un rostro fuertemente reforzado con una superposición extensa de huesos adyacentes. Las fosas supratemporales en esta especie son proporcionalmente más amplias que en cualquier otro reptil de tamaño similar del grupo corona.

El rostro es extremadamente corto proporcionalmente, que comprende menos de un cuarto de la longitud total del cráneo (Fig. 1a). Además, el cráneo estaba deprimido con relación a su longitud (Fig. 1c), con unas órbitas agrandadas, proporcionalmente largas y muy orientadas dorsolateralmente.

Hay una serie de rasgos que relacionan a esta especie con múltiples taxones de resptiles: 
  • Tiene una férula estrecha de hueso entre el margen lateral de la nariz izquierda y el margen medial del maxilar izquierdo, que podría ser el proceso posterodorsal del premaxilar (Fig. 1a, d), lo que apoya la identificación de Colobops como un arcosaurio.
  • La región antorbital está excepcionalmente reforzada. El nasal tiene una lámina ventrolateral, dorsoventralmente alta, que refuerza toda la superficie medial del proceso facial del maxilar (Fig. 1d). Esto se puede ver en Rhynchosauria y en Rhynchocephalia.
  • El palatino tiene un proceso prefrontal inusualmente amplio que sostiene el techo del cráneo contra las mandíbulas, similar en muchos lepidosaurios (Gauthier et al., 2012), tortugas (Gaffney, 1990; Gaffney et al., 1972) y Rhynchosauria (Chatterjee, 1974; Montefeltro et al., 2010).
  • La porción central del yugal es dos veces más ancha que la ascendente, similar a los escamados durófagos como Adamisaurus magnidentatus (Sulimski, 1978), Chamaeleolis chamaeleonides (Herrel & Holanova, 2008) y Dracaenaguianensis (Maisano, 2002).
  • Las grandes órbitas se dirigen algo dorsalmente, debido en parte al perfil relativamente bajo del cráneo, similar a las especies modernas de Sceloporus.
  • La fenestra supratemporal es proporcionalmente más amplia que las porciones orbital y preorbital del cráneo (Fig. 1a). Una condición similar surgió independientemente en Rhynchosauria (Benton, 1983; Ezcurra, 2016).


Fig. 1: Cráneo reconstruido de Colobops noviportensis. a-vista dorsal, b-ventral, c-lateral izquierda y d-anterior. Las porciones grises indican porciones del cráneo de homología incierta. Barra de escala igual a 1 cm. Abreviaturas: cp, apófisis coronoide; fo, fontanela; pf, foramen parietal; sc, cresta sagital.

La cámara aductora es notablemente voluminosa en Colobops noviportensis. De hecho, Colobops noviportensis es la especie más pequeña en poseer un espacio proporcionalmente amplio para la musculatura de cierre de la mandíbula, respecto a los taxones tempranos mesozoicos y recientes (ejemplos de la Fig. 2). Proporcionalmente, la cámara aductora ocupa un porcentaje parecido al del ancho del cráneo postorbital, como en los hyperodapedontine rhynchosaurs y en Trilophosaurusbuettneri.

Fig. 2: Anatomía supratemporal de diápsidos recientes y Permo-Triásicos. a. Reconstrucción tridimensional de Anolis sagrei, que ilustra la correlación directa entre la fosa supratemporal ósea y la amplitud transversal de la porción dorsal de la masa del músculo aductor en los diápsidos. b. Tropidostoma Zone Youngina, c. Prolacerta broomi, d. hyperodapedontine rhynchosaur juvenil y e. Hyperodapedon sanjuanensis.

El techo del cráneo tiene una brecha bilateral que podría ser una fontanela, e indicar que el espécimen es un individuo muy joven (Maisano, 2002; Rieppel, 1993), aunque las fontanelas se mantienen hasta la madurez en algunos iguanios (Gauthier et al., 2012; Bellairs & Kamal, 1981).

La única porción de la mandíbula conservada es una gran apófisis coronoide derecha. No está claro qué huesos mandibulares contribuyen a esta estructura. La prominencia de esta porción de la mandíbula es comparable a algunos lepidosaurios existentes y a algunos arcosaurios como Trilophosaurus buettneri (Gregory, 1945; Robinson, 1957).

Hiperdesarrollo aductor

Para caracterizar el tamaño relativo de la cámara del aductor en Colobops noviportensis, se reaciona el ancho de la exposición dorsal de las fijaciones del músculo aductor con el ancho postorbital total del cráneo, en especies de diápsidos existentes y extintos. En la gráfica, Colobops noviportensis representa el diápsido muestreado más pequeño, que posee un grado tal de hipertrofia del aductor (Fig. 3).

Fig. 3: Gráficos de las medidas del tamaño total del cráneo frente a las dimensiones de las fosas supratemporales. a. Gráfico bivariado de la anchura transversal frente al ancho transversal. b. Gráfico bivariado de la anchura transversal frente a la contribución proporcional de las fosas supratemporales a la amplitud postorbital del cráneo. c. Gráfico bivariado del área de superficie dorsal del cráneo frente a la contribución proporcional de las fosas supratemporales al área de la superficie dorsal del cráneo. En todas las gráficas, la estrella azul indica las medidas para Colobops noviportensis.

Dentro de las especies individuales, el tamaño total del cráneo parece correlacionarse fuertemente con la amplitud relativa de la cámara aductora. Entre los modernos Lepidosauria (Jones & Lappin, 2009; Bhullar, 2012) y Archosauria (Rieppel, 1993; Iordansky, 1974), las inserciones dorsales de la musculatura aductora en el techo del cráneo crecen alométricamente, volviéndose proporcionalmente más anchas y más prominentes en relación con la anchura del cráneo (ejemplo ilustrado en la Fig. 4). Sin embargo, todos los individuos muestreados con una cresta sagital, excluyendo a Colobops noviportensis, tienen anchuras post-orbitales de cráneo mayores de 3 cm.

Fig. 4: Diagrama del ancho relativo de las fosas supratemporales por el ancho total del cráneo en la Iguana moderna. Cráneos de Iguana iguana en vista dorsal, que representan una serie ontogenética que ilustra el ensanchamiento de los aditamentos de la musculatura aductora y un diagrama bivariado del ancho transversal de la porción postorbital del cráneo frente a la contribución proporcional de las fosas supratemporales al ancho transversal de la porción postorbital del cráneo, con datos de Iguana iguana. La estrella  indica la posición de Colobops noviportensis. Barras de escala iguales a 5 mm.

Por lo tanto, si el holotipo Colobops noviportensis representa un adulto, el tamaño proporcional de sus fosas supratemporales excede el de cualquier otro diápsido de tamaño comparable. Si representa un juvenil, el tamaño proporcional de la fosa se vuelve aún más notable, ya que los juveniles de tamaño similar de los saurios recientes tienen fosas mucho más pequeñas.

Análisis filogenético

Para investigar las afinidades de Colobops noviportensis, se integró el taxón en un análisis filogenético con una amplia muestra de diápsidos pérmicos y triásicos, llegando a la conclusión de que se necesitan más estudios de la filogenia sauriana temprana y más material de Colobops noviportensis para resolver el patrimonio filogenético de la especie.

Sobre la mordedura de Colobops noviportensis

Colobops noviportensis muestra un conjunto de apomorfias craneales que indican una estrategia de alimentación especializada. Aunque carece de dientes preservados, el techo craneal bien conservado permite hacer inferencias sobre la naturaleza de su mordida.
En los escamosos existentes, la musculatura aductora de la mandíbula se suele acentuar en una de dos formas (Edgeworth, 1935; Holliday & Witmer, 2007):
  1. Los parietales están recubiertos medialmente por concavidades profundas para los músculos pseudotemporal superficial y aductor de la mandíbula externa profunda.
  2. Los postorbitales y escamosos pueden expandirse transversalmente para acomodar el músculo aductor mandibular externo superficial.

En Colobops noviportensis, ambos rasgos están presentes, lo que indica que ambas porciones del complejo aductor se agrandaron.

No se conocen bien las diferentes funciones que desempeñan los aductores mandibulares superficiales y profundos en el procesamiento de alimentos en los saurios existentes. Sin embargo, se pueden hacer ciertas especulaciones: la alta apófisis coronoide habría aumentado el brazo de palanca de los músculos de la mandíbula unidos, lo que mejoraría aún más la fuerza del cierre de la mandíbula (Reilly et al., 2001). Por lo tanto, para un animal de su tamaño corporal, Colobops noviportensis probablemente tuvo una mordida más poderosa que cualquier otro reptil triásico.

Sobre el desarrollo ontogénico de Colobops noviportensis

Respecto a su fase de desarrollo, la presencia de una fontanela da una pausa para argumentar sobre su relativo estado ontogenético. Sin embargo, centrándose en la creta sagital, la presencia de tales cámaras aductoras agrandadas en un cráneo tan pequeño no tiene precedentes a pesar de todo.

Sobre el refuerzo del rostro de Colobops noviportensis

El espacio expandido para los músculos de la mandíbula ocurre concomitantemente con el refuerzo rostral, lo que sugiere una correlación funcional.

La gran superposición del nasal, maxilar y premaxilar difiere del contacto óseo comparativamente pequeño en la mayoría de los primeros saurios. De hecho, solo Rhynchocephalia y Rhynchosauria se acercan a esta condición. De manera similar, también se produce una superposición similar en los Amphisbaenia conocidos, excavadores de cabeza muy modificada. Ningún taxón conocido, extinto o existente, combina la expansión rostral y palatal y el refuerzo a la manera de Colobops noviportensis.

Sobre la alimentación de Colobops noviportensis

Las mejores ideas sobre la alimentación provienen de la forma general de la cámara aductora. El proceso post-temporal del parietal está orientado lateralmente, como en Sphenodontia (Gauthier et al., 2012; Fraser, 1988) y Rhynchosauridae (Montefeltro et al., 2010; Benton, 1983). Estos dos taxones comparten mordeduras de precisión, en las cuales la fila de dientes dentados se ajusta dentro de una ranura entre múltiples filas superiores de dientes. Sin embargo, el uso real de esta fila de dientes ranurados altamente especializados probablemente difirió mucho entre estos taxones, lo que indica que el aparato dental de Colobops noviportensis es similarmente complejo a los anteriores, pero no se sabe sobre la naturaleza precisa de su mordedura.

Los músculos hipertrofiados de la mandíbula y el rostro reforzado en el pequeño tamaño de Colobops noviportensis ilustran que los extremos de la diversidad de alimentación no involucraban únicamente animales de gran tamaño. Ningún otro taxón mesozoico conocido de tamaño corporal similar poseía la combinación de un potente aparato para morder y un rostro óseo reforzado.

REFERENCIAS
  1. Evans, S. E. At the feet of the dinosaurs: the early history and radiation of lizards. Biol. Rev. 78, 513–551 (2003).
  2. Nesbitt, S. J. The early evolution of archosaurs: relationships and the origin of major clades. Bull. Am. Mus. Nat. Hist. 352, 1–292 (2011).
  3. Carroll, R. L. Vertebrate Paleontology and Evolution (Freeman, New York, 1988).
  4. Mitchell, J. S. Preservation is predictable: quantifying the effect of taphonomic biases on ecological disparity in birds. Paleobiology41, 353–367 (2015).
  5. Gauthier, J. A., Kearney, M., Maisano, J. A., Rieppel, O. & Behlke, A. D. Assembling the squamate tree of life: perspectives from the phenotype and the fossil record. Bull. Peabody Mus. Nat. Hist. 53, 3–308 (2012).
  6. Gaffney, E. S. The comparative osteology of the Triassic turtle. Proganochelys. Bull. Am. Mus. Nat. Hist. 194, 1–263 (1990).
  7. Gaffney, E. S., Parsons, T. S. & Williams, E. E. An illustrated glossary of turtle skull nomenclature. Am. Mus. Novit. 2486, 1–33 (1972).
  8. Chatterjee, S. A rhynchosaur from the Upper Triassic Maleri formation of India. Philos. Trans. R. Soc. Lond. B Biol. Sci. 267, 209–261 (1974).
  9. Montefeltro, F. C., Langer, M. C. & Schultz, C. L. Cranial anatomy of a new genus of hyperodapedontine rhynchosaur (Diapsida, Archosauromorpha) from the Upper Triassic of Southern Brazil. Earth Environ. Sci. Trans. R. Soc. Edinb. 101, 27–52 (2010).
  10. Sulimski, A. New data on the genus Adamisaurus Sulimski 1972 (Sauria) from the Upper Cretaceous of Mongolia. Palaeontol. Pol.38, 43–56 (1978).
  11. Herrel, A. & Holanova, V. Cranial morphology and bite force in Chamaeleolis lizards–adaptations to molluscivory? Zoology 111, 467–475 (2008).
  12. Maisano, J. A. Postnatal skeletal ontogeny in Callisaurus draconoides and Uta stansburiana (Iguania: Phrynosomatidae). J. Morphol. 251, 114–139 (2002).
  13. Benton, M. J. The Triassic reptile Hyperodapedon from Elgin: functional morphology and relationships. Philos. Trans. R. Soc. B Biol. Sci. 302, 605–718 (1983).
  14. Ezcurra, M. D., Montefeltro, F. & Butler, R. J. The early evolution of rhynchosaurs. Front. Ecol. Evol. 3, 142 (2016).
  15. Rieppel, O. Studies on skeleton formation in reptiles. v. Patterns of ossification in the skeleton of Alligator mississippiensisDAUDIN (Reptilia, Crocodylia). Zool. J. Linn. Soc. 109, 301–325 (1993).
  16. Bellairs, A. d’A. & Kamal, A. M. in Biology of the Reptilia.Vol. 11. Morphology F (eds. Gans, C. & Parsons, T. S.) Ch. 1 (Academic Press, New York, 1981).
  17. Gregory, J. T. Osteology and relationships of Trilophosaurus. Univ. Tex. Publ. 4401, 273–359 (1945).
  18. Robinson, P. L. An unusual sauropsid dentition. Zool. J. Linn. Soc.43, 283–293 (1957).
  19. Jones, M. E. & Lappin, A. K. Bite-force performance of the last rhynchocephalian (Lepidosauria: Sphenodon). J. R. Soc. N. Z. 39, 71–83 (2009).
  20. Bhullar, B.-A. S. A phylogenetic approach to ontogeny and heterochrony in the fossil record: cranial evolution and development in anguimorphan lizards (Reptilia: Squamata). J. Exp. Zool. B Mol. Dev. Evol. 318, 521–530 (2012).
  21. Iordansky, N. N. in Biology of the Reptilia.Vol. 4. Morphology D (eds. Gans, C. & Parsons, T. S.) Ch. 3 (Academic Press, New York, 1974).
  22. Edgeworth, F. H. The Cranial Muscles of Vertebrates, 493 pp. (Cambridge University Press, London, 1935).
  23. Holliday, C. M. & Witmer, L. M. Archosaur adductor chamber evolution: integration of musculoskeletal and topological criteria in jaw muscle homology. J. Morphol. 268, 457–484 (2007).
  24. Reilly, S. M., McBrayer, L. D. & White, T. D. Prey processing in amniotes: biomechanical and behavioral patterns of food reduction. Comp. Biochem. Physiol. A Mol. Integr. Physiol. 128, 397–415 (2001).
  25. Fraser, N. C. The osteology and relationships of Clevosaurus(Reptilia: Sphenodontida). Philos. Trans. R. Soc. Lond. B Biol. Sci.321, 125–178 (1988).