Mostrando entradas con la etiqueta huellas. Mostrar todas las entradas

lunes, 30 de abril de 2018

¿Humanos extinguiendo otras especies? Me cuadra.


El ser humano provocando la extinción de otras especies, esta historia ya nos suena conocida ¿verdad? ¿Y si te digo que esta práctica no es para nada nueva? Pues la verdad, tampoco nos sorprenderíamos.

Resulta que según esta investigación publicada en Science, han descubierto que hace 10.000 años los humanos perseguían y cazaban a una especie de perezosos gigantes que habitan por aquellos años y que casualmente se extinguieron justo cuando Homo sapiens se estaba expandiendo por todo el planeta.
Con lo monos que son, ¿verdad?

Estas bestias (los perezosos digo) eran animales enormes de 3 metros de altura y unas cuantas toneladas de peso que no se caracterizaban por ser veloces precisamente, pero su gran tamaño y fuerza era un gran problema para todos aquellos bípedos que deseaban su carne. El primer ejemplar de esta especie descubierta fue hace relativamente poco, en 2010 (aunque no fue hasta 2017 que terminaron de sacar todos los huesos de este gigantesco animal), en Nuevo México (si quieres saber más te dejo aquí algo que te puede interesar).


¿Y cómo eran capaces los humanos de cazarlos? Pues, según la investigación llevada a cabo también en Nuevo México, concretamente en una gran playa de sal (lego seco) conocida como Alkali Flat. Durante la Edad de Hielo, esta zona estuvo ocupada por un lago, que a medida que la temperatura aumentaba, este iba desapareciendo. Los animales que por aquella época habitaban estas zonas dejaron, sin saberlo, sus huellas. Entre estos animales que caminaban por aquella zona se encuentran estos perezosos, humanos, pero también otros grandes animales como mamuts o camellos, y muchos de ellos se extinguieron al final de la Edad de Hielo, lo que no se tiene muy claro es si efectivamente como ahora, fue culpa del ser humano de antaño, o si se debió a otros motivos.

Estas huellas son notables y, a pesar de que están muy cerca de la superficie, se han conservado sorprendentemente bien, aunque solo se pueden ver cuando las condiciones climatológicas son favorables. Gracias a estas los investigadores han podido descifrar cómo es que los humanos cazaban a este tipo de animales con las herramientas tan rudimentarias que tenían ya que analizando estas huellas han encontrado un rastro muy particular:
Un grupo de huellas humanas han aparecido junto a huellas de los estos perezosos, además de encontrar círculos de huellas que, según los investigadores, indican que el perezoso se levantaba sobre sus patas traseras en forma de defensa contra estos cazadores, ya que estos círculos van siempre acompañados de huellas humanas. Además. analizando más ampliamente han llegado a la conclusión de que este enorme animal, normalmente se movía en línea recta, pero cuando sus huellas aparecían mezcladas con la de los humanos, estos mostraban cambios de dirección repentinos, como intentando despistar a sus acosadores.

Huellas encontradas en "el escenario del crímen"

Finalmente, juntando todas las piezas, se ve como estos animales presumiblemente eran distraídos por un cazador mientras que otro cazador le daba el golpe mortal en una parte vulnerable, como el corazón, la barriga, el cuello o los ojos.

No sabemos si realmente el ser humano fue el culpable de la extinción de estos y otros muchos animales de la Edad de Hielo o si fue el cambio climático (aunque a diferencia de ahora, no estaba provocada por el humano), pero lo que esta investigación deja claro, es que ya desde hace años, el ser humano se situaba por encima del resto de sus coetáneos.
Os dejo por aquí un vídeo sobre esta noticia (eso sí, solo para bilingües):
https://youtu.be/fkY5aWNomUs

Otras referencias:

http://www.lavanguardia.com/cultura/20180427/443057583542/humanos-pleistoceno-cazaban-grandes-bestias-megaterio-perezoso.html

https://www.efefuturo.com/noticia/caza-perezosos/

Y por si te interesa saber más sobre la masacre que llevamos cometiendo desde hace años, aquí te dejo una noticia interesante.

lunes, 2 de mayo de 2016

Siguiendo a Tyrannosaurus rex paso a paso.


Articulo: Sean D. Smith, W., Scott Persons IV,  Lida Xing (2016) A tyrannosaur trackway at Glenrock, Lance Formation (Maastrichtian), Wyoming. Cretaceous Research, Volume: 61 (pp. 1-4)


Como en las dos entradas anteriores hable sobre Tyrannosaurus rex, bien sobre su historia evolutiva o sobre su esperanza de vida, en esta penúltima entrada no podía hablar de otro tema. En esta ocasión os voy a hablar sobre los icnofósiles de estos dinosaurios, como a partir de sus huellas podemos calcular su velocidad entre otras cosas.
Fig.0:  Caricatura de T. rex caminando.

El historial de pistas de Tyrannosauridae es escaso, y únicamente se habían encontrado huellas aisladas (Lockley, M.G., Hunt, A.P., 1994) (Lockley, M.G. et al. 2004). Esta falta de información sobre los icnofósiles provoca un vacío en el estudio de la locomoción (Hutchinson JR., Garcia M., 2002) y del comportamiento de estos dinosaurios; cuyas hipótesis, exclusivamente, se han podido apoyar en el registro fósil. Por tanto para resolver este frustrante problema es de particular interés encontrar conjuntos de huellas que se puedan atribuir a Tyrannosauridae.

Los primeros conjuntos de huellas se encontraron en la Formación Wapiti (Fig.1), en el noreste de Columbia Británica, Canadá (McCrea, R.T., et al., 2014). Estas pistas pertenecen al Cretácico Superior (Campaniense superior- Maastrichtiense inferior). Se encontraron tres rastros, además de otras huellas individuales de otros dinosaurios. La litología se corresponde con arenisca de grano fino con contenido en arcilla y fragmentos de plantas carbonizadas. Seguramente la compactación de la arcilla fue un factor importante en la preservación de las huellas. Hay tres conjuntos de huellas (Fig.2). El rastro A, se compone de tres grandes huellas tridáctilas (Fig. 3), siendo III el más largo, y II ligeramente más corto que IV; y con la presencia de una garra del dedo gordo en una de las impresiones. Los otros dos rastros B y C, se componen de dos huellas cada uno. Se concluyó que las huellas pertenecen a tres individuos que se dirigían a la vez a la misma dirección, ya que la profundidad y la preservación de estas son iguales en todos los rastros. En esta investigación se descubrió un nuevo icnotaxón (el cual incluye un icnogénero y una icnoespecie): Bellatoripes fredlundi. 


Fig.1: Situación geográfica de la Formación Wapiti.


Fig.2: Los tres rastros de huellas. En el rastro A se ven dos huellas de un dinosaurio más pequeño. También se puede ver que los tres rastros son muy similares.
Fig.3: A la izquierda fotografía de los tres rastros, a la derecha rastro A, se puede ver la segunda huella ampliada en el centro.

En el caso del artículo del que os voy a hablar tenemos que trasladarnos al oeste de los Estados Unidos, a la Formación Lance (nombrada así por la población de Lance Creek, Wyoming). Se trata de una formación de rocas que datan del Cretácico Superior, más concretamente del Maastrichtiense. En esta Formación se han encontrado fósiles de microvertebrados y dinosaurios que representan componentes importantes de la fauna de finales del Mesozoico. Es equivalente a la Formación Hell Creek, en Montana y Dakota del Norte (Manning, P.L., Ott, C., Falkingham, P.L., 2008).  
Pero el estudio se centra más concretamente en la sección Glenrock,dos kilómetros al norte de la población de Glenrock, Wyoming. Posee 728 m. de espesor, y se trata de areniscas amarillas intercaladas con esquistos y lutitas. La capa que contiene la huellas que se van estudiar mide 300 mm. de espesor y se encuentra a 300 m. de la base de la Formación (Fig.4). A parte de este conjunto de huellas, en esta sección se pueden encontrar huellas que se atribuyen a Hadrosaurus y Ceratopsia.

Fig.4: A) Situación del rastro de huellas del estudio. B) Columna estratigráfica de la Formación Lance en la sección Glenrock, se puede ver la capa en la que se encuentran las huellas.
El rastro se compone de tres pistas tridáctilas. La primera vez que se descubrieron únicamente estaba al descubierto la primera huella, estando las otras dos enterradas en el sedimento. Por ello se puede interpretar que la disminución de la calidad y de la profundidad de estas dos últimas, en comparación con la primera, se deba a un incremento en la competencia del sustrato original de la huella y no por la erosión. 
Las tres huellas se interpretan como una sola vía: por la similitud en el tamaño, en la orientación y en el espacio entre ellas, además de la disposición: izquierda-derecha-izquierda. Aunque hay que mencionar que la segunda huella (derecha) no está exactamente en línea con las otras dos, pero está desplazada a la derecha, lo cual indica un modo concreto de andar. (Fig.5) 
Las características de las huellas son las siguientes (principalmente medidas y observadas en la primera pista):
- Longitud de la línea media son 470 mm.
- Entre la punta de II y de IV hay 370 mm.
- La profundidad de las huellas: 1ª 190 mm., 2ª 170 mm., 3ª 130 mm., progresivamente menos profundas.
- Los dígitos II, III y IV son aproximadamente igual de anchos.
- III es más largo que los otros dos.
- Todos los dígitos tienen la punta muy angulada (garras).
- Se puede ver la impresión de un talón redondeado. Y del dígito I, hallux posterior. (Fig.6)

Fig.5: A) Vía de pistas (izquierda-derecha-izquierda). B) Esquema de las tres huellas. C) Primera huella, se puede ver como el dígito III es más largo que los otros dos, y la impresión del dígito I (también se puede ver en el esquema B)

Fig.6: Garra de un dinosaurio perteneciente a Tyrannosauridae para ver la posición del dígito I.
Por las características observadas se asignan estas huellas a un terópodo. De los fósiles estudiados en la Formación Lance y otras de la misma edad (Cretácico Superior) del norte de América, los únicos terópodos lo suficientemente grandes para poder haber dejado esas huellas son: Tyrannosaurus rex y Nanotyrannus.
*Los moldes de látex de las pistas se almacenan en la colección de Glenrock Paleon Museum (número de catálogo: CPMtr01-03).

La estimación de la velocidad:

La relación que se ha obtenido entre la velocidad, la longitud de la zancada y el tamaño del cuerpo de animales que viven actualmente, sirve para   estimar la velocidad de los dinosaurios (las velocidades estimadas son bastantes bajas entre 1,0 y 3,6 m/s) (McNeill Alexander, R. 1976). 
La ecuación propuesta es V = 0,25 √𝑔 L1,67 H-1,7 siendo V la velocidad (m/s), L la longitud de la zancada, H la altura de la cadera, y g la aceleración (9,81 m/S2) Para estimar H.  McNeill Alexander llegó a la conclusión de que la altura de la cadera de un terópodo es generalmente cuatro veces la longitud de la línea media de la huella. 
Más recientemente se propone una ligera modificación para la fórmula de la estimación de la velocidad a partir de las huellas: V = 0,226 √𝑔 L1,67 H-1,7 Esta nueva ecuación deriva de un estudio realizado para humanos (Ruiz, J., Torices, A., 2013), por lo que puede que sea mejor para la estimación de la velocidad de taxones bípedos. También se propone un nuevo método para estimar H. (McCrea, R.T., et al., 2014): H = 29,8 (longitud de de la huella)0,711 Aunque el primer método (H = 4x la longitud de la línea media de la pista) es el más utilizado, es una estimación muy generalizada para Tyrannosauridae, ya que sus patas traseras son proporcionalmente más largas que las de la mayoría del resto de los terópodos que tienen un tamaño similar.
Sabiendo que la longitud de la línea media (longitud de la huella) de la primera pista es de 390 mm. y que la longitud de la zancada entre la primera y la tercera pista (midiendo de base del talón a base del talón) es de 3330 mm. Se obtienen los valores mostrados en la Fig.7:

Fig.7: Tabla en la que se recogen los valores de H y V dependiendo del método empleado.
La altura de la cadera de Tyrannosaurus rex excede los 2800 mm. (2,8 m.) en los adultos, por tanto de todos los fósiles de Tyrannosauridae de la Formación Lance, el género que más se aproxima al valor estimado es Nanotyrannus, 2120 mm. (2,12 m.). 
En conclusión: la huellas se pueden atribuir a Nanotyrannus lancensis (para aquellos que aceptan la validez del primer género), o bien a Tyrannosaurus rex (juvenil).

Otras estimaciones:
Según estimaciones anteriores de grandes terópodos (longitud de la huella >300 mm.) el intervalo de la velocidad está entre 1-3 m/s. (Rubilar-Rogers, D., et al. 2008), además de otros estudios.
En el estudio que os he descrito al principio (McCrea, R.T., et al., 2014) se estimó la velocidad de Tyrannosauridae entre 1,84 - 2,36 m/s. Del mismo modo, pero a partir de una sola huella aislada de Tyrannosauridae (Lockley, M.G. et al. 2004), se estableció una estimación para la velocidad 1,72 - 3,05 m/s. El intervalo de las velocidades son similares en todos los estudios, por tanto todos apoyan el argumento propuesto sobre que Tyrannosaurus rex son lentos, aunque los valores de la longitud de su zancada y velocidad son superiores a los de su presunta presa Hadrosaurus.

La razón por la cual Nanotyrannus es un género dudoso (nomen dubium), es porque se conocen pocos especímenes, por tanto estos podrían ser ejemplares juveniles de Tyrannosaurus rex. Aquellos que aceptan la validez del género se basan en ciertas diferencias entre ellos:
  • El número de dientes: Nanotyrannus presentaba más dientes en las mandíbulas superior e inferior que Tyrannosaurus rex (adulto).
  • La presencia de un pequeño foramen situado en la esquina superior del cráneo en Nanotyrannus, el cual no está presente en ningún T. rex adulto, ni ninguno de los ejemplares juveniles de este muestran un rasgo equivalente.

Espero que os haya parecido interesante el tema sobre las huellas de Tyrannosauridae, y toda la información que nos aportan sobre estos dinosaurios, además de este inciso que he querido hacer sobre la validez del género Nanotyrannus (tema que me llamo la atención cuando leí el artículo). Un saludo y hasta la próxima entrada.


Referencias:


domingo, 3 de abril de 2016

UN CAMINO SIN RESOLVER.

ARTÍCULO ORIGINAL: Novella L. Razzolini, Bernat Vila, Ignacio Díaz-Martínez, Phillip L. Manning & Ángel Galobart. 2016. Pes shape variation in an ornithopod dinosaur trackway (Lower
Cretaceous, NW Spain): New evidence of an antalgic gait in the fossil
track record. Cretaceous Research, 58: 125-134.

    ¡Hola de nuevo amigos!
    Espero que os haya gustado mi entrada anterior, acerca de las diferentes formas de locomoción de los dinosaurios. En esta entrada, me he centrado en las huellas dejadas por un organismo que vivió durante la era Mesozoica. Estas huellas son impresiones, debido al relieve negativo que presentan sobre el terreno. Como os habréis dado cuenta, mis dos publicaciones tratan de la forma de andar de los dinosaurios, y es básicamente porque ese mundo a mi me fascina, y me parece alucinante. Es increíble cómo a partir de una huella se puede saber que aspecto tenía el organismo que la generó.

    Os voy a poner en la situación ante la cual se encontraron un grupo de paleontólogos durante uno de sus viajes de exploración. Su nueva aventura tuvo lugar en Munilla, un municipio de La Rioja situado al NW de España,  concretamente en el yacimiento del Barranco de La Canal-1 (BLC1).
Figura 1. Las imágenes A y B representan el mapa geográfico y geológico del Barranco de La Canal-1, y el camino de huellas. La imagen C es una foto tomada en el camino, que muestra una visión general del rastro de huellas dejado por el organismo.
Este yacimiento se encuentra en la Cuenca de Cameros, que constituyó durante el Jurásico Superior y el Cretácico Inferior una cuenca extensional intraplaca, con un marcado carácter continental, situada en una posición intermedia entre las áreas deposicionales desarrolladas en los márgenes de la Placa Ibérica (Mas Mayoral et.al, 2011). Tras esta breve explicación de la zona, prosigo a narrar su historia. Se dispusieron a bajar una enorme cuesta y lo que se encontraron solo se puede describir con una palabra, IMPRESIONANTE. Allí abajo se podía ver una gran cantidad de huellas de todos los tamaños y formas. Este camino de huellas consta de 31 pisadas grandes consecutivas (Casanovas et.al, 1995) que debieron ser de un gran herbívoro que caminaba a dos patas. Estas huellas se encontraban preservadas sobre un afloramiento de limonitas de la unidad Valdeosera-Traguajantes, que forman parte de la parte superior del Grupo Enciso, donde predominan las areniscas, margas y limonitas (Hernández-Samaniego et.al, 1990). La morfología de estas huellas eran de un gran ornitópodo, en concreto son icnitas que se han clasificado dentro dentro del icnogénero Carichnium Lotus (Ignacio et.al, 2015). Cuando se acercaron para contemplarlas con mayor detalle, se dieron cuenta de que el paso de un pie era más corto que el del otro. ¿A qué se debe esta irregularidad?, ¿Podría ser que el dinosaurio estuviera cojo?, ¿La forma del pie sería esa? En un instante, demasiadas preguntas se les pasaron por la cabeza, así que después de seguir muestreando la zona fueron rápidamente a su estudio para analizarlo todo.                                       
¡Y COMENZARON SUS ESTUDIOS!.
    Para comenzar el análisis, realizaron un modelo digital 3-D de todo el camino BLC1, divido en 5 tramos en función de cambios en la anchura y curvatura del camino (Bates, 2008). 
Figura 2. Modelo digital del camino de huellas Barranco de la Canal-1. 

Con ayuda de la cámara de fotos Canon Power Shot S51S, tomaron una serie de fotos de las huellas , que se pueden apreciar en la primera columna de figura 3 (Mallison et.al, 2014), (Lockley et.al, 2015). Para adquirir mayores detalles, han elaborado un mapa en el que aparece representada en el eje de ordenadas la altura, con unos determinados colores en función de la altura, como puede verse en la segunda columna; y un mapa de isolineas con las alturas de la columna anterior, gracias al programa Paraview, que aparece representado en la tercera columna.
Figura 3. Huellas del pie derecho. BLC1.6, BLC1.8, BLC1.28 y BLC1.30.
Figura 4. Huellas del pie izquierdo. BLC1.7, BLC1.9, BLC1.11, y BLC1.29.

Una vez realizado el mapa de isolineas de cada huella, no se quedaron de brazos cruzados a la espera de un milagro, sino que se pusieron 
manos a la obra y empezaron a analizar cada una de ellas viendo su estructura.
En la figura 5, se puede ver  como se ha estructurado la huella, de tal forma que se puede medir el ángulo interdigital (IDA) y la anchura interdigital (IDW) de cada una de ellas. Y os preguntaréis qué es el ángulo y anchura interdigital. No os preocupéis, que a continuación os voy explicar brevemente cada uno de ellos. El ángulo interdigital es el ángulo medido entre los dedos contiguos de la icnita, o dicho de otra forma, es el ángulo de divergencia entre dos dedos adyacentes; mientras que la anchura interdigital es la máxima dimensión de la pisada medida ortogonalmente a la longitud de la pisada.
Figura 5. La imagen A representa el mapa de isolineas de la huella izquierda BLC1.9, con los dígitos IV, III y II; y la imagen B la huella derecha BLC1.30. La medida de la anchura interdigital (IDW II-III y IDW III-IV) se calcula trazando un segmento perpendicular (línea roja) a la línea que divide a la huella por la mitad (línea negra). Por otro lado, también se puede ver el ángulo interdigital entre los dígitos II y III (IDA II-III), y entre los dígitos III-IV (IDA III-IV).


    Después de un duro trabajo de recopilación de datos, llegó la hora de realizar las tablas con todas las medidas recopiladas. Realizaron una tabla para las huellas derechas y otra para las izquierdas. También se estimaron unas velocidades para cada tramo del camino: 1) 1.06 m/s; 2) 1.214 m/s; 3)1.371 m/s; 4) 1.209 m/s; 5) 0,998 m/s. (Alexander, 1976).


En la Tabla 1 se recogen todos los datos medidos de las 13 huellas derechas. Hemos tomado las medidas de los siguientes aspectos: longitud de la huella (TL); anchura de la huella (TW); longitud del paso (PL); longitud de la zancada (SL); ángulo interdigital entre los dedos II y III (IDA II-III); ángulo interdigital entre los dedos III y IV (IDA III-IV); anchura de la impresión de la almohadilla metarsodigital (DH); anchura del dedo II (DII); anchura del dedo III (DIII); anchura del dedo IV (DIV); el índice de anchura interdigital entre los dígitos II y III (IDW II-III); el índice de anchura interdigital entres los dígitos III y IV (IDW III-IV). Al final de la tabla, hay una fila dedicada para la media de cada una de las columnas. Las unidades de todas las medidas son centímetros, excepto los ángulos interdigitales que están en grados.


En la Tabla 2 se han realizado las mismas medidas que en la tabla anterior, solo que esta tabla es para las huellas izquierdas.


Y LOS RESULTADOS FUERON....
     Con ayuda de todo el material que recopilaron, han obtenido los siguientes resultados. Los modelos fotogramétricos que se llevaron a cabo en 25 de las 31 huellas, muestran una morfología que se ajusta al morfotipo propio del ornitópodo. Es mesaxónico, es decir, tiene el dígito medio alargado y forma el eje del pie; tridáctilo, con tres gruesos y anchos dedos generalmente simétricos (Félix, 2001), (Thulborn, 1990). Las huellas tienen una división cuatripartita correspondiente con la anotamía del pes (una almohadilla  por dígito y una subtriangular que rodea a la impresión de la almohadilla del dígito-metatarsal). La forma más común de las huellas es hexagonal. 
Analizando las tablas, la media de la longitud de la huella y la anchura va desde 41.3 a 41.7 cm y desde 38.1 a 40 cm respectivamente; la media de la longitud de la zancada es de 185 cm, tanto de la huella derecha como de la izquierda; y la media de la longitud del paso es de 94.5 cm. Sin embargo, el ritmo de paso es desigual, 98.3 cm es la longitud del paso derecha-izquierda; mientras que de izquierda-derecha es de 90.7 cm. Por lo tanto, la longitud del paso izquierdo es menor que el derecho. Otros aspectos que resaltan analizando todos estos datos son las claras diferencias morfológicas entre las huellas derechas e izquierdas: 
-Las huellas derechas tienen la impresión de los dígitos II y III orientados de forma subparalela (IDA con un rango de 28º-38º; IDW con un rango de 2.24-7.69 cm). Los máximos valores de anchura han sido registrados en la impresión del dígito- metatarsal, con un rango de 2.2-6.1 cm). Las impresiones de los dígitos II, III y IV tienen más o menos lamisma anchura (rango 1.5-5.6 cm).
-Las huellas izquierdas presentan la impresión del dígito-metatarsal lateralmente comprimida lateralmente y alargada, con una forma suboval. La impresión de los dígitos II y IV no se encuentran simétricamente dispuestas en torno al dígito III. La impresión dejada por el dígito II está más pronunciada que la dejada por el dígito IV. IDA II-III tiene un rango de 13º-24º; IDW II-III con un rango de 1.35-3.04 cm. El ángulo interdigital entre los dígitos III y IV es similar al de la huella derecha, IDA III-IV tiene un rango de 28º-42º; mientras que la anchura interdigital tiene un rango de 4.53-11.31 cm. 
    En resumen, el camino de huellas BLC1 muestra un 92% de irregularidades en la marcha del organismo (Lockley et.al, 1994), en el que un 8% corresponde a las diferencias entre los pasos consecutivos izquierdo-derecho (corto) y derecho-izquierdo (largo).


Y... ¡ POR FIN LLEGÓ LA HORA DEL ESPERADO DEBATE!
    Una vez analizado todos los datos, se pusieron a debatir sobre las causas de estas diferencias.
Lo primero que hicieron fue descartar la posibilidad de que el organismo hubiera estado acelerando y desacelerando su velocidad a lo largo del camino, debido a que en ellas no se aprecian significativas variaciones. Por lo tanto, se puede decir que la locomoción que tenía este ornitópodo era constante.
                                     VELOCIDAD 

Otro aspecto que descartaron fue que el terreno hubiera causado esta irregularidad en las huellas izquierdas. Las huellas se han preservado en una superficie homogénea, sometidas a unas condiciones de luz y erosión bastante uniform, por lo que han conservado muy bien su morfología con  el paso del tiempo.
                   TERRENO

La regularidad en sus pasos y el que realice una marcha estrecha, es decir, que entre cada paso haya una pequeña longitud, implica que es bípedo (Lockley et.al, 1994).
En las huellas izquierdas, se ha observado que la anchura interdigital entre los dígitos II-III es menor que la de las huellas derechas, haciendo que el dígito II esté más cerca de superponerse que del dígito III. Uno de los factores que puede causar esta patología puede ser debido a lesiones biomecánicas (Mcrea et.al, 2015), que son defectos debidos a daños físicos en el cuerpo, que afecten posiblemente al movimiento de desplazamiento, por lo que padezcan de cojera. Este factor fue el más apoyado por todos, y llegaron a la conclusión de que el organismo debió de llevar una marcha antiálgica, de modo que trataba de apoyarse lo menos posible en la extremidad lesionada (Harrington, 2005) acortándose el paso afectado por esta lesión y ampliándose el paso de la otra extremidad. 


LA DESPEDIDA...

    Espero que os haya parecido interesante mi segunda entrada, y hayáis disfrutado leyéndola. ¡HASTA LA PRÓXIMA AMIGOS ! 


REFERENCIAS:


lunes, 7 de marzo de 2016

VALE MÁS UNA HUELLA QUE MIL PALABRAS

Bueno siempre se está diciendo que no hay nada España, así que ya era hora, esta vez con la aparición de unas grandes huellas de aves de más de 10 cm de tamaño pertenecientes al Mioceno temprano, ¿no es impresionante? Pues a mí por lo menos me lo parece, ¿a quién no le gustaría encontrarse un día por el campo un fósil de este tamaño? Que gran hallazgo…bueno volviendo al tema os voy a explicar cómo son estas huellas y toda la controversia que ha existido en torno a ellas, que como ya veremos no es poco.

Artículo: Ignacio Díaz-Martínez, Oier Suárez-Hernando, Blanca María Martínez-García, Juan Cruz Larrasoaña, y Xabier Murelaga. First bird footprints from the lower Miocene Lerín Formation, Ebro Basin, Spain

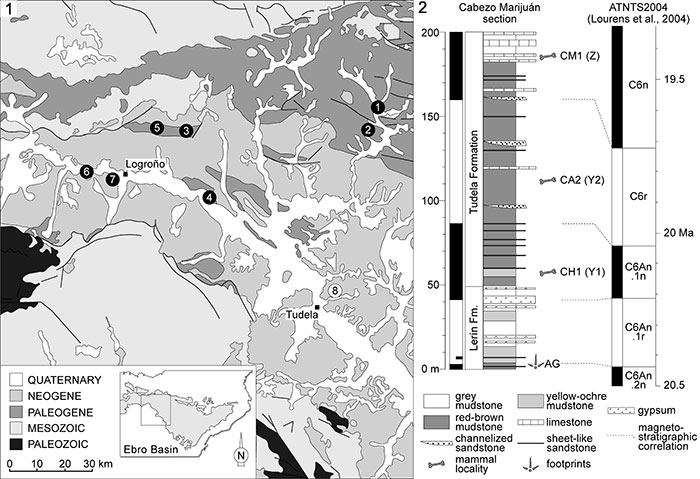
En los últimos veinte años se han hecho muchos descubrimientos de fósiles en la cuenca noreste del Ebro, de carnívoros, aves, huellas, etc. (López et al., 1992; Astibia et al.,2007; Díaz-Martínez et al., 2011, 2012, 2015). Un día un pastor encontró unos bloques de arenisca con unas grandes huellas en la zona de Aguilares (Figura 1), en el Parque Natural de Bardenas Reales en Navarra. Y resulto ser huellas de Uvaichnites riojana; unas huellas muy similares a las que se habían descrito en la cercana zona de Cenicero (Díaz-Martínez et al., 2012), aunque estas estaban mejor conservadas.

Figura 1

Figura 1.A la izquierda, las localizaciones de los emplazamientos de fósiles siendo: 1, Javier-Liédena; 2, Olejua; 3, Olkotz-Etaio; 4, Alcanadre; 5, Desojo-Los Arcos; 6, Cenicero; 7, Logroño; 8, Aguilares.

En cuanto a las características geológicas el área de huellas, en Aguilares, se encuentra en la cuenca del Ebro cenozoico. Estas huellas se han encontrado en bloques de arenisca de grano fino que pertenecen a la Formación Lerín, formado por unos 20 cm de sedimentos rojizos y esquistos de barro marrón, con intercalaciones de areniscas rojas. Estos restos aparecieron ex situ, y se habían erosionado de un afloramiento cercano de lutitas con una intercalación de una capa roja o naranja de areniscas, estas facies sugieren que entre los periodos de sedimentación de las areniscas debía haber una corriente de muy baja energía en una zona que sería una llanura de inundación. En estas roca no había fósiles de micromamíferos, por lo que la tasación de la fecha bioestratigráfica no era posible, pero gracias a las litologías superiores, formadas por yesos, y a las inferiores, que son una sección de Cabezo Marijuan dentro de la Formación Lerín y datos magnetoestratigráficos (Larrasoaña et al, 2006;..Ruiz-Sánchez et al, 2012) se estima que tienen una edad de 20,4 millones de años.

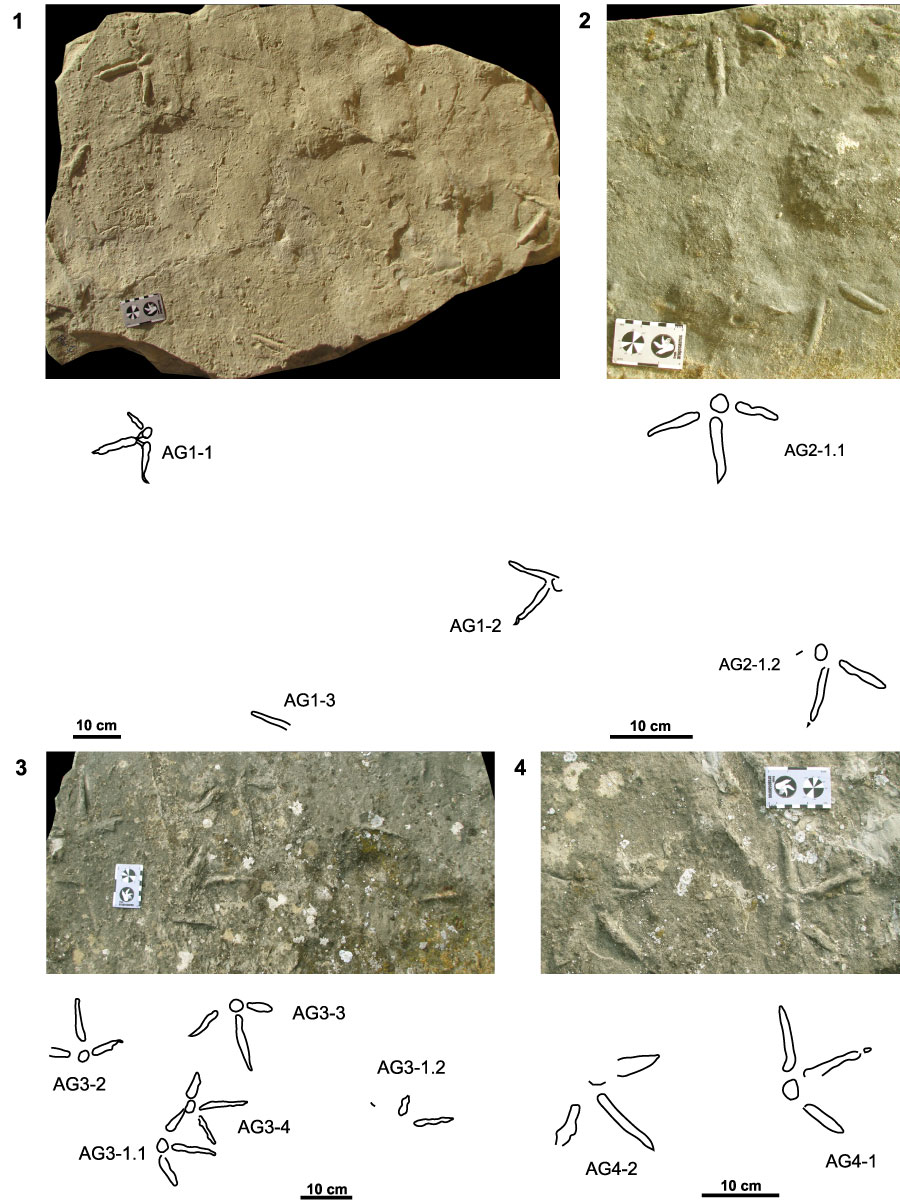
El material que se han encontrado un total de doce huellas de aves que se conservan convexas y que no presentan estructuras de erosión. En cuanto a la nomenclatura, las huellas se designan por la última convención (Casanovas et al, 1989; Pérez-Lorente.,2001) de esta forma: primero la identificación de las huellas, segundo el bloque en el que han sido encontradas y tercero la vía de la pista y el número de la huella. Por ejemplo AG2-2.2 es la primera huella de la vía I identificado en el segundo bloque de huellas de Aguilares (AG).

Figura 2

Figura 2. Las fotografías y bocetos de los bloques de las huellas de aves Aguilares. 1, bloque AG1; 2, bloque AG2; 3, bloque AG3; 4, bloque GA4.

En cuanto a las medidas (expuestas en la tabla 1) se utilizan las de trabajos anteriores (Pérez-Lorente, 2001; de Valis y Melchor, 2008; Díaz-Martínez et al, 2011), las cuales incluyen: la longitud de la huella (FL), el ancho de la huella (FW), la longitud y el ancho de la almohadilla central (cpLxW), la longitud del segundo digito (II), la longitud del tercer digito (III), la longitud del cuarto digito (IV), el ángulo entre el segundo y tercer digito (II^III), el ángulo entre el tercer y el cuarto digito (III^IV), la longitud entre el segundo y el cuarto digito (II^IV) y la longitud del paso (PL).  Algunos datos no se pudieron determinar y quedan algunos huecos en blanco.
Todas las medidas de longitud se expresan en milímetros y los ángulos en grados.

         
Florida
FW
cpLxW
II
III
IV
II III ^
III IV ^
II ^ IV
PL
AG1-1
136
174
30x20
62
94
80
60
66
126
-
AG1-2
130
-
25x-
-
98
80
-
70
-
-
AG1-3
-
-
-
-
-
-
-
-
-
-
AG2-1.1
121
164
25x25
58
90
70
68
70
138
-
AG2-1.2
120
-
25x20
-
90
78
-
76
-
400
AG3-1.1
123
157
24x28
50
92
72
58
58
116
-
AG3-1.2
124
-
-
44
86
-
58
-
-
470
AG3-2
154
178
28x30
55
112
78
74
76
150
-
AG3-3
140
-
25x26
66
95
-
63
63
126
-
AG3-4
124
156
20x22
55
94
70
61
67
128
-
AG4-1
125
190
20x25
65
92
82
58
78
136
-
AG4-2
-
172
-
60
100
-
59
72
131
-
Media
130
170
25x25
57
95
76
62
70
131
-

Tabla 1. Medidas sobre las huellas.

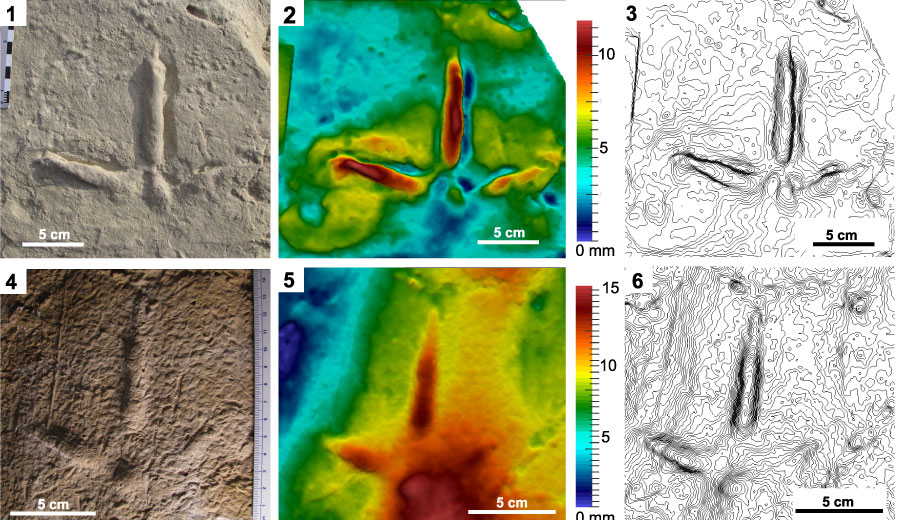
También se hicieron imágenes fotogramétricas (Falkingham, 2012; Mallison y Alas, 2014) (figura 3.1-6) utilizando AgisoftPhotoScanTM (versión 0.8.5.1423) de software (Grupo Aragosaurus, licencia de la Universidad de Zaragoza) para el holotipo (Apéndice  2.) y las huellas de AG (en concreto AG1-1) (Apéndice 1.), con el objetivo de ver mapas de profundidad y curvas de nivel.

figura 3

Figura 3.

Apéndice 1

Apéndice  1.

Apéndice 2

Apéndice 2.

En cuanto a este tema ha habido una discusión principal, que trata sobre las diferencias que existen entre las muestras descritas con anterioridad y las descritas en este trabajo. Las diferencias son: que las huellas de Uvaichnites riojana de Aguilares presentan marcas de garras bien conservados(figura 4,1-3), mientras que en las anteriores descripciones (Díaz-Martínez et al 2012) no se habían definido con exactitud (figura 3,4-6), ; también que la longitud del digito central es un 25% más largo que los laterales (Díaz-Martínez et al 2012), mientras que en las huellas de Aguilares, el digito central es un 25% más largo que el digito II, pero menos de un 25% que el digito IV; por ultimo en las huellas de Aguilares se han encontrado bien detallados restos de las almohadillas, no encontrados antes.


Figura 4. Impresiones de garras.

Conclusión:

Se ha encontrado una nueva zona de búsqueda icnológica, Aguilares localizada en el Parque Natural de Bardenas Reales de Navarra, en el sector  noroeste de la cuenca del Ebro. Las nuevas huellas encontradas se encuentran en cuatro bloques de areniscas procedentes de la parte superior de la Formación Lerín, con una edad aproximada de 20,4 millones de años (Mioceno inferior). Estas huellas pertenecen a Uvaichnites riojana, se conservan mucho mejor que el holotipo y tienen algunas diferencias ya citadas, por lo que se aceptan los cambios. Son de los pocos restos que quedan del Mioceno temprano en la península ibérica y son una aportan una gran cantidad de información icnológica y sobre la diversidad de aves de Península Ibérica.

El cual esperemos que siga creciendo…

Referencias:

Astibia, H., Pereda-Suberbiola, X., Payros, A., Murelaga, X., BERRETEAGA, A., Baceta, JI, y Badiola, A. 2007. huellas de aves y mamíferos del Terciario de Navarra (Pirineo Occidental ). Ichnos , 14: 175-184.

Casanovas, ML, Fernández, A., Pérez-Lorente, F., y Santafé Llopis, JV 1989. Huellas Fósiles de dinosaurios de la Rioja. El yacimiento de Valdecevillo, La Senoba y de la Virgen del Campo. Ciencias de la Tierra , 12: 1-190.

Díaz-Martínez, I., García Fernández, S., Hernández, JM, Murelaga, X., y Pérez-Lorente, F. 2011. icnitas de Aves y Mamíferos del Mioceno inferior de La Rioja (Cuenca del Ebro, España). Ameghiniana , 48: 139-153.

Díaz-Martínez, I., Hernández, JM, Fernández, SG, Murelaga, X., y Pérez-Lorente, F. 2012. Uvaichnites riojana : Un nuevo icnotaxón pájaro de la grúa-como desde el Mioceno inferior de La Rioja (Cuenca del Ebro, España). Actas de la Asociación de geólogos , 123: 464-470.

Díaz-Martínez, I., Suárez-Hernando, O., Martínez-García, B., Hernández, JM, Fernández, SG, Pérez-Lorente, F., y Murelaga, X. 2015. A principios del Mioceno aves playeras como huellas de la cuenca del Ebro, la Rioja, España:. paleoecological importancia y paleoambiental Palaios , 30: 424-431.

Larrasoaña, JC, Murelaga, X., y Garcés, M. 2006. Magnetobiochronology del Mioceno Inferior (Rambliense) sedimentos continentales de la formación Tudela (cuenca del Ebro occidental, España). Earth and Planetary Science Letters , 243: 409-423.

López, G., Mayoral, E., Muñoz, A., Pérez, A., y Santamaria, R. 1992. Nuevas icnitas de Mamíferos carnívoros en el Mioceno inferior del sector occidental de la depresión del Ebro (Logroño, La Rioja) . Revista de la Sociedad Geológica de España , 5: 1-2.

Mallison, H. y alas, O. 2014. La fotogrametría en la paleontología - una guía práctica. Diario de técnicas paleontológicas , 12: 1-31.

Pérez-Lorente, F. 2001. Paleoicnología. Los dinosaurios Y Sus Huellas en La Rioja . Fundación Patrimonio Paleontológico de La Rioja, La Rioja.

Ruiz-Sánchez, FJ, Murelaga, X., Freudenthal, M., JC Larrasoaña, Furió, M., Garcés, M., González-Pardo, M. y Suárez-Hernando, O. 2012. Los roedores e insectívoros de la Mioceno inferior (Agenian y Rambliense) de la Formación Tudela (Cuenca del Ebro, España). Journal of Iberian Geology , 38: 349-372.