Mostrando entradas con la etiqueta Cuaternario. Mostrar todas las entradas

martes, 21 de abril de 2020

¿A QUÉ SE DEBE LA DIVERSIDAD DE ESPECIES RARAS EN EL REINO PROTISTA?


Los océanos albergan comunidades de plancton constituidas por relativamente pocas especies que sean abundantes, y muchas de ellas son raras. El número de especies protistas raras en estas comunidades se ha estimado mediante estudios metagenómicos. Un estudio (Villa Martín et al. 2020) realizado por un grupo de científicos de la Universidad de Okinawa en Japón permite descubrir que las corrientes oceánicas impactan positivamente en la diversidad de estos microbios acuáticos raros.

El plancton oceánico puede ser transportado a través de grandes distancias por las corrientes. Muchas especies planctónicas son cosmopolitas, es decir, se encuentran prácticamente en todas partes del océano del mundo (B. J. Finlay. 2002). Estas observaciones sugieren que, a primera vista, la distribución de especies planctónicas no está limitada por la dispersión (hecho que se ha sido refutado) y que, por lo tanto, la preferencia del nicho (el nicho ecológico se refiere a la función, papel y respuesta que una especie animal o vegetal cumple en un hábitat teniendo en cuenta los factores bióticos (interacción con otras especies), factores abióticos (temperatura, pH, luz, etc) y factores antrópicos (hechos por el hombre)) es un factor determinante de la abundancia de especies. Sin embargo, la teoría del nicho predice la existencia de comunidades planctónicas pobres prosperando con un conjunto limitado de recursos.
Plancton oceánico
Una serie de observaciones muestran que las comunidades planctónicas son muy diversas y contradicen estas predicciones. Esta contradicción hacia los principios básicos de la teoría de nicho (G. Hardin. 1960) ha intrigado a los ecologistas durante décadas y ha fomentado numerosos estudios que intentan explicar la diversidad del plancton. Se han desarrollado varias propuestas:
  • Una de las propuestas se basa en que entornos variables ofrecen más posibilidades de especialización de los rasgos ecológicos (M. Stomp et al. 2011).
  • Otra propuesta propone la idea de que las corrientes oceánicas pueden crear barreras que reducen la competencia entre especies promoviendo su convivencia (A. Bracco et al. 2000).
  • Los análisis cuantitativos también sugieren que las corrientes oceánicas desempeñan un papel importante en la organización de patrones de diversidad a gran escala y esta limitación de dispersión contribuye, junto con la especialización de nicho, a la biodiversidad microbiana de los océanos (F. d’Ovidio et al. 2010).
Genealogía en corrientes oceánicas.
(izquierda) 
Diferentes colores representan diferentes especies. 
Las flechas representan el campo de velocidad 
causado por las corrientes oceánicas.
(derecha)
Trayectorias del modelo con corrientes oceánicas.
El metabarcoding de ADN (metasecuenciación dirigida de marcadores genéticos taxonómicamente informativos, que permite medir la biodiversidad de forma rápida, barata, exhaustiva, repetida y verificable) ha permitido llevar a cabo mediciones rápidas y a gran escala de la diversidad de las comunidades microbianas acuáticas, proporcionando nuevos medios para estudiar las fuerzas ecológicas que dan forma a las comunidades planctónicas. Los estudios de metabarcoding afirman también la existencia de esas especies raras dentro de las comunidades planctónicas; han sido llamadas como "biosfera rara", y constituyen la gran mayoría de las especies protistas. 

La diversidad de especies planctónicas se puede cuantificar mediante la llamada distribución de abundancia de especies (SAD), definida como la frecuencia (P(n)) de especies, con una abundancia n, de una muestra.

Los científicos que elaboraron este artículo, elaboraron un modelo que tuviera en cuenta el papel de las corrientes oceánicas en la determinación de la genealogía de microbios en una muestra para evaluar su efecto. Dicho modelo predecía que, en presencia de corrientes oceánicas, los SAD presentaban valores mayores. También predijeron que las corrientes causan un aumento más agudo de especies en función del tamaño de la muestra.

Plancton on Make a GIF

El conjunto de los resultados sugiere que la naturaleza caótica y variable del transporte oceánico es responsable del aumento de las curvas de SAD. Los SAD de protistas son más empinados en los océanos que en el agua dulce. Para probar esas predicciones, se analizaron datos de metabarcoding de ADN de dos estudios de protistas acuáticos: 
  • El primer conjunto de datos incluye secuencias de ADN protista oceánico de 157 muestras (E. Ser-Giacomi et al. 2018).
  • El segundo conjunto de datos incluye secuencias de ADN protista de 184 muestras de agua dulce tomadas de lagos.
Las curvas de SAD enseñan una variabilidad considerable de muestra a muestra, tanto en el océano como en agua dulce. Sacaron como conclusión que esta variabilidad se podía deber posiblemente a diferencias de tamaño, composición de la comunidad protista y condiciones ecológicas entre las muestras.

Distribuciones de abundancia de especies raras de protistas, que presentan 
una disminución más pronunciada en los océanos que en los lagos.
Algo que quedo muy claro es que las corrientes oceánicas conducen a un aumento más pronunciado en el número de especies protistas.

Para concluir me gustaría reflejar lo interesante que puede llegar a ser el océano, con tanta diversidad de especies y fenómenos ocurriendo en él continuamente. Es fascinante.


He aquí mi cuarta entrada en el blog. Espero que os haya resultado sugerente y entretenida. ¡Nos leemos pronto! 😊


BIBLIOGRAFÍA:

Artículo original:

Paula Villa Martín, Ales Bucek, Tom Bourguignon, Simone Pigolotti. Ocean currents promote rare species diversity in protists. BioRxiv. (2020) DOI: https://doi.org/10.1101/2020.01.10.901165

Otras fuentes de información:

B. J. Finlay, Global dispersal of free-living microbial eukaryote species. Science 296, 1061–1063 (2002). DOI: 10.1126/science.1070710. 

G. Hardin, The competitive exclusion principle. Science 131, 1292–1297 (1960). DOI: https://www.jstor.org/stable/1705965?seq=1

M. Stomp, J. Huisman, G. G. Mittelbach, E. Litchman, C. A. Klausmeier, Large-scale biodiversity patterns in freshwater phytoplankton. Ecology 92, 2096–2107 (2011). DOI: https://doi.org/10.1890/10-1023.1

A. Bracco, A. Provenzale, I. Scheuring, Mesoscale vortices and the paradox of the plankton. Proceedings of the Royal Society of London. Series B: Biological Sciences 267, 1795–1800 (2000). DOI: https://doi.org/10.1098/rspb.2000.1212

F. d’Ovidio, S. De Monte, S. Alvain, Y. Dandonneau, M. Lévy, Fluid dynamical niches of phytoplankton types. Proceedings of the National Academy of Sciences 107, 18366–18370 (2010). DOI: https://doi.org/10.1073/pnas.1004620107

E. Ser-Giacomi, L. Zinger, S. Malviya, C. De Vargas, E. Karsenti, C. Bowler, S. De Monte, Ubiquitous abundance distribution of non-dominant plankton across the global ocean. Nature ecology & evolution p. 1 (2018). DOI: https://www.nature.com/articles/s41559-018-0587-2

domingo, 10 de marzo de 2019

De descubrimiento en descubrimiento


Bienvenidos de nuevo al lugar donde seguir satisfaciendo vuestra curiosidad. Hoy, como habréis podido deducir por el (nada revelador) título, os voy a contar acerca de animales que ahora mismo no nos creeríamos que llegaron a existir alguna vez, pues se trata de una especie nueva. En mi último post os hablé de una especie reptil nueva encontrada en Argentina, América. Esta vez nos movemos geográficamente a un continente distinto: Europa. Los restos fósiles de esta nueva especie, denominada Ophisaurus manchenioi, han sido encontrados en Abanilla, localizada en la Región de Murcia, España (Europa).

Esta especie recibe su nombre “Ophisaurus” de su pertenencia a dicho género y “manchenioi” del paleontólogo de la Universidad de Murcia, Miguel Ángel Mancheño, pues el hallazgo ha sido dedicado a él. Los restos fósiles encontrados en los yacimientos de Quibas, en el municipio de Abanilla de la Región de Murcia han sido un maxilar, tres mandíbulas, dos parietales, vértebras y un osteodermo. Este último queda definido como la placa ósea que se encuentra en la piel o escama de los animales. Los parietales han sido las piezas que han permitido a los paleontólogos diferenciar esta especie de otras del mismo género.


Figura 1. Restos fósiles de la mandíbula o dentario izquierdo de la especie Ophisaurus manchenioi, encontrada en Abanilla. Foto tomada por el Instituto Catalán dePaleoecología Humana y Evolución Social (IPHES)


Figura 2. Restos fósiles de la vértebra dorsal perteneciente a la especie Ophisaurus manchenioi, encontrada en Abanilla, Murcia. Foto tomada por el Instituto Catalán de Paleoecología Humana y Evolución Social (IPHES)

Este hallazgo lo ha llevado a cabo el Instituto Catalán de Paleoecología Humana y Evolución Social (IPHES) en colaboración con el Museo Nacional de Historia Natural de París (MNHN), y han publicado sus resultados en la revista "Palaeogeography, Palaeoclimatology, Palaeoecology". Dicho artículo actualmente se encuentra disponible digitalmente y no lo encontraremos en papel hasta abril de este año 2019, donde se dispondrá en el volumen 520 de la revista, en las páginas 96-113.

Esta nueva especie, caracterizada como un lagarto desarticulado de 40 centímetros de longitud de la familia Anguidae, se ubica temporalmente en la transición del Pleistoceno Temprano-Medio de la Sierra de Quibas. El Pleistoceno es una época dentro del periodo del Cuaternario en la Era del Cenozoico, que tuvo lugar desde hace 2,59 millones de años hasta hace 10.000 años. Fue definido por el tamaño de las especies de moluscos y crustáceos aún vivos y estaba caracterizado por sistemas glaciares.

La especie Ophisaurus sigue existiendo actualmente en zonas subtropicales en América del Norte, África del Norte y el Sudeste Asiático. Sin embargo, esta nueva especie es el fósil más antiguo encontrado en Europa. Se cree que la causa de la desaparición del Ophisaurus manchenioi es la glaciación extensa que tuvo lugar en la transición entre el Pleistoceno Temprano y el Pleistoceno Medio, cubriendo mayoritariamente los polos del planeta, las zonas más al norte de América y Asia y Europa. Las condiciones climáticas se vieron modificadas, cambiando a su vez los biomas del planeta. Este animal era especialista de los biomas de bosque húmedo subtropical, propio de las zonas subtropicales. Estas desaparecieron en esas localizaciones más afectadas por la glaciación y el Ophisaurus manchenioi fue incapaz de adaptarse a las nuevas condiciones, resultándole así imposible sobrevivir. Sin embargo, otras especies del género Ophisaurus con capacidades adaptativas más desarrolladas y que habitaban lugares más cercanos al ecuador han conseguido perdurar hasta nuestros días.


Figura 3. Ophisaurus actual de Marruecos, físicamente similar al prehistórico de Abanilla, Región de Murcia, España.

Esta especie ha sido descubierta en esta ubicación debido a su localización geográfica. El sur de la Península Ibérica fue una zona que no se vio fuertemente afectada por la caída notoria de las temperaturas en el planeta, por lo que dicha especie fue aquí donde buscó refugio. Consiguió sobrevivir durante mucho tiempo, hasta hace 1 millón de años, cuando terminó extinguiéndose.

Podemos ver que constantemente se están descubriendo especies desconocidas hasta el momento. El número que conocemos de especies es ya extenso. Sin embargo, son muchas más las que quedan aún por revelar. ¿Qué nuevos descubrimientos habrá más? Lo veremos en mi próxima entrada. ¡Hasta pronto!


REFERENCIAS

Hugues-Alexandre Blain, Salvador Bailon. 2019. Extirpation of Ophisaurus (Anlguimorpha, Anguidae) in Western Europe in the context of the disappearance of subtropical ecosystems at the Early-Middle Pleistocene transition. Sience direct: Palaeogeography, Palaeoclimatology, Palaeoecology.

lunes, 26 de febrero de 2018

¡Cámbienme la momia, ésta tiene una mosca!

Un buen paleontólogo (¡un buen científico!) ha de fijarse en los detalles. Pues son precisamente los más mínimos detalles de los grandes hallazgos científicos los que pueden ser de mayor importancia, y no siempre se tienen en cuenta.
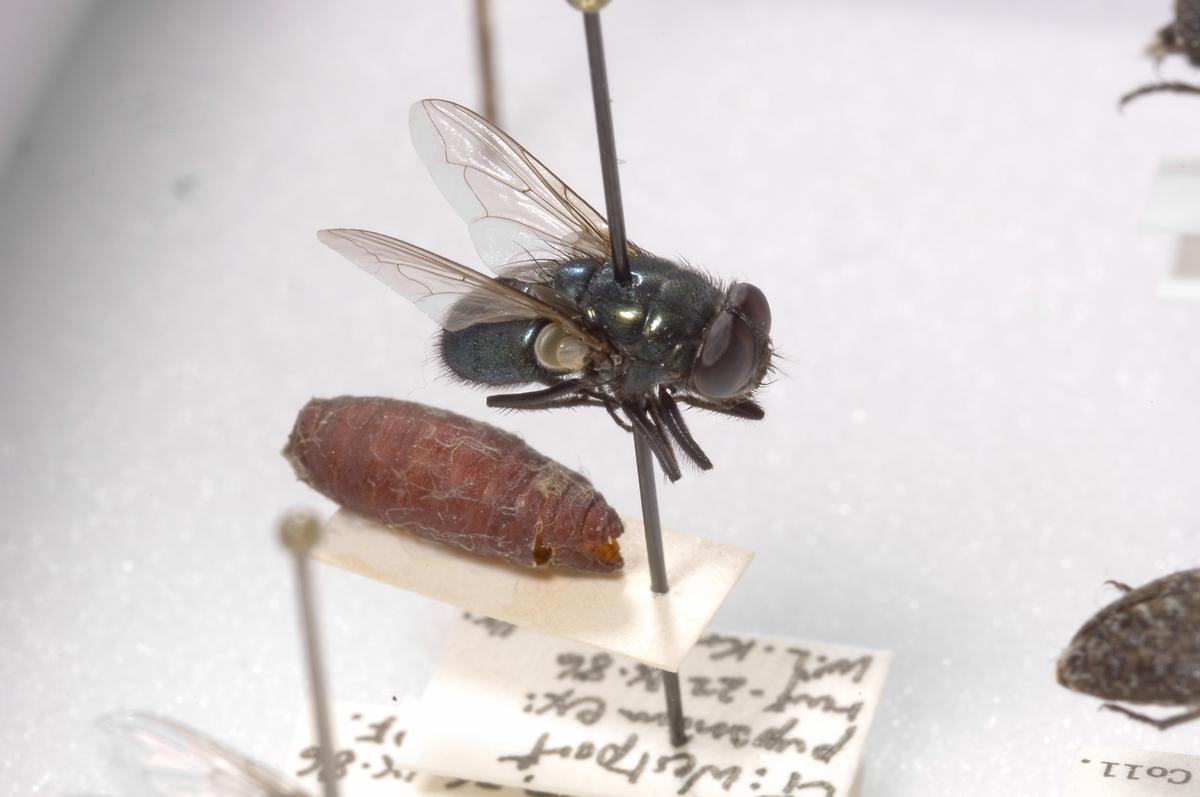
De estos detalles precisamente se van a ocupar mis publicaciones, inspirado por el trabajo de unos científicos italianos (First record of Phormia regina(Meigen, 1826) (Diptera: Calliphoridae) from mummies at the Sant’Antonio Abate Cathedral of Castelsardo, Sardinia, Italy) que encontraron, en unas momias del siglo XVIII, en la cripta de una iglesia de Cerdeña, pupas de Phormia regina,  una especie de mosca que no existe en la actualidad en la isla. Gracias a este repentino hallazgo de las cápsulas de los dípteros, se ha podido, mediante las técnicas de la llamada “Entomología forense”, contar la historia de las muertes de los sujetos en cuestión, y mediante la paleobiogeografía, trazar la pasada distribución de uno de los insectos con mayor representación en Europa.

Y una vez más, gracias a un repentino hallazgo, ahora el del artículo de G.Giordani, F.Tuccia, I. Floris y S.Vanin por mi parte, puedo explicar una serie de casos en paleontología en los que se han descubierto cosas fascinantes poniendo la atención en lo más aparentemente aleatorio o incluso reciente, comparando los casos de mi estudio con el registro fósil.

Momias en paleontología.


Las momias que se han encontrado de la gran fauna pleistocénica se pueden considerar famosas incluso, ya que con estas momias de Mammuthus primigenius, Coelodonta antiquitatis o Bison priscus se ha considerado la posibilidad de la clonación y reintroducción de estos y otros elementos emblemáticos de la megafauna de la última glaciación en ambientes aislados, ya que se ha llegado a postular que su desaparición fue a causa de la caza intensiva por parte de nuestros parientes lejanos de entonces. Y es que precisamente estas momias, como han sufrido procesos de fosilización natural, es decir, en la mayoría de los casos, congelación rápida y posterior secado lento, conservan aún mucha información aparte del espécimen en sí: tierra, polen, parásitos... que son muy interesante para aprender acerca de la biología de las especies halladas, pero también de su ecología, etología, y hasta para poder establecer un marco más global, sirviendo como datos en investigaciones de paleoclimática, por ejemplo.
También se consideran momias en muchas fuentes, sin serlo realmente, los casos, contables y contados, de fosilización de tejido blando, que ha dado lugar a la conservación de órganos, escamas, plumas y demás estructuras poco conocidas de los dinosaurios; por lo que estos especímenes son muy valiosos (tanto, que habrá que dedicarles un post aparte…).

 Uno de los casos más interesantes es el de la Paleoparasitología, no como ciencia pura, sino como lo que nos ha ayudado a comprender del pasado de nuestro planeta en cuanto a vidas animales, vegetales e incluso humanas. La paleoparasitología es un sector incipiente de la paleontología: los exoparásitos (es decir, parásitos externos) no se conservan, salvo en muy raros y contados casos, en el proceso de fosilización, y los endoparásitos solo  han podido ser estudiados en material primitivo no fosilizado: en momias.

Casos concretos, de lo más sorprendentes.


Muchos son los trabajos que han descrito hallazgos increíbles e insospechados en las momias animales halladas; pero por poner algún ejemplo para fundamentar el artículo, yo destacaría el hallazgo de pupas de Protophormia terraenovae en momias degrandes mamíferos hallados en Bélgica. Gracias a el hallazgo de las moscas en los especímenes se ha podido saber mucho más: se ha podido conocer con precisión cuánto tiempo estuvieron los animales muertos antes de ser congelados y enterrados, y se ha podido establecer, en base al desarrollo de las pupas, que la muerte de los especímenes tuvo que darse a finales del invierno, comienzos de la primavera.
Otro hallazgo insospechado, y un poco menos agradable, es el hallazgo en un yacimiento de permafrost en Alaska, en el que se encuentran también más animales momificados, una pila de haces congeladas de mamut. Este hallazgo ha supuesto un avance en el conocimiento de la biología y ecología de Mammuthus primigeniu.  El estudio de esas heces ha llegado a proponer la teoría, pendiente de demostración por  la ausencia de especímenes como este, que los mamuts practicaban la coprofagia, es decir, comían heces. Esto se ha comprobado gracias a la exanimación del –espécimen de naturaleza escatológica- al microscopio: se han podido ver esporocarpos del hongo Podospora conica hongo coprofílico, es decir que se desarrolla en las heces. Más especulaciones del trabajo americano-holandés señala a que las heces consumidas por el mamut carecen de ácido biliar, por lo que sería seguramente de otro mamut.

¿Hacia qué se van a orientar las siguientes publicaciones?


El sector de las momias en la paleontología está poco trabajado, debido principalmente a que, aunque ya se han encontrado bastante especímenes, son todos de una época muy reciente, de hecho, ya convivían seguramente alguno de los animales momificados que conservan los grandes museos del mundo, con el Homo sapiens. Una vez se investiga sobre el tema, se encuentra que tienen una gran importancia en el estudio del Cuaternario.

Esta serie de publicaciones tendrán como tema el divulgar acerca de los detalles de las momias que han sido estudiadas por la paleontología, tanto de grandes vertebrados como de las pequeñas pulgas que estos pueden contener en su pelaje… También le dedicaremos contenido a las “momias honoríficas” que antes he mencionado, a los casos de fosilización excepcional de dinosaurios: de pieles de individuos, o de más tejidos blandos. Otro sector de estudio insospechado para la paleontología (contradictorio incluso) son momias humanas, tanto prehistóricas como históricas: pues hay en muchos casos en los que los arqueólogos han tenido que derivar sus investigaciones  en paleontólogos, por que han encontrado argumentos para estudios de paleoclimatología, paleobiogeografía e incluso paleomedicina.

Bibliografía:


  • Acs, Peter, et al. “Remains of grasses found with the Neolithic Iceman "Ötzi".” SpringerLink, Springer-Verlag, 14 Sept. 2005, link.springer.com/article/10.1007/s00334-005-0014-x.
  • Arthur, Wallace. “How to make a fossil.” Evolving Animals, 2001, pp. 25–34., doi:10.1017/cbo9781107279117.004.
  • BOESKOROV, Gennady G., et al. “Preliminary analyses of the frozen mummies of mammoth (Mammuthus primigenius), bison (Bison priscus) and horse (Equus sp.) from the Yana‐Indigirka Lowland, Yakutia, Russia.” Integrative Zoology, 18 Sept. 2014, onlinelibrary.wiley.com/doi/10.1111/1749-4877.12079/full.
  • Brown, Caleb M. “An exceptionally preserved armored dinosaur reveals the morphology and allometry of osteoderms and their horny epidermal coverings.” PeerJ, vol. 5, 2017, doi:10.7717/peerj.4066.
  • Gautier, A., and H. Schumann. “Puparia of the subarctic or black blowfly protophormia terraenovae (Robineau-Desvoidy, 1830) in a skull of a Late Eemian (?) bison at Zemst, Brabant (Belgium).” Palaeogeography, Palaeoclimatology, Palaeoecology, vol. 14, no. 2, 1973, pp. 119–125., doi:10.1016/0031-0182(73)90007-2.
  • Geel, Bas Van, et al. “Mycological evidence of coprophagy from the feces of an Alaskan Late Glacial mammoth.” Quaternary Science Reviews, vol. 30, no. 17-18, 2011, pp. 2289–2303., doi:10.1016/j.quascirev.2010.03.008.
  • Germonpré, Mietje , and Marcel Leclerq. “Des pupes de Protophormia terraenovae associées à des mammifères pléistocènes de la Vallée flamande (Belgique).” ResearchGate, 1994.
  • Giordani, Giorgia, et al. “First record of Phormia regina (Meigen, 1826) (Diptera: Calliphoridae) from mummies at the Sant’Antonio Abate Cathedral of Castelsardo, Sardinia, Italy.” PeerJ, vol. 6, Apr. 2018, doi:10.7717/peerj.4176.
  • Guthrie, R. Dale, and Samuel Stoker. “Paleoecological Significance of Mummified Remains of Pleistocene Horses from the North Slope of the Brooks Range, Alaska.” Arctic, vol. 43, no. 3, Jan. 1990, doi:10.14430/arctic1621.
  • Rodríguez, Héctor, et al. “ANÁLISIS PALEOPARASITOLÓGICO DE LA MUSCULATURA ESQUELÉTICA DE LA MOMIA DEL CERRO EL PLOMO, CHILE: TRICHINELLA SP.” Chungará (Arica), Universidad de Tarapacá. Facultad de Ciencias Sociales y Jurídicas. Departamento de Antropología, scielo.conicyt.cl/scielo.php?pid=S0717-73562011000300013&script=sci_arttext&tlng=en.
  • Rodríguez, Héctor, et al. “ANÁLISIS PALEOPARASITOLÓGICO DE LA MUSCULATURA ESQUELÉTICA DE LA MOMIA DEL CERRO EL PLOMO, CHILE: TRICHINELLA SP.” Chungará (Arica), Universidad de Tarapacá. Facultad de Ciencias Sociales y Jurídicas. Departamento de Antropología, scielo.conicyt.cl/scielo.php?pid=S0717-73562011000300013&script=sci_arttext&tlng=en.
Acs, Peter, et al. “Remains of grasses found with the Neolithic Iceman "Ötzi".” SpringerLink, Springer-Verlag, 14 Sept. 2005, link.springer.com/article/10.1007/s00334-005-0014-x.
Arthur, Wallace. “How to make a fossil.” Evolving Animals, 2001, pp. 25–34., doi:10.1017/cbo9781107279117.004.
BOESKOROV, Gennady G., et al. “Preliminary analyses of the frozen mummies of mammoth (Mammuthus primigenius), bison (Bison priscus) and horse (Equus sp.) from the Yana‐Indigirka Lowland, Yakutia, Russia.” Integrative Zoology, 18 Sept. 2014, onlinelibrary.wiley.com/doi/10.1111/1749-4877.12079/full.
Brown, Caleb M. “An exceptionally preserved armored dinosaur reveals the morphology and allometry of osteoderms and their horny epidermal coverings.” PeerJ, vol. 5, 2017, doi:10.7717/peerj.4066.
Gautier, A., and H. Schumann. “Puparia of the subarctic or black blowfly protophormia terraenovae (Robineau-Desvoidy, 1830) in a skull of a Late Eemian (?) bison at Zemst, Brabant (Belgium).” Palaeogeography, Palaeoclimatology, Palaeoecology, vol. 14, no. 2, 1973, pp. 119–125., doi:10.1016/0031-0182(73)90007-2.
Geel, Bas Van, et al. “Mycological evidence of coprophagy from the feces of an Alaskan Late Glacial mammoth.” Quaternary Science Reviews, vol. 30, no. 17-18, 2011, pp. 2289–2303., doi:10.1016/j.quascirev.2010.03.008.
Germonpré, Mietje , and Marcel Leclerq. “Des pupes de Protophormia terraenovae associées à des mammifères pléistocènes de la Vallée flamande (Belgique).” ResearchGate, 1994.
Giordani, Giorgia, et al. “First record of Phormia regina (Meigen, 1826) (Diptera: Calliphoridae) from mummies at the Sant’Antonio Abate Cathedral of Castelsardo, Sardinia, Italy.” PeerJ, vol. 6, Apr. 2018, doi:10.7717/peerj.4176.
Guthrie, R. Dale, and Samuel Stoker. “Paleoecological Significance of Mummified Remains of Pleistocene Horses from the North Slope of the Brooks Range, Alaska.” Arctic, vol. 43, no. 3, Jan. 1990, doi:10.14430/arctic1621.
Rodríguez, Héctor, et al. “ANÁLISIS PALEOPARASITOLÓGICO DE LA MUSCULATURA ESQUELÉTICA DE LA MOMIA DEL CERRO EL PLOMO, CHILE: TRICHINELLA SP.” Chungará (Arica), Universidad de Tarapacá. Facultad de Ciencias Sociales y Jurídicas. Departamento de Antropología, scielo.conicyt.cl/scielo.php?pid=S0717-73562011000300013&script=sci_arttext&tlng=en.
Acs, Peter, et al. “Remains of grasses found with the Neolithic Iceman "Ötzi".” SpringerLink, Springer-Verlag, 14 Sept. 2005, link.springer.com/article/10.1007/s00334-005-0014-x.
Arthur, Wallace. “How to make a fossil.” Evolving Animals, 2001, pp. 25–34., doi:10.1017/cbo9781107279117.004.
BOESKOROV, Gennady G., et al. “Preliminary analyses of the frozen mummies of mammoth (Mammuthus primigenius), bison (Bison priscus) and horse (Equus sp.) from the Yana‐Indigirka Lowland, Yakutia, Russia.” Integrative Zoology, 18 Sept. 2014, onlinelibrary.wiley.com/doi/10.1111/1749-4877.12079/full.
Brown, Caleb M. “An exceptionally preserved armored dinosaur reveals the morphology and allometry of osteoderms and their horny epidermal coverings.” PeerJ, vol. 5, 2017, doi:10.7717/peerj.4066.
Gautier, A., and H. Schumann. “Puparia of the subarctic or black blowfly protophormia terraenovae (Robineau-Desvoidy, 1830) in a skull of a Late Eemian (?) bison at Zemst, Brabant (Belgium).” Palaeogeography, Palaeoclimatology, Palaeoecology, vol. 14, no. 2, 1973, pp. 119–125., doi:10.1016/0031-0182(73)90007-2.
Geel, Bas Van, et al. “Mycological evidence of coprophagy from the feces of an Alaskan Late Glacial mammoth.” Quaternary Science Reviews, vol. 30, no. 17-18, 2011, pp. 2289–2303., doi:10.1016/j.quascirev.2010.03.008.
Germonpré, Mietje , and Marcel Leclerq. “Des pupes de Protophormia terraenovae associées à des mammifères pléistocènes de la Vallée flamande (Belgique).” ResearchGate, 1994.
Giordani, Giorgia, et al. “First record of Phormia regina (Meigen, 1826) (Diptera: Calliphoridae) from mummies at the Sant’Antonio Abate Cathedral of Castelsardo, Sardinia, Italy.” PeerJ, vol. 6, Apr. 2018, doi:10.7717/peerj.4176.
Guthrie, R. Dale, and Samuel Stoker. “Paleoecological Significance of Mummified Remains of Pleistocene Horses from the North Slope of the Brooks Range, Alaska.” Arctic, vol. 43, no. 3, Jan. 1990, doi:10.14430/arctic1621.

lunes, 2 de mayo de 2016

Las consecuencias de la llegada de los humanos al paraíso 

Muy buenas tardes blogeros, en mi artículo de hoy os hablaré del papel de los humanos en las extinciones de la fauna en las Antillas Menores. Este artículo tiene una relación bastante estrecha con mi primera entrada en este blog. Ya que nos enfrentamos a la problemática de la colonización por parte de los humanos y su importancia en la extinción de diversas especies de anfibios, reptiles, aves o mamíferos.

Artículo principal:

Evidence for historical human-induced extinctions of vertebrate species on La Désirade (French West Indies) - Myriam Boudadi-Malign  Salvador Bailon,  Corentin Bochaton,  Fabrice Casagrande,  Sandrine Grouard,  Nathalie Serrand,  Arnaud Lenoble. Quaternary Research Volume 85, Issue 1, January 2016, Pages 54–65

Además las Antillas es uno de los 34 puntos calientes de biodiversidad en el mundo con lo que es un objetivo de estudio muy interesante.
Fig.1 Mapa de las Antillas Menores

Para estos estudios se utilizarán los hallazgos encontrados en contextos kársticos (Pregill et al., 1994) en los que es fácil que se conserven los restos fósiles que nos ayudarán a estudiar la fauna de tiempos anteriores a la colonización humana.
Apoyándonos en los análisis de los huesos encontrados en esta isla,  podremos concluir haciendo una combinación de los datos sedimentarios, paleontológicos y arqueológicos que nos permitan apoyar que la extinción local de estas especies está asociada a la colonización europea de la isla (allá por el siglo XVIII).

 Y gracias a  la comparación de los datos obtenidos con la historia económica de la isla en cuestión, nos permitirá investigar los factores ambientales  que han conducido a la extinción de varias especies terrestres en esta pequeña isla que es La Désirade

Fig.2 Localización de La Désirade en las Antillas Menores

Se encontraron evidencias de la presencia de tribus precolombinas pero su estancia no produjo grandes cambios en el ecosistema, sin embargo la llegada de los primeros colono a la isla vecina (Guadalupe) en 1728 significo el comienzo de una era de explotación ambiental de la zona. La población nunca fue muy elevada debido a la escasez de recursos económicos y la mala calidad del suelo (Barbotin, 2010). La Désirade se compone de un basamento mesozoico con rocas de origen volcánico, plutónico y rocas siliciclásticas coronadas por calizas del Cenozoico. La zona litoral está bordeado por calizas del Pleistoceno  las cuales formar las terrazas marinas más jóvenes. Además son en las que nos encontraremos esos paisajes kársticos en los que se conservan los fósiles (Harris et al., 1995).

La sima 6 en Pointe Gros Rempart es un lugar de fácil acceso y que a la vez protege muy bien los elementos fósiles de su interior ante la meteorización, lo que hace de ella un interesante lugar para el estudio.

El trabajo de campo fue llevado a cabo en noviembre de 2011 y consistía en la exploración de materiales arqueológicos y paleontológicos en un metro cuadrado.

Se distinguieron 4 unidades estratigráficas:
  1. La primera capa  consistía en arcillas y limos con poca o casi ningún canto o grava, contenía material arqueológico de la época colonial, además de fósiles de rata, cabra y cerdo, es decir, animales introducidos por los humanos.
  2. La segunda capa compuesta por cantos de roca caliza contenía restos de algunos gasterópodos, además de madriguera de cangrejos de río y ermitaños. El material arqueológico data esta capa hacia finales del siglo XVIII debido a algunos materiales encontrados. En esta capa encontramos caracoles terrestres y restos de aves.
  3. La tercera capa destaca por su color marrón con tubos hechos por larvas, destaca la presencia de peces de arrecife, se encuentran incluso algunas vertebras y huesos quemados. Una cesta encontrada sugiere que esta capa tendría una edad Amerindia y junto a la datación de carbono indica que esta capa se deposito casi 1000 años antes de la colonización europea.
  4. La cuarta capa esta constituida por limos y arcillas, se encuentra directamente sobre el sustrato rocoso y aporta poca información paleontológica y arqueológica.
Fig.3 Imagen de las cuatro capas estratigráficas encontradas. La zona graduada mide 0.8m

En cuanto al registro animal encontramos 23 taxones entre los que destacan lagartos, serpientes, peces y aves. Además de un número limitado de murciélagos y una sola especie de rana. Encontramos también un hueso grande que corresponde a la rata gigante del arroz que ya se encuentra desaparecida y estuvo presente en la edad Amerindia. 
Se encuentran seis taxones diferentes de lagarto y uno sólo de serpientes. A continuación en el artículo nos relata en detalle las partes y las características de las diferentes muestras obtenidas en el estudio. En resumen algunas de las especias han desaparecido, las que no han desaparecido han visto reducido su hábitat o viven en las islas más próximas. 
Posteriormente se relata la posible formación del suelo en base a los datos estratigráficos, paleontológicos y arqueológicos (Bertrand, 2001).
 La asociación faunística representa modificaciones en la población de vertebrados relacionadas con la ocupación humana de la isla.

La mayoría de la desapariciones de los reptiles tuvo lugar entre finales del siglo XVII y 1950 lo que sugiere que esta desaparición esta estrechamente relacionada con la colonización humana.

En conclusión, la evidencia de que las extinciones datan de los primeros siglos después de la colonización europea inicial de las Indias Occidentales sugiere fuertemente la implicación en las extinciones provocada por el hombre. Esto se apoya en un estudio reciente que data huesos fósiles de aves y reptiles en Abaco en las Bahamas (Steadman et al. 2014).
Por otra parte, en el caso de La Désirade también destaca el impacto no de las sociedades históricas en las comunidades de fauna locales, un aspecto que hasta ahora había permanecido oculto. En este articulo  se ha demostrado la eficacia de un enfoque en el que las causas de la desaparición especies endémicas se apoye en los factores ecológicos específicos de cada isla para obtener así resultado más precisos. En el caso de La Désirade, uno de los factores que modifica ese patrón generalizado es una topografía que favorece el cultivo sustancial.

Bibliografía:

  • Barbotin, M., 2010. La Désirade. Une île de la Guadeloupe, son histoire étonnante. Municipalité de la Désirade, Société d'Histoire de la Guadeloupe, Basse-Terre.
  • Bertrand, A., 2001. Notes Préliminaires sur les mollusques terrestres de Guadeloupe. CNRS — Laboratoire Souterrain de Moulis, Moulis.
  • Harris, J.G., Mylroie, J.E., Carew, J.L., 1995. Banana holes: unique karst features of the Bahamas. Carbonates and Evaporates 10 (2), 215–224.
  • Pregill, G.K., Steadman, D.W.,Watters, D.R., 1994. Late Quaternary vertebrate faunas of the Lesser Antilles: historical components of Carribbean biogeography. Bulletin of the Carnegie Museum of Natural History 30, 1–51.
  • Steadman, D.W., Albury, N.A., Maillis, P., Mead, J.I., Slapcinsky, J., Krysko, K.L., Singleton, H.M., Franklin, J., 2014. Late-Holocene faunal and landscape change in the Bahamas. The Holocene 24, 220–223.

sábado, 13 de junio de 2015

Último capítulo: carnívoros

INTRODUCCIÓN:

Como ya sabéis la última entrada del blog se basará en relacionar las anteriores. Así que mi relación se establece en que he buscado artículos que tratasen siempre sobre un animal mamífero carnívoro y que además tuvieran una distribución geográfica en el continente americano y vivieran en el Cuaternario.

Para hacer un poco de memoria os recuerdo que mi primera entrada fue sobre el impresionante Panthera leo atrox, después mi segunda entrada trato sobre el puma Felis pumoides y por último el gracioso oso negro americano Ursus americanus.

A parte debo contar que me pareció interesante el descubrir que las biozonas de América del Sur estaban asociadas cada una con un animal, que imagino dominaría o sería importante en esa biozona durante el tiempo correspondiente a cada biozona. Me puse a buscar como una loca las distintas especies de cada biozona y debo reconocer que Megatherium americanum correspondiente al Bonarense del Pleistoceno me llamo la atención por ser un perzoso, como ya dije en mi anterior entrada adicional, ¿a quién no le gusta Sid de Ice Age?

Esta fue mi motivación principal para ponerme a buscar sobre esta peculiar especie extinta, aparte de que tenía la perfecta correlación con mis anteriores entradas, así que decidí hacer esa entrada adicional.

Para hacer esta relación he basado mi entrada en el siguiente artículo “Los carnívoros (Carnivora, Mammalia) terrestres del Cuaternario de América del Sur” escrito por Leopoldo SOIBELZON y Francisco J. PREVOSTI; del cual he sacado información para poder relacionar los tres animales que escogí para mis entradas anteriores y además establecer la relación que existe entre los carnívoros de América del Norte y América del Sur para así poder correlacionar que Ursus americanus se encontrara en Norteamérica.

En sí la historia de los carnívoros placentarios (Mammalia, Carnívora) continentales en América es relativamente reciente y está estrechamente vinculada al Gran Intercambio Biótico Americano. Sin embargo el registro fósil de los mamíferos placentarios marinos comienza algo antes, durante el Mioceno medio. Pero en este caso vamos a centrarnos  en los mamíferos continentales.

Los principales yacimientos de vertebrados mamíferos pleistocenos se concentran en la región de Pampeana en Argentina, donde se conoce una secuencia prácticamente continua desde el Plioceno tardío al Holoceno.

En concreto vamos a centrarnos en las familias Felidae y Ursidae. Por lo tanto basaré esta entrada en dar a conocer la sistemática, la bioestratigráfica y la paleoecología de los fósiles de carnívoros encontrados de las familias en las que voy a centrarme.


Mapa de América del Sur con de las primeras localidades fosilíferas del Plioceno-Cuaternario. 1 - Muaco (Venezuela) 2 - La Carolina (Ecuador) 3 - Talara (Perú) 4 - Lagoa Santa (Brasil) 5 - Tarijia (Bolivia) 6 - Región Pampeana 7 - Cueva del Milodón Chile).


-Escala cronoestratigráfica, geocronológica y bioestratigráfica del cuaternario en América del Sur:

La actual escala cronoestratigráfica para el Cenozoico superior continental de América del Sur está basada en un conjunto de biozonas bien definidas (Figura 2).

En esta escala, el Marplatense representa al Plioceno Superior, la base del Ensenadense probablemente incluya al Plioceno más superior, mientras que el resto del Ensenadense, Bonarense (Biozona de Megatherium americanum) y Lujanense representan al Pleistoceno, el Platense comienza en el Holoceno Inferior.

A base de la información magnetoestratigráfica, la parte más superior del Ensenadense tendría una antigüedad menor a 0,78 Ma.

Escala cronoestratigráfica, geocronológica y bioestratigráfica del Mioceno tardío en América del Sur.

RESULTADOS:

FELIDAE:

Dentro de esta familia entran las dos especies nombradas en mis dos primeras entradas, Panthera leo atrox y Felis pumoides.


  •   Sistemática:
Los félidos en América se encuentran representados por un género de la subfamilia Machaerodontinae pero principalmente por una alta diversidad de taxones de la subfamilia Felinae (como por ejemplo Panthera y Puma).

Smilodon es un Smilodontini derivado que incluye dos especies con distribución sudamericana: Smilodon populator y Smilodon fatalis. Recientemente ha sido descrito un ejemplar de Smilodon populator (figura 3).

Algunos jaguares fósiles poseen un mayor tamaño que los actuales, alcanzando el tamaño de Panthera leo, lo que fue utilizado para erigir subespecies como P. onca mesembrina, pero el estatus de estos taxones debe ser revisado. Los nombres de especies como Felis pumoides fueron sinonimizados con aquellos de especies actuales o considerados dudosos.


Cráneo de Smilodon populator. A en vista dorsal , B en vista lateral. Escala gráfica = 15 cm.


  •  Distribución geográfica y estratigráfica:

Smilodon populator es una especie endémica de América del Sur y fue hallada en yacimientos del Ensenadense al Lujanense desde Brasil a Bolivia.

Smilodon fatalis es de origen Neártico, solo fue hallada en sedimentos del Pleistoceno tardío del noroeste de América del Sur, representando una nueva inmigración de grandes félidos a Sudamérica.
Los restos fósiles de Puma y Panthera provienen del Ensenadense de Argentina. Aunque no se conoce su edad absoluta, varios ejemplare encontrados en Buenos Aires fueron encontrados en sedimentos de polaridad inversa del Cron Matuyama que se encuentra por debajo del evento Jaramillo (+/- 1 Ma AP). Durante el Pleistoceno tardío el registro de estas especies es más amplio y abarca Brasil, Ecuador, Perú, Bolivia, Uruguay, Argentina y Chile.

  • Consideraciones paleoecológicas:

Durante el Pleistoceno esta familia ocupó el tope de la pirámide alimenticia, depredando sobre grandes mamíferos.

Los ejemplares fósiles de pequeños félidos y de pumas no difieren significativamente de los actuales, lo que permite inferir que poseían el mismo comportamiento trófico que sus representantes vivientes. Los pequeños félidos se alimentaban de roedores y de aves y los pumas de mamíferos de un tamaño mediano.

URSIDAE:

Ursus americanus, el oso negro americano citado en mi anterior y tercera entrada, se encuentra dentro de esta familia, de la cual vamos a conocer más cosas.

  •  Sistemática:

Los únicos Ursidae que habitaron y habitan América del Sur pertenecen a la subfamilia Tremarctinae.
Es interesante comentar que, debido al enorme dimorfismo sexual en tamaño, enel pasado se llegaron a reconocer cinco géneros que agrupaban aproximadamente dos especies. Durante los últimos 40 años, la discusión entre los especialistas se centró sobre la pertenencia genérica de las especies sudamericanas, ya que algunos autores consideraban que estas pertenecían al género boreal Ursus o Arctodus.

El análisis filogenético llevado a cabo por Soibelzon (2002) sobre todos los taxones de Tremarctinae permitió observar que las especies sudamericanas conformaban un grupo natural bien sustentado por sinapomorfias y separado del grupo norteamericano. Por este motivo se optó por agrupar todas las especies reconocidas en un solo género (Arctotherium).

Algunas especies de este género se caracterizaban por su enorme tamaño.


Cráneo de Arctotherium tarijense. A vista lateral, B vista dorsal. Escala gráfica = 1 cm.


  • Consideraciones paleoecológicas:

Probablemente esta familia tenía una dieta omnívora formada por gran diversidad de componentes, pero con un predominio de origen animal. La cacería activa, la disputa de presas cobradas por otros carnívoros y el carroñeo formaban parte de su estrategia alimenticia.

Frecuentemente pueden observarse patologías sobre restos fósiles de Arctotherium. Sin dudas las patologías más comunes en Arctotherium son las derivadas del tremendo desgaste de la superficie oclusal de las coronas de los molares superior e inferior, que en varios casos deja expuesta la cavidad pulpar.

DISCUSIÓN:

-Los carnívoros en el marco del Gran Intercambio Biótico Americano:

América del Sur se mantuvo aislada de los otros continentes durante la mayor parte del Cenozoico. El aislamiento finalizó entre 3,1 y 2,8 Ma, con la desaparición de la barrera marina que existía entre el noroeste de Colombia y el sur de Panamá.

Después del establecimiento del Istmo de Panamá, se produjo un evento de intercambio faunístico entre América del Norte y América del sur, conocido como Gran Intercambio Biótico Americano.
La mayoría de las familias del orden Carnívora llegaron de este modo a América del Sur.
El ingreso de los carnívoros se produjo en etapas según podemos observar en el registro fósil. 

Podemos establecer dos etapas:

  1. El Vorohuense, cuando ingresaron los primeros cánidos y mustelinos.
  2. El Ensenadense, cuando se observa una notable diversificación de los carnívoros entre los que se encuentran los úrsidos y los félidos.


En síntesis, la diversidad de los carnívoros fósiles (Figura 4) y vivientes sería resultado de varios eventos inmigratorios independientes a partir de América Central y del Norte y la radiación adaptativa de los clados inmigrantes, más algunas extinciones entre las que se destaca la ocurrida al final del Pleistoceno y comienzos del Holoceno.

Reconstrucción paleoambiental del Pleistoceno tardío.

CONCLUSIÓN:

 Como hemos podido observar los carnívoros se diversifican con la aparición en escena de los Ursidae y los Felidae por lo tanto podemos destacar la gran importancia de estos carnívoros. La relación que hacemos entre las dos especies que describí en mis dos primeras entradas pretenecientes a la familia de los Felidae y la especie que entra dentro de los Ursidae de mi última entrada, es este importantísimo intercambio biótico que permitió sin duda la diversificación de las especies y la creación de otras nuevas. Además como ya he dicho, relacionamos estas tres especies con Megatherium americanum ya que este animal se corresponde con una biozona importante de la escala cronoestratigráfica, geocronológica y bioestratigráfica de América del Sur y es esencial para poder conocer la paleoecología de esos animales carnívoros y las distribuciones geográficas y estratigráficas en las que se encontraron. Hubo un intercambio faunístico a nivel completo entre América del Norte y América del Sur lo que nos ha permitido tanto estudiar este evento con bastante precisión como conocer los aspectos más curiosos e importantes de muchas de las especies de mamíferos carnívoros.

Al fin después lo que pareció ser un tiempo muy largo los carnívoros consiguieron llegar a América del Sur y pasearse por allí estableciendo sus nuevos hábitats, este intercambio biótico fue sin duda la puerta hacia un nuevo mundo literalmente y que hizo posible que hoy en día este tema referido a los carnívoros sea aun más interesante tanto en el mundo de la biología como en el mundo de la geología y en concreto en el increíble mundo de la paleontología y sus fósiles.

Espero que os haya interesado este tema tanto como a mí y que sobre todo os hayáis quedado con algunas cosas sobre este mundo de los carnívoros que como suelen decir, “todos los días se aprende algo nuevo” y si es de fósiles mucho mejor.

REFERENCIAS:


  •  Leopoldo SOIBELZON y Francisco J. PREVOSTI - Los carnívoros (Carnivora, Mammalia) terrestres del Cuaternario de América del Sur.